来源:Hydroxamate formation in Thermochelin biosynthesis(Archives of Biochemistry and Biophysics)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
氮羟化单加氧酶(NMO)是铁载体生物合成中的关键酶,其催化依赖蛋白与辅因子的协同构象变化。本文表征了来自Thermocrispum agreste的NMO——TheA,通过稳态动力学、预稳态动力学、热稳定性及结构分析,揭示其对L-鸟氨酸的底物偏好、对NADPH的辅因子偏好,以及底物结合诱导的还原速率与亲和力变化。TheA在50 °C以内保持稳定,其动力学特征拓展了NMO家族的多样性。
研究背景
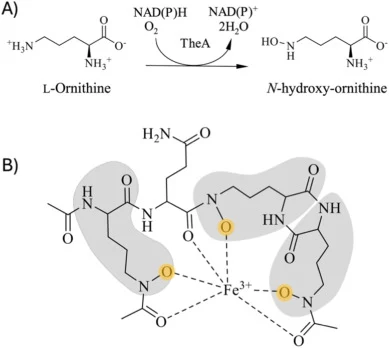
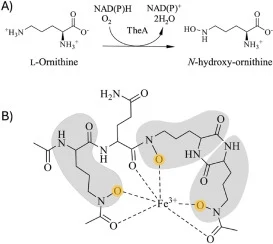
铁载体是微生物分泌的低分子量铁螯合剂,异羟肟酸型铁载体中的羟胺基团由氮羟化单加氧酶(NMO)催化形成。NMO属于一类依赖FAD和NAD(P)H的双组分单加氧酶,催化过程中蛋白与辅因子需经历复杂的构象变化并保持同步,才能实现有效催化。此前已有多个NMO的结构与化学机制被报道,SidA是其中的原型酶。NMO家族在底物选择性和辅因子偏好上存在差异,部分成员已被探索作为生物催化剂。TheA是来自嗜热放线菌Thermocrispum agreste的NMO,参与Thermochelin(一种推测结构的铁载体)的生物合成,其反应为L-鸟氨酸的N5位羟化。与多数NMO相比,TheA表现出较宽的底物选择性,这一特性使其在工业生物催化中具有潜在价值。本文对TheA进行了表达纯化、稳态与预稳态动力学表征、热稳定性测定及结构分析,旨在阐明其催化特征并与原型NMO SidA进行比较。
研究方法
材料
编码T. agreste theA基因、连接于pET16b质粒的DNA由德国波鸿鲁尔大学Dirk Tischler博士惠赠。Turbo BL21 (DE3)大肠杆菌细胞购自Sigma Aldrich(美国密苏里州圣路易斯)。除非另有说明,本工作所用试剂均购自Fisher Scientific(美国宾夕法尼亚州匹兹堡)。
【数据】质粒:pET16b-theA;宿主菌:Turbo BL21 (DE3) E. coli;试剂来源:Sigma Aldrich、Fisher Scientific;原文未详述其他试剂批号与纯度
TheA的异源表达与纯化
将pET16b-theA转化入Turbo BL21 (DE3)大肠杆菌细胞,成功转化子通过在不含/含100 μg/mL氨苄青霉素的琼脂平板上于37 °C过夜培养进行筛选。种子培养液的制备:将100 mL溶菌肉汤(LB)培养基补充100 μg/mL氨苄青霉素,接入一个转化菌落,于37 °C过夜(约16 h)培养。以10 mL/L的接种量将种子培养液接入6 L补充100 μg/mL氨苄青霉素的Terrific Broth自诱导培养基。培养物于37 °C、250 rpm振荡培养至600 nm终光密度为4,此时将培养温度降至18 °C。该流程通常每升培养液产出约24 g细胞。细胞沉淀冻存于−80 °C直至纯化。
蛋白纯化时,将细胞糊按每1 g细胞对应5 mL Buffer A(25 mM HEPES、300 mM NaCl、25 mM咪唑,pH 7.5)的比例重悬。缓冲液中补充60 μg/mL溶菌酶,以及各25 μg/mL的DNAse I和RNAse,于4 °C持续搅拌孵育30 min。所得细胞悬液用超声探头以70%振幅、脉冲模式(开5 s、关10 s)超声裂解,总时长5 min。超声过程中悬液置于冰上。裂解液于4 °C、45,000×g离心45 min。收集上清并加载到两根串联的、预先用Buffer A平衡的5 mL HisTrap柱上。上清加载完毕后,用Buffer A洗涤柱子直至280 nm吸光度回落至基线水平。随后用Buffer B(25 mM HEPES、300 mM NaCl、50 mM咪唑,pH 7.5)洗涤柱子。用Buffer C(25 mM HEPES、300 mM NaCl、300 mM咪唑,pH 7.5)洗脱TheA。合并含纯化蛋白的洗脱组分,通过透析换液至储存缓冲液(25 mM HEPES、100 mM NaCl,pH 7.5)。酶溶液浓缩至100 μM,液氮速冻,保存于−80 °C。
【数据】抗生素:100 μg/mL氨苄青霉素;种子培养:100 mL LB、37 °C、约16 h;表达培养:6 L TB自诱导培养基、37 °C、250 rpm至OD600=4后降至18 °C;产率:约24 g细胞/L培养液;重悬比例:5 mL Buffer A/g细胞;溶菌酶:60 μg/mL;DNAse I/RNAse:各25 μg/mL;孵育:4 °C、30 min;超声:70%振幅、5 s开/10 s关、总5 min、冰上;离心:45,000×g、45 min、4 °C;层析:两根串联5 mL HisTrap柱;洗脱:Buffer C含300 mM咪唑;储存:100 μM、−80 °C
消光系数的测定
用UV/Vis分光光度计在1 cm光程石英比色皿中记录TheA(45 μM)的吸收光谱。取出样品于95 °C孵育10 min。变性溶液于5000 rpm离心5 min,记录上清中游离FAD的光谱。根据游离FAD的已知消光系数(ε450:11.3 mM⁻¹ cm⁻¹)计算得TheA在450 nm处的消光系数为11.06 mM⁻¹ cm⁻¹。为计算结合黄素的量,用Bradford法测定蛋白浓度。酶学测定中所用蛋白量依据黄素含量确定。
【数据】蛋白浓度:45 μM;变性:95 °C、10 min;离心:5000 rpm、5 min;TheA ε450:11.06 mM⁻¹ cm⁻¹;游离FAD ε450:11.3 mM⁻¹ cm⁻¹;蛋白定量:Bradford法
耗氧测定
用Oxygraph(Hansatech,英国诺福克)监测TheA消耗的分子氧量。标准测定体系为100 mM磷酸钠,pH 7.5。TheA(2.5 μM)在缓冲液中于25 °C预孵育,随后加入底物启动反应。反应于25 °C持续搅拌进行1 min。L-鸟氨酸和L-赖氨酸在0.01至3.0 mM之间变化,同时保持NADPH恒定为2 mM。NAD(P)H在0.01 mM至4 mM之间变化,同时保持L-鸟氨酸恒定为2 mM。
【数据】缓冲液:100 mM磷酸钠、pH 7.5;酶浓度:2.5 μM;温度:25 °C;反应时间:1 min;底物范围:L-鸟氨酸/L-赖氨酸0.01–3.0 mM、NADPH恒定2 mM;辅因子范围:NAD(P)H 0.01–4 mM、L-鸟氨酸恒定2 mM
产物形成测定
TheA形成的羟化产物量采用Csaky碘氧化法的改良版本测定,改良方式如先前所述。标准测定缓冲液含100 μL 100 mM磷酸钾缓冲液(pH 7.5)及不同浓度的L-鸟氨酸(0.10–1.0 mM)或L-赖氨酸(0.10–1.0 mM)和NADPH(0.10–1.0 mM)或NADH(0.10–1.0 mM)。TheA(2.5 μM)在测定缓冲液中于25 °C预孵育,随后加入NAD(P)H启动反应。反应于25 °C振荡进行15 min,加入高氯酸终止。15 min后在SpectraMax M5e酶标仪(Molecular Devices,美国加州桑尼维尔)上测定562 nm吸光度。用盐酸羟胺标准曲线计算生成的羟化产物量。
【数据】缓冲液:100 mM磷酸钾、pH 7.5、体积100 μL;底物:L-鸟氨酸/L-赖氨酸0.10–1.0 mM;辅因子:NADPH/NADH 0.10–1.0 mM;酶浓度:2.5 μM;温度:25 °C;反应时间:15 min;终止剂:高氯酸;检测:562 nm;标准品:盐酸羟胺
热稳定性
为测定蛋白的热稳定性,将TheA(2.5 μM)在100 mM磷酸钠(pH 7.5)中于10、20、30、40、50和60 °C分别孵育10 min。待蛋白冷却至室温后测定活性。加入2 mM L-鸟氨酸和2 mM NADPH启动反应,室温振荡孵育15 min。通过碘氧化法测定产物形成来确定活性,并计算相对于室温对照的活性下降百分比。
【数据】酶浓度:2.5 μM;缓冲液:100 mM磷酸钠、pH 7.5;孵育温度:10、20、30、40、50、60 °C;孵育时间:10 min;反应底物:2 mM L-鸟氨酸、2 mM NADPH;反应:室温、15 min
黄素还原
TheA结合的FAD的还原在厌氧条件下用停流光谱仪(Applied Photophysics SX20,英国莱瑟黑德)监测,方法如先前所述。用光电二极管阵列光谱仪监测黄素还原直至FAD完全还原,以450 nm吸光度下降检测。反应记录500 s,采用对数标度。反应缓冲液为厌氧的100 mM磷酸钠缓冲液,pH 7.5。反应混合物含20 μM酶和0.01–2 mM NADPH。实验在不含和含10 mM L-鸟氨酸两种条件下进行。
【数据】酶浓度:20 μM;NADPH:0.01–2 mM;L-鸟氨酸:0或10 mM;缓冲液:厌氧100 mM磷酸钠、pH 7.5;监测波长:450 nm;记录时间:500 s、对数标度;仪器:Applied Photophysics SX20停流光谱仪
数据分析
动力学数据用KaleidaGraph软件(Synergy,美国宾夕法尼亚州雷丁)分析。初速度数据拟合Michaelis-Menten方程以获得kcat和KM值(方程(1))。对于还原半反应,450 nm吸光度下降拟合双指数衰减方程,以获得特定NADPH浓度下还原过程的kobs1和kobs2(方程(2))。所得kobs1对NADPH浓度作图,数据拟合方程(3)以获得kred和KD。
方程1:v/[E] = kcat[S]/(KM + [S])
方程2:v = a1e^(−kobs1×t) + a2e^(−kobs2×t) + c
方程3:kobs = kred[S]/(KD + [S])
【数据】软件:KaleidaGraph;模型:Michaelis-Menten方程、双指数衰减方程、双曲线方程;拟合参数:kcat、KM、kobs1、kobs2、kred、KD;原文未详述拟合权重与误差估计方法
研究结果
TheA的表达与纯化
重组TheA在Turbo BL21 (DE3)大肠杆菌细胞中以N端His•Tag融合蛋白形式表达。His标签的引入使蛋白可通过固定化镍亲和层析纯化。纯化后,约60%的表达重组蛋白存在于沉淀组分中,为不可溶形式。可溶性TheA用300 mM咪唑从柱上洗脱。SDS-PAGE分析估计纯化后TheA的分子量约为50 kDa(图3A)。这与用ProtParam工具(Expasy.org)经计算机预测的TheA分子量51449.9 Da一致。标准纯化流程每克细胞糊产出2.4 mg蛋白。TheA的吸收光谱与黄素蛋白一致(图3B),450 nm处消光系数测定为11.06 mM⁻¹ cm⁻¹。结合FAD的蛋白比例通过以下方式确定:用Bradford法计算浓度,再除以用450 nm消光系数确定的FAD浓度(图3A)。
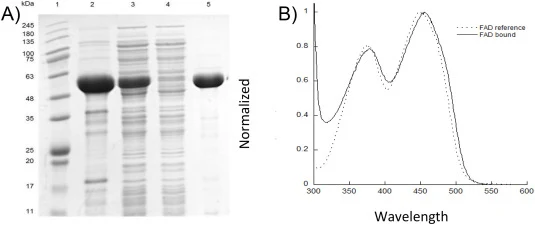
【数据】表达宿主:Turbo BL21 (DE3);标签:N端His•Tag;不可溶比例:约60%;洗脱:300 mM咪唑;分子量:SDS-PAGE约50 kDa、预测51449.9 Da;纯化产率:2.4 mg蛋白/g细胞糊;ε450:11.06 mM⁻¹ cm⁻¹
TheA的稳态动力学表征
TheA的活性通过耗氧速率测定和产物形成测定两种方法监测(图4)。稳态动力学参数汇总于表1。底物饱和曲线通过监测随L-鸟氨酸或L-赖氨酸浓度增加的初始酶速率确定。当以L-鸟氨酸为底物时,TheA的kcat值比以L-赖氨酸为底物时高约2倍;然而,用产物形成测定以L-赖氨酸为底物时未检测到产物,而以L-鸟氨酸为底物时获得非常相似的kcat值(图4A和B)(表1)。烟酰胺辅因子饱和曲线通过监测随NADPH或NADH浓度增加的初速度确定。以NADPH为辅因子时(图4C)。以NADH为辅因子时(图4D),耗氧测得的kcat值与NADPH所得相似;但以NADPH时L-鸟氨酸的羟化约低3倍,这是基于产物形成所得kcat比较的结果(表1)。通过比较耗氧监测所得转换数与产物形成测定所得转换数,可确定解偶联百分比。以L-赖氨酸为底物时未检测到产物,提示完全(100%)解偶联。相反,以L-鸟氨酸为底物时,以NADPH为辅因子观察到39%解偶联,以NADH为辅因子则为70%。
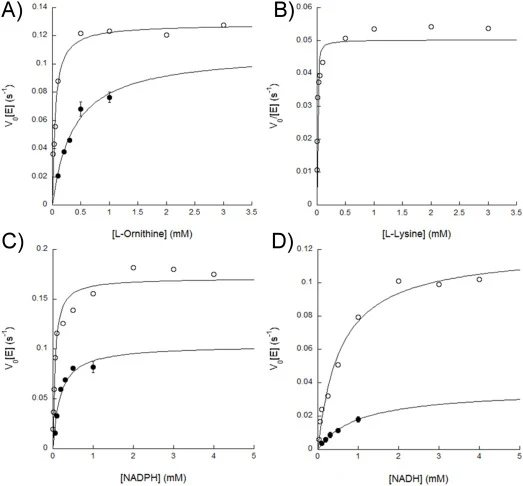
【数据】kcat(L-鸟氨酸 vs L-赖氨酸,耗氧):约2倍差异;L-赖氨酸产物形成:未检出;解偶联:L-赖氨酸100%、L-鸟氨酸+NADPH 39%、L-鸟氨酸+NADH 70%;NADH羟化kcat较NADPH低约3倍;底物浓度范围:L-鸟氨酸/L-赖氨酸0.01–3.0 mM;辅因子范围:NAD(P)H 0.01–4 mM;温度:25 °C;反应时间:耗氧1 min、产物形成15 min
温度对TheA活性的影响
TheA的热稳定性通过在不同温度下孵育酶并用产物形成测定计算活性来确定。TheA在10 °C至50 °C孵育时活性维持在接近100%,而在60 °C孵育时活性骤降至检测限以下(图5)。
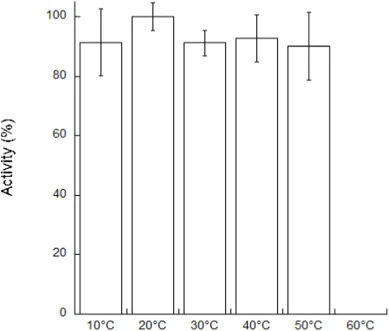
【数据】温度范围:10、20、30、40、50、60 °C;10–50 °C活性:接近100%;60 °C:活性低于检测限;孵育时间:10 min;酶浓度:2.5 μM
TheA的预稳态动力学表征
TheA的还原作为NADPH浓度的函数,在不含和含L-鸟氨酸两种条件下监测(图6A和B)。反应通过停流分光光度计测定450 nm吸光度下降来跟踪。还原过程分两相发生:快相速率常数随NADPH浓度增加而增大,慢相速率常数仅有微小变化,且被认为无催化相关性,因其可能源于受损酶(图6C和D)。450 nm吸光度轨迹拟合方程(2)以获得快相(kobs1)和慢相(kobs2)的速率常数。这些值随后对NADPH浓度作图,通过将数据拟合方程(3)确定黄素还原最大速率(kred)和解离常数(KD)(图7)。数据汇总于表2。不含L-鸟氨酸时,kred值比含L-鸟氨酸时快约3.5倍,KD高约7倍。含L-鸟氨酸时的kred和KD值与kcat和KM值相当(表1)。由kred/KD的变化可见,底物存在时酶在快相中的效率似乎提高了一倍。
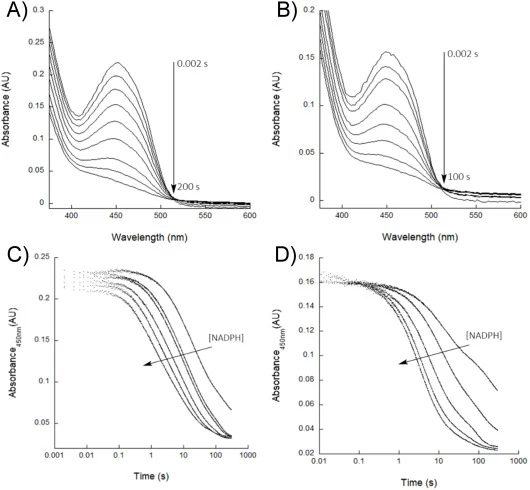
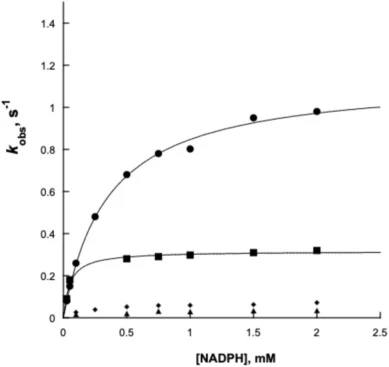
【数据】酶浓度:20 μM;NADPH:0.01–2 mM;L-鸟氨酸:0或10 mM;监测波长:450 nm;记录时间:500 s;不含L-鸟氨酸:kred快约3.5倍、KD高约7倍;含L-鸟氨酸:kred/KD效率约提高一倍;含L-鸟氨酸的kred、KD与kcat、KM相当
结构分析
TheA的结构分析将SidA(金色,PDB ID:4B63)与TheA的AlphaFold模型(蓝色)叠加。插图显示,SidA中R279的位置使其能够形成氢键和π-阳离子相互作用,而TheA中的R237仅能形成氢键相互作用(图8)。
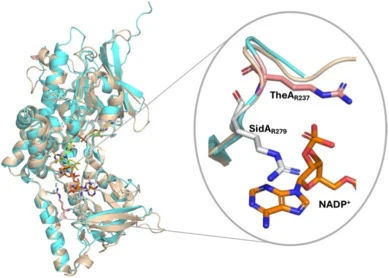
【数据】比对结构:SidA(PDB ID:4B63)与TheA AlphaFold模型;关键残基:SidA R279、TheA R237;相互作用差异:SidA R279可形成氢键与π-阳离子相互作用、TheA R237仅能形成氢键;原文未详述叠加RMSD数值
讨论与解读
本文报道了来自T. agreste的NMO——TheA的表征。NMO及其催化的羟化反应在铁载体生物合成中具有重要作用,此前已有多个NMO的结构与化学机制被阐明,揭示了为达到最优催化而必须同步的复杂蛋白与辅因子构象变化。NMO已被探索作为生物催化剂,而TheA因表现出NMO中不常见的宽底物选择性,成为工业应用的潜力候选。稳态活性显示该酶偏好L-鸟氨酸而非L-赖氨酸,与近期发表结果一致。耗氧测定虽显示对L-赖氨酸有活性,但产物形成测定表明该活性对应过氧化氢生成而非L-赖氨酸羟化(表1);不过基于该测定不能排除低水平L-赖氨酸羟化的可能。稳态动力学分析还显示TheA偏好NADPH而非NADH。酶在高达50 °C孵育时保持稳定,但60 °C时稳定性骤降,这与T. agreste在28至60 °C生长的生理范围一致,也与近期关于该重组酶的报道相符。预稳态结果表明,L-鸟氨酸结合导致还原速率减慢、对NADPH亲和力降低,降至稳态条件下观察到的数值;结构分析支持TheA相对于原型NMO SidA具有改变的辅因子相互作用,提示L-鸟氨酸诱导的构象变化优化了催化。TheA具有独特的动力学与机制特征,拓展了NMO家族的多样性,并凸显其作为模型系统与生物催化剂的双重潜力。
编译者解读:TheA的价值在于"宽底物谱+热稳定"的组合,这在NMO家族中并不常见。作者用停流动力学把底物结合与黄素还原速率耦合起来,解释了为何L-鸟氨酸能抑制还原却提升催化效率——这类"慢下来才准"的机制对酶工程改造很有启发。局限也明显:L-赖氨酸的完全解偶联意味着该底物只能当"耗氧旁路"用,且结构证据仅来自AlphaFold模型与SidA叠加,缺少TheA自身实验结构。若要把TheA做成羟化 biocatalyst,下一步需针对解偶联比例做定向进化。
参考来源
期刊:Archives of Biochemistry and Biophysics, 2026
DOI: 10.1016/j.abb.2026.111021
DOI: 10.1016/j.abb.2026.111021