来源:Mg2+ deficiency affects heat shock resistance in Escherichia coli(Food Research International)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
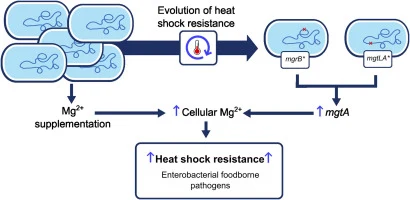
食品加工链中的亚致死热强度可能让微生物获得适应性进化。本研究以指数期大肠杆菌MG1655为对象,进行9轮递增热循环定向进化,发现所有进化谱系均获得热休克抗性,但并非通过预期中的热休克蛋白上调。全基因组测序揭示,13个谱系中有10个携带mgrB功能缺失突变——该基因编码PhoPQ双组分系统的负调控因子。进一步遗传分析证实,PhoPQ依赖的MgtA镁离子转运蛋白上调是抗性的因果机制,而培养基补加Mg²⁺即可表型模拟该抗性,并提升多种致病肠杆菌的热存活率。研究将细胞镁离子稳态确立为增殖期肠杆菌内在热抗性的关键决定因素。
研究背景
热加工是食品安全的基石,但高温会损害食品的感官与营养品质,因此产业界倾向采用较低温度的热处理,并辅以其他加工因子协同杀菌。问题在于,温和的热强度或加工链中的温度梯度,恰恰为微生物执行存活策略、启动适应性进化留出了空间。肉品加工设施中频繁分离到极端耐热的 Escherichia coli 分离株,部分菌株的抗性可部分归因于水平获得的基因元件。
以往关于食源性细菌获得热抗性的研究,绝大多数聚焦于稳定期细胞。然而食品加工链的许多区域允许微生物生长,指数期细胞同样暴露于热胁迫。生长阶段深刻影响基因表达与细胞调控,指数期细胞的热适应机制可能与稳定期截然不同。已有针对稳定期 E. coli 的定向进化研究鉴定出影响分子伴侣与蛋白聚集体调控的突变,但指数期细胞是否沿相同路径进化,尚属未知。本研究正是要回答这一问题:生长活跃的细胞如何通过进化获得热休克抗性。
研究方法
2.1 菌株与培养条件
本研究所用细菌菌株、质粒与引物分别列于补充表1、表2和表3。Escherichia coli K−12 MG1655 及其衍生菌株——其中天然 clpB 基因与编码单体超折叠绿色荧光蛋白(msfGFP)的基因进行翻译融合——作为整个研究的亲本背景菌株。细菌在溶菌肉汤(LB)(5 g/L NaCl [Fisher chemical]、5 g/L 酵母提取物 [Oxoid]、10 g/L I型酪蛋白胨 [Neogen],若为固体培养基则另加15 g/L 细菌学琼脂1号 [Neogen])或AB完全(ABc)培养基(1/5稀释的5× A溶液(10 g/L (NH₄)₂SO₄ [Acros organics]、37.5 g/L Na₂HPO₄(H₂O)₂ [VWR BDH chemicals]、15 g/L KH₂PO₄ [Acros organics] 和15 g/L NaCl [Fisher chemical],0.1 mM CaCl₂(H₂O)₂ [Acros organics],3 μM FeCl₃ [MP biomedicals],10 μg/mL 硫胺素氯化物 [Acros organics],25 μg/mL 尿嘧啶 [Acros organics],1% 酸水解酪蛋白(casamino acids)[Neogen],以及10 μM或10 mM MgCl₂(H₂O)₆ [Fisher bioreagents])中培养。培养物在4 mL玻璃管中、37 °C(菌株构建时适用30 °C)有氧振荡(250 rpm)培养。指数期培养物通过将过夜培养物以1/1,000稀释于新鲜培养基、继续培养至OD₆₀约0.2–0.3制备。若使用异丙基β-D-1-硫代吡喃半乳糖苷(IPTG)作为诱导剂,则在取样前加入培养物提供1小时诱导期。phoPQ操纵子或mgtA基因被破坏的菌株在构建过程中始终在补充10 mM MgCl₂或MgSO₄的培养基中生长,以最大限度降低抑制突变体占据群体的几率。当这些背景菌株作为过夜培养物用于热灭活实验或显微观察的指数期培养时,该实验的所有培养物均经离心沉淀并重悬于1 mL 0.85% KCl [Honeywell]中,以防止过夜培养物中存在的MgCl₂影响任何Mg²⁺相关表型。我们另外确认了培养基补充10 mM MgCl₂不影响指数期生长(补充图1)。适当时,以下化学品以所示终浓度加入培养基:50 μg/mL 硫酸卡那霉素 [Applichem]、20 μg/mL 四环素 [Applichem]、0.2% 葡萄糖 [Acros organics]、100 μg/mL 氨苄青霉素钠盐 [Fisher Bioreagents]、0.2% L-阿拉伯糖 [Acros organics]、10 μM IPTG [Acros organics]、10 μM或10 mM MgCl₂(H₂O)₆ [Fisher bioreagents]、10 mM CaCl₂(H₂O)₂ [Acros organics] 或10 mM MgSO₄(H₂O)₆ [Acros organics]。
【数据】培养基:LB(5 g/L NaCl、5 g/L 酵母提取物、10 g/L 酪蛋白胨,固体加15 g/L 琼脂)或ABc(1/5稀释5×A溶液、0.1 mM CaCl₂、3 μM FeCl₃、10 μg/mL 硫胺素、25 μg/mL 尿嘧啶、1% casamino acids、10 μM或10 mM MgCl₂);温度:37 °C(构建时30 °C);转速:250 rpm;培养体积:4 mL;指数期OD₆₀:0.2–0.3;过夜培养稀释度:1/1,000;IPTG诱导:1 h;抗生素:卡那霉素50 μg/mL、四环素20 μg/mL、氨苄青霉素100 μg/mL;其他添加物:0.2% 葡萄糖、0.2% L-阿拉伯糖、10 μM IPTG、10 mM CaCl₂、10 mM MgSO₄;mgtA/phoPQ突变株维持Mg²⁺:10 mM MgCl₂或MgSO₄;重悬液:1 mL 0.85% KCl
2.2 突变菌株的构建
clpB-msfGFP翻译融合通过PCR扩增并转化来自MG1655 ∆lacY clpB-msfGFP-frt-nptII-frt(Govers et al., 2018)的含msfGFP卡那霉素抗性盒至MG1655野生型菌株(Datsenko & Wanner, 2000)构建。随后使用pCP20表达的Flp切除frt侧翼的卡那霉素抗性标记(Cherepanov & Wackernagel, 1995)。rpoS缺失以类似方式构建:PCR扩增并转化来自MG1655 rpoS:frt-nptII-frt(Gayán et al., 2017)的替换rpoS的卡那霉素抗性盒至适当遗传背景。其他突变采用DIRex方法以无痕方式生成(Näsvall, 2017)。所需突变的存在通过Sanger测序验证(Macrogen,阿姆斯特丹,荷兰)。
【数据】菌株:MG1655、MG1655 ∆lacY clpB-msfGFP-frt-nptII-frt、MG1655 rpoS:frt-nptII-frt、E. coli Dh5α;抗性标记:卡那霉素抗性盒(frt-nptII-frt);方法:PCR扩增转化、Flp/pCP20切除、DIRex无痕突变、Sanger测序验证;温度:原文未详述
2.3 质粒的构建
质粒采用Gibson组装(Gibson et al., 2009)改造,随后通过电穿孔转化至 E. coli Dh5α 中维持,之后工程化位点经Sanger测序验证(Macrogen)。验证后,质粒电穿孔至适当菌株。报告野生型(pAJM.717-P mgtA-mgtA(截短)-mScarlet-I)或突变型mgtLA(pAJM.717-P mgtA*-mgtA(截短)-mScarlet-I)mgtA表达的质粒由以下三个片段Gibson组装而成:pAJM.717骨架(引物P24-P25)、含mgtA开放阅读框前10个氨基酸的野生型或突变型mgtLA启动子区域(引物P26-P27)以及mScarlet-I(引物P28-P29)。pAJM.336-mgtA质粒通过单片段Gibson组装构建,其中EYFP被mgtA开放阅读框替换,使用引物P32和P33扩增骨架、引物P34和P35扩增mgtA开放阅读框。
【数据】质粒:pAJM.717-P mgtA-mgtA(截短)-mScarlet-I、pAJM.717-P mgtA*-mgtA(截短)-mScarlet-I、pAJM.336-mgtA;组装方法:Gibson组装;克隆宿主:E. coli Dh5α;转化方式:电穿孔;验证:Sanger测序;片段:3片段(报告质粒)或单片段(pAJM.336-mgtA);引物:P24-P29、P32-P35;荧光蛋白:mScarlet-I、EYFP;mgtA ORF前10个氨基酸保留
2.4 液体培养物的热休克与细菌灭活测定
指数期培养物的热休克通过无菌操作将50 μL指数期培养物转移至无菌PCR管,在Biometra TAdvanced热循环仪中于指示温度热处理15分钟进行。热处理后,无菌取出样品。请注意,我们观察到LB批次依赖性的热灭活变异,可能归因于Mg²⁺水平的批间差异,Guo和Herman(2022)亦有类似观察。为测定细菌灭活,热处理样品与对照样品(同一指数期培养物,但未经受热休克并保持室温)均在0.85% KCl中系列稀释,点样(5 μL)于50 mL LB琼脂平板,37 °C过夜培养,如前所述(Mortier et al., 2021)。计数含5至50个菌落的点样区域以确定CFU/mL,检测限为1,000 CFU/mL。随后计算对数减少因子log₁₀(N₀/N),其中N₀和N分别代表对照样品和热处理样品的CFU/mL。
【数据】样品体积:50 μL;热休克时间:15 min;仪器:Biometra TAdvanced热循环仪;稀释液:0.85% KCl;点样体积:5 μL;平板:50 mL LB琼脂;培养:37 °C过夜;计数范围:5–50个菌落/点;检测限:1,000 CFU/mL;计算公式:log₁₀(N₀/N);对照:同批指数期培养物室温保存
2.5 热循环生成热抗性突变体
MG1655 clpB-msfGFP的热抗性突变体通过反复将13个独立的指数期LB培养物置于逐渐加剧的15分钟热休克(从48 °C至52 °C,0.5 °C递增)选择,类似于先前报道(Mortier et al., 2021)。指数期培养物通过将过夜培养物以1/10,000稀释并培养至OD₆₀约0.2–0.3生成。每次热休克(如上所述进行)后,将40 μL转移至含4 mL新鲜LB的玻璃管中,允许复苏和过夜生长。另外,两个独立谱系接受相同方案但不施加热胁迫,以确定LB连续传代的潜在选择效应。经过九轮选择(52 °C热休克后)和复苏,每个独立培养物的样品保存于−80 °C,并按上一节所述测试热休克抗性是否增加。每个培养物纯化单克隆于LB上,作为进一步表征的基础。
【数据】谱系:13个热循环谱系(MT1–13)+ 2个无热对照谱系(C1–2);热休克:15 min,48 °C起始,每轮递增0.5 °C至52 °C;循环数:9轮;过夜培养稀释度:1/10,000;指数期OD₆₀:0.2–0.3;每轮转移体积:40 μL至4 mL新鲜LB;复苏:过夜;保存温度:−80 °C
2.6 全基因组测序与分析
基因组DNA从过夜LB培养物中使用GeneJET基因组DNA纯化试剂盒(Thermo Fisher Scientific,Waltham,MA,USA)分离,之后使用Nextera XT DNA文库制备试剂盒(Illumina)制备双端文库。测序在NovaSeq 6000 S4平台上进行,使用CLC Genomics Workbench(Qiagen,Hilden,Germany)分析。测序读段经修剪并比对至 E. coli K-12 MG1655 参考基因组(NC_000913),分析单核苷酸多态性(SNP)和插入缺失,并人工检查mgrB位点中发生的插入序列。若变异同样存在于全基因组测序的亲本菌株(MG1655 clpB-msfGFP)中,则被过滤排除。
【数据】菌株:MG1655 clpB-msfGFP亲本及进化克隆;DNA提取:GeneJET基因组DNA纯化试剂盒;文库:Nextera XT DNA文库制备试剂盒(Illumina);测序平台:NovaSeq 6000 S4;分析软件:CLC Genomics Workbench;参考基因组:E. coli K-12 MG1655(NC_000913);变异类型:SNP、indel、插入序列;过滤:排除亲本菌株中亦存在的变异
2.7 生长曲线
指示菌株在指示培养基中于玻璃管内生长,使用Ultrospec 10细胞密度计(Biochrom,Harvard Bioscience)以固定时间间隔手动测量OD₆₀₀。每个培养物从LB过夜培养物以1/1,000稀释起始。
【数据】仪器:Ultrospec 10细胞密度计(Biochrom);测量:OD₆₀₀手动定时;起始稀释:1/1,000(LB过夜培养物);培养基/菌株:按指示;温度:原文未详述
研究结果
3.1 热循环轻易提升指数期大肠杆菌细胞的热休克抗性
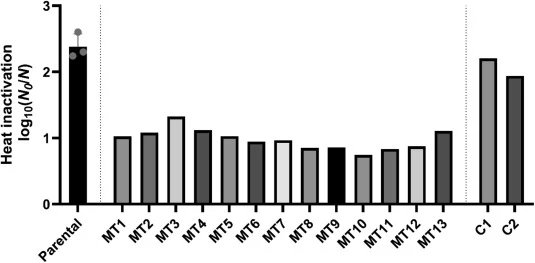
在我们先前的研究中,我们鉴定了赋予稳定期 E. coli MG1655 和 Salmonella Typhimurium LT2 增强热休克抗性的机制(Berdejo et al., 2024; Mortier et al., 2021)。然而,由于生长阶段极大影响基因表达和细胞调控(Navarro Llorens et al., 2010),我们假设若对指数期细胞而非稳定期细胞施加热胁迫,将发现不同的适应性突变和提供热休克抗性的机制。为检验此假设,我们对13个独立指数期 E. coli 谱系进行热循环,共9轮15分钟热休克,从48 °C起始,以0.5 °C递增至52 °C(见材料与方法)。基于先前研究,我们预期发现影响分子伴侣和蛋白聚集体调控的突变体,因此使用 E. coli MG1655 ClpB-msfGFP 作为循环野生型菌株,因为它荧光报告热休克反应(HSR)和蛋白聚集体的存在(数据未显示)。注意该菌株的热休克抗性与MG1655无显著差异(数据未显示),因此以下将MG1655 ClpB-msfGFP菌株称为亲本MG1655菌株。我们还纳入两个循环但未暴露于热休克的对照谱系。我们显示,9轮后,每个热循环谱系(MT1–13)相比亲本MG1655菌株和两个对照谱系(C1–2)平均灭活低约1.4 log(图1)。
令人惊讶的是,对循环谱系ClpB-msfGFP荧光模式的荧光显微表征显示,热休克后荧光水平或定位与亲本或对照谱系相比无差异(数据未显示)。这反对HSR在观察到的热休克抗性中的作用。
【数据】谱系:13个热循环谱系(MT1–13)+ 2个对照谱系(C1–2);热休克:15 min,48 °C至52 °C,0.5 °C递增,共9轮;抗性提升:平均灭活低约1.4 log(相比亲本MG1655和对照);荧光报告:ClpB-msfGFP无差异;检测限:1,000 CFU/mL
3.2 MgrB功能缺失突变导致热休克抗性增加
我们从每个突变谱系的终点培养物纯化单克隆,并对其中三个进行全基因组测序。测序(结果列于表1)揭示MT8和MT11均在mgrB编码序列中 incur 不同突变。因此,我们通过聚合酶链反应(PCR)和Sanger测序检查所有其他纯化突变克隆的mgrB位点。引人注目的是,该分析显示13个谱系中有10个在mgrB开放阅读框(ORF)或启动子区域发生突变(补充表4)。mgrB中不同推定功能缺失突变的高流行率促使我们在亲本MG1655菌株中缺失mgrB,并将该突变体的热休克抗性与亲本MG1655菌株及MT11(其唯一突变为mgrB突变(表1))比较(图2)。
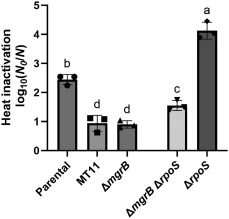
这证实mgrB的干净缺失表型模拟了MT11的热休克抗性,表明MgrB缺失是我们定向进化实验中获得的熱休克抗性的因果因素。mgrB基因编码一个小型内膜蛋白,抑制PhoPQ双组分系统(TCS)的活性(Lippa & Goulian, 2009; Salazar et al., 2016)。Salmonella Typhimurium中的研究表明,PhoQ感知多种信号,包括低周质Mg²⁺浓度(Véscovi et al., 1996)、阳离子抗菌肽(Bader et al., 2003, 2005; Shprung et al., 2012)和低pH(Prost et al., 2007)。激活的PhoQ自磷酸化并将其磷酸基团转移至PhoP,后者作为转录因子调控参与Mg²⁺摄取、抗菌素抗性、脂多糖(LPS)修饰和毒力的基因(Groisman et al., 2021)。mgrB自身表达由PhoPQ TCS上调,但通过直接与PhoQ相互作用,以负反馈环作用,将PhoPQ活性 dampening 至新稳态(Lippa & Goulian, 2009; Salazar et al., 2016)。因此,MgrB功能缺失增加PhoPQ的基线活性,从而上调PhoP依赖基因(Lippa & Goulian, 2009; Salazar et al., 2016),我们假设其中一个或多个基因是观察到的热休克抗性的因果因素。
【数据】测序谱系:MT8、MT11(全基因组测序);mgrB突变谱系:13个中10个(ORF或启动子区);验证方法:PCR、Sanger测序;表型模拟:ΔmgrB缺失重现MT11抗性;突变类型:功能缺失;PhoQ信号:低周质Mg²⁺、阳离子抗菌肽、低pH;调控:PhoPQ正调控mgrB,MgrB负反馈抑制PhoQ
3.3 ΔmgrB介导的热休克抗性不依赖RpoS
一个明显的PhoP依赖候选基因是rpoS(编码稳定期sigma因子RpoS或σS),因其被显示由PhoPQ上调(Bougdour et al., 2008; Xu et al., 2019)、参与热休克抗性(Cheville et al., 1996; Notley-McRobb et al., 2002; Vanlint et al., 2013)以及向增加热休克抗性的进化(Gayán et al., 2016)。然而,我们能够显示在ΔrpoS背景中删除mgrB仍提供改善的热休克抗性,尽管未达亲本MG1655水平,表明少数响应可能仍通过rpoS起作用(图2)。尽管如此,mgrB缺失使ΔrpoS突变体的热休克抗性改善约380倍。注意rpoS缺失突变体比亲本MG1655菌株热敏感得多,这与一份报告显示RpoS在热抗性中的作用不限于稳定期一致(Evans et al., 2019)。
【数据】菌株:ΔmgrB、ΔrpoS、ΔmgrBΔrpoS、亲本MG1655;ΔmgrB在ΔrpoS背景中抗性改善:约380倍;ΔrpoS热敏感性:显著高于亲本;RpoS作用:不限于稳定期;图:图2
3.4 ΔmgrB介导的热休克抗性依赖mgtA
在排除RpoS在mgrB介导的热休克抗性中的主要作用后,我们的注意力被吸引到MT5的纯化克隆,其全基因组测序分析揭示rpoA基因中的保守突变(T116S)和位于mgtL与mgtA基因之间的基因间突变(表1)。重要的是,mgtLA操纵子由PhoP正调控(Kato et al., 1999),因此可能是提供观察到的热休克抗性的PhoP下游靶标。事实上,mgtL编码一个小型上游前导肽,在mgtA表达中具有调控功能,mgtA编码Mg²⁺转运蛋白(Park et al., 2010)。为确定mgtLA操纵子中的该基因间突变是否可能是MT5热休克抗性的因果因素,我们在亲本MG1655菌株中合成重建了基因间mgtLA突变,并将其热休克抗性与(i)构建的mgtA缺失突变体、(ii)MT5纯化克隆和(iii)亲本MG1655菌株比较(图3)。
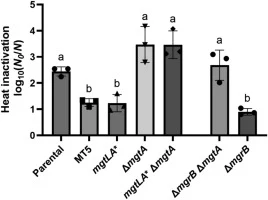
这确实证实基因间mgtLA突变表型模拟MT5突变体,意味着基因间mgtLA突变(而非rpoA突变)是MT5观察到的热休克抗性的因果因素。我们进一步显示MT5与重建的基因间mgtLA突变体之间生长无明显差异(补充图2),表明 incurred 的rpoA突变是偶然发生的,不需要补偿任何生长缺陷。有趣的是,基因间mgtLA突变可能不损害mgtA表达,因为在亲本MG1655菌株中合成删除mgtA并不表型模拟重建的基因间mgtLA突变所观察到的改善的热休克抗性(图3)。最后,我们确定基因间mgtLA突变对热休克抗性的效应通过MgtA起作用,因为在突变mgtLA背景中删除mgtA将热休克抗性恢复至ΔmgtA菌株水平(图3)。由于mgtA由PhoPQ TCS正调控,很容易假设MgrB缺失通过其对mgtA表达的效应改善热休克抗性。这确实被证明是事实,因为在ΔmgrB背景中删除mgtA显著降低热休克抗性(图3)。
【数据】菌株:MT5(rpoA T116S + 基因间mgtLA突变)、重建基因间mgtLA突变体、ΔmgtA、ΔmgtLA突变+ΔmgtA、ΔmgrB、ΔmgrBΔmgtA、亲本MG1655;MT5突变:rpoA T116S、mgtL-mgtA基因间突变;表型模拟:基因间mgtLA突变重现MT5抗性;生长:MT5与重建突变体无差异;mgtA缺失:不表型模拟基因间突变抗性;ΔmgrBΔmgtA:抗性显著降低;图:图3
3.5 mgtA上调是热休克抗性增加的原因
mgtA基因编码一个Mg²⁺转运蛋白,通过两个感觉输入在Mg²⁺耗竭时被诱导:周质Mg²⁺变化……
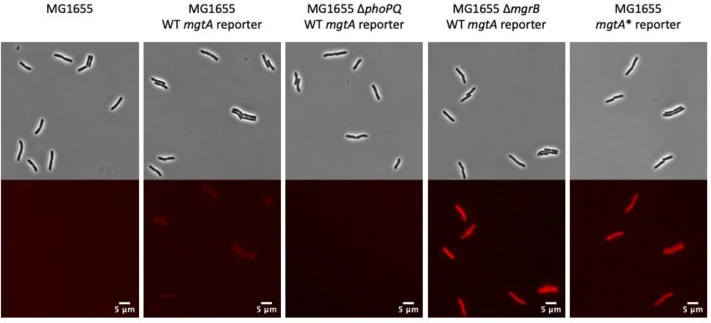
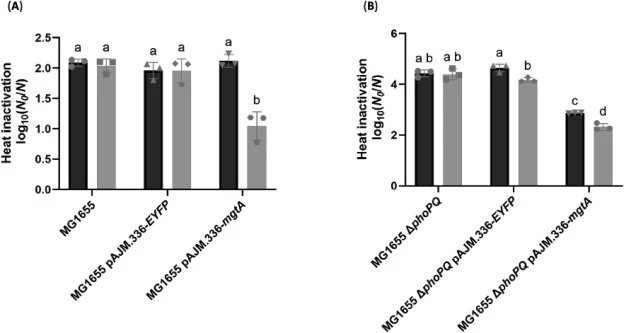
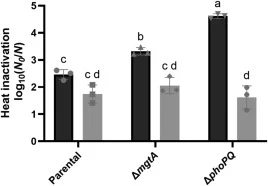
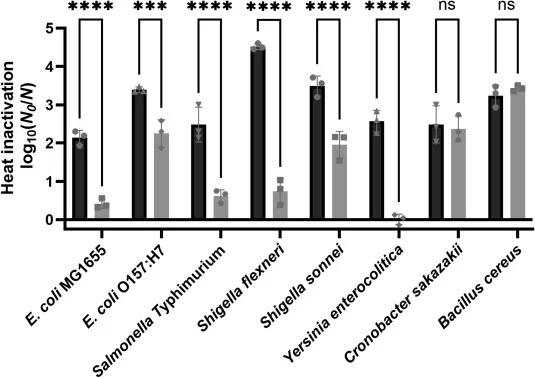
【数据】基因:mgtA(Mg²⁺转运蛋白);诱导条件:Mg²⁺耗竭;感觉输入:周质Mg²⁺变化(原文节选至此中断,后续内容未详述);图:图4–8对应mgtA表达报告验证、质粒-borne mgtA互补、Mg²⁺补充及病原菌实验(原文节选未含对应正文,图注见清单)
讨论与解读
与先前针对生长停滞稳定期 E. coli 细胞的定向进化研究不同(Berdejo et al., 2024; Mortier et al., 2021),本研究中指数期进化的 E. coli 突变体均未显示热休克蛋白基础过表达的证据(以ClpB-msfGFP报告子为代理)。相反,当前突变体的热休克抗性增加几乎无一例外依赖于MgtA Mg²⁺转运蛋白的表达上调。这种上调可通过mgrB功能缺失突变轻易获得——mgrB编码一个小型内膜蛋白,负调控PhoPQ双组分系统,从而增加PhoPQ介导的mgtA表达(Lippa & Goulian, 2009; Salazar et al., 2016)。由于功能缺失突变易于获得,该进化路径在独立分离的突变体中明显占主导。由于遗传上增加mgtA表达似乎对应较低的细胞Mg²⁺缺乏,且外源化学补充Mg²⁺亦独立改善热休克抗性,可得出结论:适当的细胞Mg²⁺稳态对 E. coli 热休克存活至关重要。此外,我们能够证明获得充足Mg²⁺对几种相关致病肠杆菌同样具有热保护作用。除MgrB缺陷外,一种更微妙的上调MgtA活性的方式通过功能获得性突变发生……
编译者解读:本研究的方法选择颇具巧思——用ClpB-msfGFP报告子直接否定了"热休克蛋白上调"这一直觉预期,把注意力引向Mg²⁺稳态这一被忽视的维度。对合成生物学而言,mgrB作为单基因敲除即可赋予约1.4 log热抗性,是理想的底盘改造靶点;而培养基补Mg²⁺即可表型模拟,更提供了无需遗传改造的过程控制手段。局限在于:节选未展示mgtA上调如何具体保护细胞免受热损伤的分子机制,且LB批次间Mg²⁺差异提示实验可重复性需严格管控培养基来源。
参考来源
期刊:Food Research International, 2026
DOI:10.1016/j.foodres.2026.120975
DOI: 10.1016/j.foodres.2026.120975