来源:Recombinant sucrose isomerases in Pichia pastoris for the production of isomaltulose as an alternative sweetener(Food and Bioproducts Processing)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
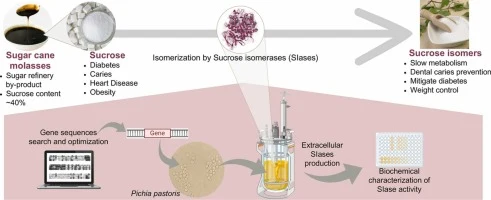
蔗糖过量摄入与肥胖、II型糖尿病和龋齿等健康问题密切相关,寻找健康的替代甜味剂成为食品工业的迫切需求。本研究通过生物信息学筛选获得布氏伯克霍尔德菌(Burkholderia ubonensis)蔗糖异构酶和首次报道的不列颠朗斯代尔菌(Lonsdalea britannica) putative 蔗糖异构酶,在毕赤酵母中实现异源分泌表达,系统表征了两种重组酶的pH、温度、金属离子响应特性,并首次尝试以粗酶液直接转化甘蔗糖蜜中的蔗糖生成异麦芽酮糖,省去了酶纯化步骤,为糖蜜的高值化利用提供了简化生物催化平台的初步证据。
研究背景
蔗糖是自然界最丰富的二糖,主要来源于甘蔗和甜菜,是食品与烘焙工业中无处不在的甜味剂。它由一分子葡萄糖和一分子果糖通过1–2键连接而成,在消化道中快速水解导致血糖升高,加剧健康隐患。口腔微生物发酵蔗糖产生的多糖参与牙菌斑形成和牙釉质脱矿,促进龋齿发生。肥胖、II型糖尿病、心血管疾病等与蔗糖消费相关的不良健康效应,使寻找更健康的替代甜味剂变得紧迫。含糖饮料和烘焙食品驱动的糖消费增长,促使研究者开发在保持甜味的同时降低糖含量的新策略。天然与人工蔗糖替代物均已被探索:阿斯巴甜、糖精等人工甜味剂虽无热量,但其安全性和代谢效应引发担忧,从而推动了对天然替代物的兴趣。在天然替代物中,蔗糖异构体如异麦芽酮糖和海藻酮糖备受关注——异麦芽酮糖甜度约为蔗糖的50%,具有低血糖指数、抗龋齿、高稳定性等优点。微生物蔗糖异构酶(SIase)催化蔗糖的α-1,2糖苷键重排为α-1,6键,是异麦芽酮糖生物合成的关键酶。本研究旨在从已知SIase序列出发挖掘新酶,在GRAS宿主毕赤酵母中实现重组表达,并评估其直接转化甘蔗糖蜜这一丰富农工业副产物的可行性。
研究方法
2.1 生物信息学分析
采用BlastP程序在GenBank数据库中对新型SIase多肽序列进行生物信息学发掘,以布氏伯克霍尔德菌(GenBank: ABC33903.1)和胡萝卜软腐果胶杆菌(GenBank: AGT14432.1)的SIase作为查询序列。检索之后,使用InterProScan工具和NetNGlyc 1.0对所得序列进行信号肽、N-糖基化位点、基序和结构域的预测分析(Blum et al., 2025; Gupta and Brunak, 2002)。功能结构域利用InterProScan中集成的Pfam数据库鉴定,催化残基利用保守结构域数据库(CDD)预测(Paysan-Lafosse et al., 2025)。潜在N-糖基化位点使用NetNGlyc 1.0预测,采用默认预测阈值0.5(Gupta and Brunak, 2002)。仅将预测潜力高于0.5的Asn-Xaa-Ser/Thr序列子视为预测的N-糖基化位点。使用MEGAX11版本11.0.13中实现的ClustalW算法与其他已知SIase进行序列比对(补充表S1)(Tamura et al., 2021)。系统发育分析采用邻接法(Neighbor-Joining),替换模型为Poisson校正。共识树由500次bootstrap重复推断。考虑到在毕赤酵母中的克隆操作,本研究得到的SIase核苷酸序列(去除天然信号肽)使用密码子适应工具(Jcat)按酵母密码子使用频率进行优化(Grote et al., 2005)。
【数据】数据库:GenBank;查询序列:ABC33903.1、AGT14432.1;预测工具:InterProScan、NetNGlyc 1.0;糖基化阈值:0.5;系统发育方法:Neighbor-Joining;bootstrap重复:500次;密码子优化工具:Jcat;序列比对软件:MEGAX11 v11.0.13
2.2 菌株与分子克隆
LB的推定SIase基因和BU的SIase基因由Gene Universal(美国)合成并克隆至pPic9K质粒的EcoRI和NotI位点。这些基因插入受甲醇诱导的pAOX启动子控制之下。大肠杆菌Top10(Invitrogen,美国)菌株用于pPic9K-LB和pPic9K-BU质粒的扩增与保存,毕赤酵母GS115(Invitrogen,美国)酵母菌株用于这些基因的异源表达。每个质粒通过电穿孔导入酵母细胞。在此之前,电感受态酵母细胞按供应商方案(Invitrogen,美国)制备,质粒使用限制性内切酶SalI(New England Biolabs,英国)线性化。将80 μL电感受态细胞与3 µg线性化质粒的混合物在标准电穿孔条件下(2.5 kV,25 μF,0.4 cm间隙比色皿)使用Gene Pulser II电穿孔仪(BioRad,美国)进行处理。推定阳性克隆在再生葡萄糖培养基(RDM)中培养和筛选:186 g/L山梨醇;20 g/L琼脂;20 g/L葡萄糖;13.4 g/L YNB;补充4 × 10⁻⁴ g/L D-生物素和50 mg/L的每种氨基酸(L-谷氨酸、L-异亮氨酸、L-亮氨酸、L-赖氨酸和L-甲硫氨酸)(Sigma Aldrich,美国)。转化后,携带SIase基因的克隆通过菌落PCR鉴定,使用毕赤酵母通用引物Alphafor(5′-CATTTTCCAACAGCACA-3′)和AOX1-R(5′-GCAAATGGCATTCTGACATCC-3′)(Macrogen,韩国)。细胞悬液和PCR混合液按Akada等报道的方法制备,细胞悬液后增加−20 °C孵育1小时(Akada et al., 2000)。PCR标准循环参数采用Pichia Expression Kit手册(Invitrogen,美国)。PCR扩增产物用1%琼脂糖凝胶分析,以1 kbp marker(PB-L,阿根廷)作为分子量标记。必要时,扩增产物用Monarch® DNA Gel Extraction Kit(New England BioLabs,美国)从凝胶中纯化,并通过Sanger法测序(Macrogen,韩国)。
【数据】质粒:pPic9K;限制性内切酶:EcoRI、NotI、SalI;电穿孔条件:2.5 kV、25 μF、0.4 cm比色皿;质粒用量:3 µg;感受态细胞体积:80 μL;RDM配方:186 g/L山梨醇、20 g/L琼脂、20 g/L葡萄糖、13.4 g/L YNB;D-生物素:4 × 10⁻⁴ g/L;氨基酸:各50 mg/L;PCR产物预期大小:约2 kbp;凝胶浓度:1%;孵育温度:−20 °C;孵育时间:1 h
2.3 锥形瓶培养
通过摇瓶批式培养进行阳性克隆的筛选。将携带BU或LB SIase基因的推定阳性毕赤酵母克隆的单菌落接种于10 mL YPD培养基(10 g/L酵母提取物;20 g/L蛋白胨;20 g/L葡萄糖),于28 °C、200 rpm过夜培养。这些培养物用于接种100 mL缓冲甘油复合培养基(BMGY:10 g/L酵母提取物;20 g/L蛋白胨;13.4 g/L YNB;12.6 g/L甘油;100 mM磷酸钾,pH 6.0;补充4 × 10⁻⁴ g/L D-生物素),培养至600 nm光密度(OD600)达到16。生长阶段结束后,培养物于3920 × g离心10 min(Avanti,Beckman,美国),通过将细胞沉淀重悬于缓冲甲醇复合培养基(BMMY:组成与BMGY相同,但以3.96 g/L甲醇替代甘油)诱导基因表达,初始诱导OD600为60(Chesini et al., 2018)。诱导培养物于28 °C、200 rpm孵育24 h,不再补充甲醇。孵育结束后,每份培养物于4 °C、3920 × g离心10 min(Avanti,Beckman,美国),上清液于−20 °C保存至分析,以根据酶活性筛选阳性克隆。在培养的不同阶段对细胞进行显微镜观察,以监测其形态状态并确认无污染微生物(Lancet Instruments,中国)。
【数据】培养基:YPD、BMGY、BMMY;YPD组成:10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖;BMGY甘油:12.6 g/L;BMGY磷酸钾:100 mM,pH 6.0;BMMY甲醇:3.96 g/L;D-生物素:4 × 10⁻⁴ g/L;培养温度:28 °C;转速:200 rpm;诱导OD600:60;诱导时间:24 h;离心条件:3920 × g、10 min、4 °C;保存温度:−20 °C
2.4 生物反应器培养
批式培养在5 L Biostat B生物反应器(Sartorius,德国)中进行,初始工作体积3 L,空气流量1 L/min,通过溶解氧(DO)级联控制搅拌,DO设定30%,转速范围300–1000 rpm。DO监测使用极谱O₂电极(Mettler Toledo,美国),尾气分析使用O₂顺磁检测器和CO₂红外检测器(Servomex,英国)。基础盐培养基(BSM)组成:9.2 g/L K₂SO₄;2.1 g/L KOH;13.6 g/L H₃PO₄(85%(v/v));7.5 g/L MgSO₄·7H₂O;4.6 g/L CaSO₄·2H₂O;26 g/L甘油(99%(v/v)),补充4 × 10⁻⁴ g/L D-生物素和4 mL/L微量盐(PTM:2 g/L CuSO₄·5H₂O;7 g/L ZnCl₂;0.08 g/L NaI;22 g/L FeSO₄·7H₂O;3 g/L MnSO₄·H₂O;0.2 g/L Na₂MoO₄·2H₂O;0.02 g/L硼酸;0.5 g/L CoCl₂和2 g/L H₂SO₄)。pH通过加入纯NH₄OH(25% v/v)自动调节至5.0。每种情况下,以各菌株在YPD培养基中的过夜培养物(100 mL)作为接种物。批式阶段由DO尖峰判定结束后,补料批式阶段开始,补料培养基同时含甘油和低浓度甲醇以使细胞适应诱导剂的存在(548 g/L甘油、39.6 g/L甲醇、2 × 10⁻⁴ g/L D-生物素和10 mL/L PTM),恒流速率12 mL/h。当补料批式阶段OD600达到100时,诱导阶段开始。诱导阶段通过改变补料培养基组成(776 g/L甲醇、2 × 10⁻⁴ g/L D-生物素和10 mL/L PTM)和流速(3.9 mL/h)启动。诱导阶段持续时间根据定期测定的胞外SIase活性对每份培养物单独确定,当活性不再增加时终止。对于表达BU基因的克隆,该阶段持续22 h;而表达LB基因的克隆培养中,该阶段持续44 h。诱导阶段结束后,培养物于3920 × g离心(Avanti,Beckman,美国)收获,上清液(此后称为酶提取物,EEBU和EELB)保存至分析。每个重组构建体(BU1和LB2)进行了一次5 L生物反应器培养。总蛋白测定在96孔板中采用Bradford法,使用50 µL样品和250 μL按1:5稀释的Bradford试剂(BioRad,美国)。所得吸光度在595 nm测定。校准曲线使用牛血清白蛋白(BSA),浓度范围0–0.08 g/L。
【数据】反应器:5 L Biostat B;工作体积:3 L;空气流量:1 L/min;DO设定:30%;转速:300–1000 rpm;pH:5.0(NH₄OH 25% v/v调节);BSM甘油:26 g/L;PTM:4 mL/L;D-生物素:4 × 10⁻⁴ g/L;补料培养基:548 g/L甘油、39.6 g/L甲醇;补料流速:12 mL/h;诱导补料:776 g/L甲醇;诱导流速:3.9 mL/h;诱导起始OD600:100;BU诱导时间:22 h;LB诱导时间:44 h;离心:3920 × g;Bradford试剂稀释:1:5;样品量:50 µL;试剂量:250 μL;检测波长:595 nm;BSA标准范围:0–0.08 g/L
2.5 酶提取物的蛋白谱分析
(原文此节内容在提供的节选处中断,后续方法细节原文未详述。)
【数据】原文未详述
研究结果
3.1 多肽序列的检索与分析
为鉴定用于生产替代甜味剂的新型推定SIase,以胡萝卜软腐果胶杆菌SIase(GenBank: AGT14432.1)为查询序列在NCBI数据库中进行生物信息学检索,获得多个先前报道的序列。其中,两个候选序列被选用于在GRAS酵母毕赤酵母中进行异源表达:来自布氏伯克霍尔德菌(BU)——原名Pseudomonas mesacidophila(Watzlawick and Mattes, 2009)——的SIase,以及来自不列颠朗斯代尔菌(LB)的推定SIase。BU酶基于其已报道的催化效率被选中,而LB则因其新颖性和缺乏功能表征而被选中。为将这些酶置于已知SIase多样性的背景中,进行了系统发育分析。该分析揭示BU、P. carotovorum和LB聚类于同一分支,提示共享的进化起源(图1,绿色)。还鉴定出包含来自不同微生物来源SIase的其他分支,凸显了该酶家族的多样性,尽管某些成员之间序列相似性很高,例如Protaminobacter rubrum CBS 547.77与Serratia plymuthica ATCC 15928,或Raoultella terrigena与Klebsiella sp. LX3,其序列同一性高达87%(图1,红色和蓝色)。LB与其分支内其他成员的序列比较显示,与BU的同一性为65%,与P. carotovorum为69%,覆盖度为94%。对LB SIase(GenBank: AXW85799.1)——最初从橡树病理生物组基因组数据集中鉴定(Doonan et al., 2019)——的进一步序列分析表明,它属于GH13家族,并与其他已表征的SIase共享结构特征。鉴定出信号肽(残基1–27)和两个保守催化结构域(残基145–214和521–598),与蔗糖异构酶功能家族一致。此外,检测到五个保守催化残基(D239、E294、D369、H367和H143),支持其推定酶功能(Cha et al., 2009)。序列基序分析揭示,先前与SIase间催化行为差异相关的区域存在变异。特别是,据报道影响酶活性和产物分布的RLDRD基序(Zhang et al., 2003),在BU(RYDRA)和P. carotovorum(RLDRA)中呈现替换,在LB中呈现更为分化的序列(LLYRH)。这些氨基酸变化——包括涉及带电残基的替换——可能影响酶构象和催化性质,潜在影响反应结果。然而,这些变异的功能意义需要实验验证。此外,考虑到两种SIase在毕赤酵母中的异源表达,预测了潜在N-糖基化位点。NetNGlyc 1.0在每个序列中鉴定出五个Asn-Xaa-Ser/Thr序列子。其中三个位于天然信号肽区域内,因此被排除在进一步考虑之外。在剩余序列子中,每个酶中有一个位点的预测潜力低于预定阈值0.5(BU为0.4129,LB为0.4533),因此不被视为预测的N-糖基化位点。相反,BU中的N470(潜力=0.6949)和LB中的N581(潜力=0.5321)超过预测阈值,被鉴定为潜在N-糖基化位点。总体而言,BU和LB SIase的生物信息学表征提供了结构和进化框架,支持其被选用于毕赤酵母中的异源表达和进一步生化评价。
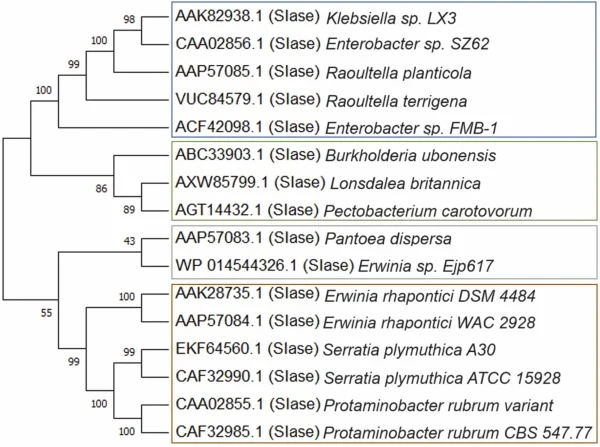
【数据】查询序列:AGT14432.1;LB GenBank登录号:AXW85799.1;LB与BU同一性:65%;LB与P. carotovorum同一性:69%;覆盖度:94%;信号肽:残基1–27;催化结构域:残基145–214和521–598;催化残基:D239、E294、D369、H367、H143;基序:BU为RYDRA、P. carotovorum为RLDRA、LB为LLYRH;糖基化阈值:0.5;BU位点N470潜力:0.6949;LB位点N581潜力:0.5321;BU低于阈值位点:0.4129;LB低于阈值位点:0.4533;序列子数:各5个
3.2 分子克隆
经酵母密码子优化的BU和LB SIase编码序列由Gene Universal(美国)合成并克隆至pPic9K质粒。为促进蛋白质分泌至胞外培养基,序列与α-交配因子分泌信号融合。该方法旨在简化蛋白质回收——异源过表达系统中的常见瓶颈(Zhang et al., 2021)。筛选出组氨酸营养缺陷型回复的毕赤酵母转化子,并针对SIase基因的基因组整合和异源蛋白表达(以酶活性评估)进行筛选(图2)。PCR检测到的阳性克隆——LB2和LB3或BU1、BU8和BU30——产生预期大小的扩增产物,约2 kbp(图2.A)。这些克隆基因的测序确认所有分析克隆的开放阅读框中无突变。这些克隆诱导培养的上清液进一步评估SIase活性,并与野生型毕赤酵母GS115上清液比较,后者对蔗糖无活性(图2.B)。24 h培养上清液的SDS-PAGE分析显示,重组BU克隆中存在约60 kDa的蛋白条带,而GS115对照菌株中缺失(图S1)。所有分析克隆均表现出SIase活性,BU获得的活性值高于LB提取物培养获得的活性值。特别是,BU1显示38.4 ± 0.9 IU/mL,LB2显示0.40 ± 0.04 IU/mL,均由Somogyi-Nelson法测定。
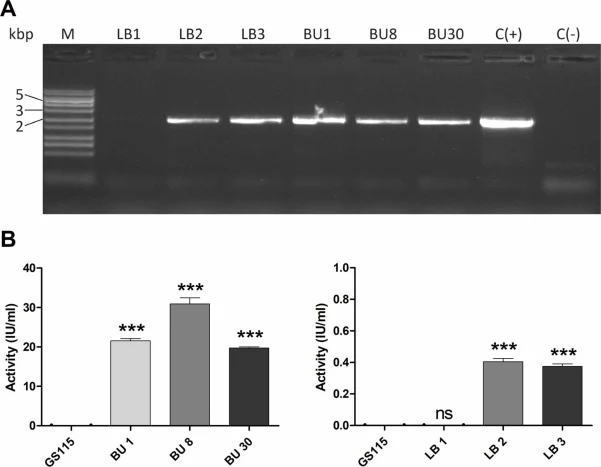
【数据】质粒:pPic9K;融合信号:α-交配因子;PCR产物大小:约2 kbp;蛋白条带:约60 kDa;BU1活性:38.4 ± 0.9 IU/mL;LB2活性:0.40 ± 0.04 IU/mL;培养时间:24 h;检测方法:Somogyi-Nelson法;阳性克隆:LB2、LB3、BU1、BU8、BU30
3.3 生物反应器培养
使用毕赤酵母BU1和LB2克隆在5 L生物反应器中进行两次培养,以过量生产两种重组SIase。这些培养包括三个阶段:批式、补料批式(以低浓度诱导剂进行以使细胞适应)和诱导阶段(加入高浓度甲醇以诱导重组酶表达)。如上所述,这些培养在受控pH和溶解氧条件下进行(pH 5.0,DO通过搅拌级联控制高于30%)。BU和LB批式发酵阶段结束时(由DO测量尖峰确定)达到的生长水平分别为OD600 57.9和62.2。补料批式阶段结束时,以总蛋白浓度评价培养物。BU1补料批式阶段在10 h后结束,总蛋白浓度为0.03 g/L;而LB2补料批式进行23 h,产量为0.15 g/L。补料批式阶段结束时总蛋白浓度的这一差异也反映在SDS-PAGE图谱中(图3.A),其中约60 kDa的蛋白条带(推定对应于重组SIase)在EEBU中强度低于EELB。观察到的分子量与先前在大肠杆菌中表达的BU SIase报道一致(Watzlawick and Mattes, 2009)。此外,评估了诱导阶段的生物量、总蛋白浓度和SIase活性。对于BU1培养,甲醇诱导阶段维持22 h,达到生物量浓度38.1 gDCW/L,产出0.25 g/L总蛋白和80.7 IU/mL EE。此时未观察到SIase活性进一步增加,培养物被收获。对于LB2,由于其SIase活性低,诱导阶段维持44 h。尽管诱导期更长,但与阶段开始时相比,仅观察到胞外总蛋白浓度略有增加(0.15–0.21 g/L),而SIase活性保持低位(0.34 ± 0.02 IU/mL)。因此收获培养物,达到生物量浓度55.3 gDCW/L。如图3.B所示,在诱导阶段和培养结束时,两种酶提取物中均观察到约60 kDa的主要蛋白条带。为确认SDS-PAGE观察到的主要蛋白条带的身份,相应条带通过nanoLC-MS/MS分析。预期的重组SIase在两种酶提取物中均被可靠鉴定。重组BU SIase由42个独特肽段鉴定(原文此处中断)。
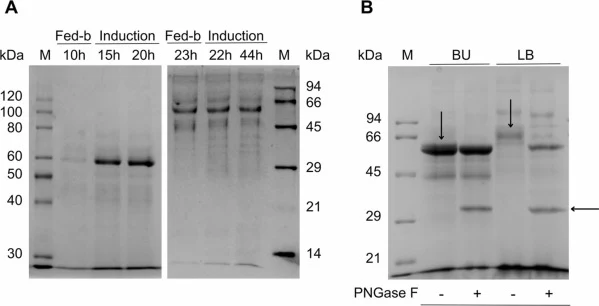
【数据】反应器体积:5 L;pH:5.0;DO:>30%;BU批式终点OD600:57.9;LB批式终点OD600:62.2;BU补料批式时间:10 h;BU补料批式总蛋白:0.03 g/L;LB补料批式时间:23 h;LB补料批式总蛋白:0.15 g/L;BU诱导时间:22 h;BU生物量:38.1 gDCW/L;BU总蛋白:0.25 g/L;BU活性:80.7 IU/mL;LB诱导时间:44 h;LB总蛋白:0.15–0.21 g/L;LB活性:0.34 ± 0.02 IU/mL;LB生物量:55.3 gDCW/L;蛋白条带:约60 kDa;BU鉴定肽段:42个独特肽段
3.4 酶提取物的蛋白谱分析
(原文此节内容在提供的节选处中断,后续结果细节原文未详述。)
【数据】原文未详述
讨论与解读
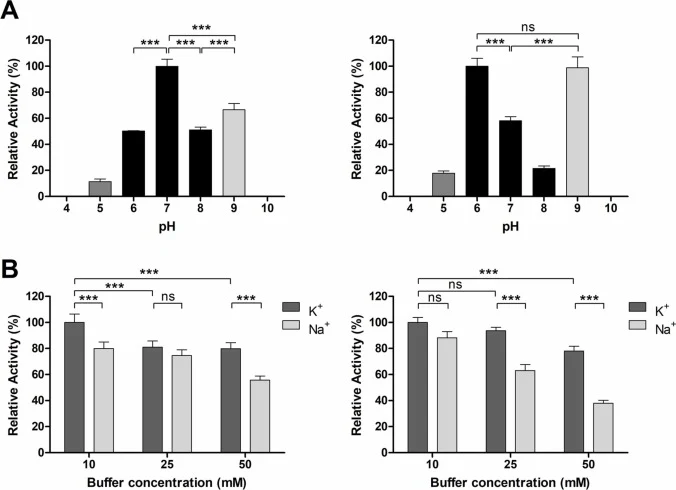
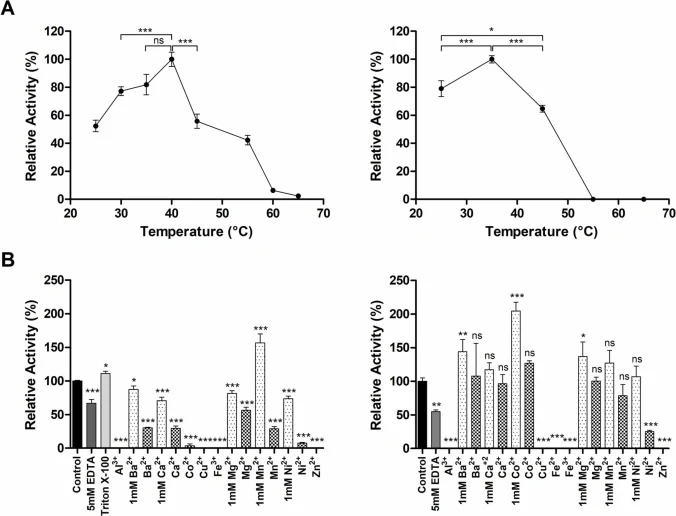
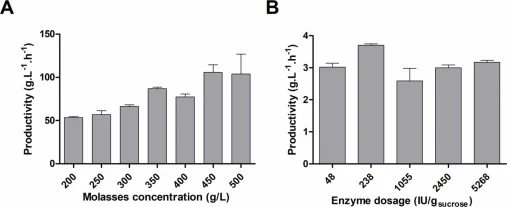
本研究在毕赤酵母中实现了布氏伯克霍尔德菌和不列颠朗斯代尔菌两种蔗糖异构酶的异源表达与表征。据作者所知,这是首次报道不列颠朗斯代尔菌SIase的鉴定与生化表征,扩展了该酶家族的已知多样性。两种重组酶均成功分泌至胞外培养基,并在宽泛的pH和温度范围内表现出活性。尽管系统发育上相关,BU和LB SIase展现出不同的生化特性,包括最适反应条件和在毕赤酵母中表达后糖基化谱的差异。BU的结果为直接使用粗重组酶提取物从甘蔗糖蜜生产异麦芽酮糖的可行性提供了初步证据,后续需进一步研究评估转化性能并优化工艺。总体而言,这些发现为细菌SIase的多样性提供了新见解,并为重组SIase生产和甘蔗糖蜜蔗糖生物转化为异麦芽酮糖的进一步研究奠定了基础。
编译者解读:该研究最实用的亮点是"粗酶液直接催化"——BU1在生物反应器中80.7 IU/mL的胞外活性足以跳过纯化步骤,直接转化糖蜜,大幅降低异麦芽酮糖的生产成本。方法学上,生物信息学预筛+密码子优化+α-因子分泌的组合是毕赤酵母表达真核/细菌酶的成熟路径。局限也很明显:LB酶活性仅0.34 IU/mL,与BU相差两个数量级,且糖蜜转化实验仅在BU上做了初步验证,转化率、产物纯度、糖蜜中杂质抑制等关键工艺数据尚未呈现。从合成生物学视角看,下一步值得对LB进行定向进化或N-糖基化位点改造以提升比活,并将糖蜜转化从摇瓶推进到反应器规模的物料平衡研究。
参考来源
期刊:Food and Bioproducts Processing, 2026
DOI: 10.1016/j.fbp.2026.10.012
DOI: 10.1016/j.fbp.2026.10.012