来源:Modular Xylose-Methanol Co-culture System for Enhanced Catharanthine Production in Pichia pastoris(BioDesign Research)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
长春花碱是抗癌药物长春花碱和长春新碱的关键前体,目前依赖从长春花中低产提取。该研究在毕赤酵母中建立了木糖-甲醇共培养系统:木糖利用型尼泊内酯生产菌株与携带完整长春花碱合成通路的CAN19菌株配对,实现前体供应与下游转化的分工。研究证实木糖不干扰甲醇诱导型启动子,经菌株筛选和接种比例优化,共培养系统长春花碱产量达1633.9 μg/L,较单培养提高4.7倍。
研究背景
单萜吲哚生物碱(MIAs)是一类结构复杂的植物次生代谢产物,包括临床重要的抗癌药物长春花碱和长春新碱。长春花碱是这些二聚体生物碱的直接前体,是可持续生产的关键目标。然而,从长春花中提取长春花碱受限于天然产量低和对栽培条件的强依赖性,导致生产成本高、供应稳定性差。这些局限推动了微生物细胞工厂从头合成长春花碱的研究。近期研究已在酿酒酵母和毕赤酵母中实现长春花碱生产,但产量仍处于微克或毫克每升的较低水平。主要瓶颈在于在微生物底盘内重建长而分支的MIA通路,常导致代谢负担、通路失衡、毒性中间体积累以及辅因子或氧化还原限制。为应对这些挑战,模块化共培养策略应运而生,通过将代谢功能分配到多个工程菌株中来降低单个菌株的代谢负荷,实现更灵活的通路平衡。
研究方法
培养基与试剂
大肠杆菌菌株在37°C下于LB培养基(5 g/L酵母提取物、10 g/L胰蛋白胨、10 g/L氯化钠)中培养,需要时添加0.1 g/L氨苄青霉素。酵母菌株在30°C下于YP培养基(10 g/L酵母提取物、20 g/L蛋白胨)中培养,分别补充2%(w/v)葡萄糖、木糖或甲醇作为碳源,制备YPD、YPX或YPM培养基。SC培养基含1.7 g/L酵母氮源和5.0 g/L硫酸铵,补充2%(w/v)葡萄糖或木糖分别制备SCD或SCX培养基。限制性内切酶、Q5 DNA聚合酶和T4 DNA连接酶购自New England Biolabs(Ipswich,MA)。除非另有说明,其他所有化学品均购自Sigma-Aldrich(St. Louis,MO)。
【数据】大肠杆菌培养温度:37°C;酵母培养温度:30°C;LB培养基组分:5 g/L酵母提取物、10 g/L胰蛋白胨、10 g/L氯化钠;氨苄青霉素浓度:0.1 g/L;YP培养基组分:10 g/L酵母提取物、20 g/L蛋白胨;碳源浓度:2%(w/v);SC培养基组分:1.7 g/L酵母氮源、5.0 g/L硫酸铵
菌株与质粒
大肠杆菌DH5α用于质粒构建和保存。供体质粒通过限制性酶切连接或Gibson组装构建。毕赤酵母菌株按照Lin-Cereghino等人描述的方案进行转化。菌株构建时,将1 μg PCR扩增的线性表达盒与0.5 μg相应的gRNA质粒共转化。转化子在含0.1 g/L博来霉素、0.2 g/L G418或0.2 g/L潮霉素B的YPD琼脂平板上筛选。本研究所用质粒、菌株和寡核苷酸分别列于补充表S1、S2和S3。
【数据】转化DNA用量:1 μg线性表达盒 + 0.5 μg gRNA质粒;筛选抗生素浓度:0.1 g/L博来霉素、0.2 g/L G418、0.2 g/L潮霉素B
荧光强度分析
单菌落预培养于5 mL YPD培养基中至饱和,然后以1%(v/v)接种量转入24孔板中的3 mL新鲜YPD培养基,在30°C、250 rpm下培养48小时。收集细胞,重悬于诱导培养基(YPM或补充2%(w/v)葡萄糖、甘油或木糖的YPM)中,诱导72小时。使用Tecan酶标仪(激发561 nm,发射620 nm)测定mCherry荧光,以OD600归一化,并与野生型菌株GS115比较。
【数据】预培养体积:5 mL;接种量:1%(v/v);培养体积:3 mL;培养温度:30°C;转速:250 rpm;预培养时间:48h;诱导时间:72h;激发波长:561 nm;发射波长:620 nm;补充碳源浓度:2%(w/v)
发酵与分析方法
尼泊内酯生产: 单菌落接种于5 mL YPD培养基,30°C、250 rpm过夜培养。种子培养物以初始OD600为0.2转入含3 mL YPD或YPX培养基和400 μL肉豆蔻酸异丙酯(IPM)的24孔板中,30°C、250 rpm培养72小时。每24小时补充葡萄糖或木糖至2%(w/v)。发酵后收集有机相,用乙酸乙酯稀释,使用先前建立的方法通过GC–MS(QP2020SE,Shimadzu)分析。
【数据】种子培养体积:5 mL;初始OD600:0.2;培养体积:3 mL;IPM体积:400 μL;培养温度:30°C;转速:250 rpm;发酵时间:72h;补料间隔:每24h;补料浓度:2%(w/v)
长春花碱生产: 尼泊内酯生产菌株和全通路CAN19菌株分别在5 mL YPD培养基中30°C、250 rpm过夜预培养。按指定比例混合培养物,接种到含2%(w/v)木糖和2%(w/v)甲醇的YP培养基的24孔板中。30°C、250 rpm培养72小时,两种碳源每天补充至相同初始浓度。发酵后,取500 μL培养物裂解,用500 μL乙酸乙酯萃取1小时,13,523 × g离心10分钟,有机相使用先前建立的方法通过LC–MS(LCMS-8045,Shimadzu)分析。
【数据】预培养体积:5 mL;培养温度:30°C;转速:250 rpm;木糖浓度:2%(w/v);甲醇浓度:2%(w/v);发酵时间:72h;补料频率:每天;裂解液体积:500 μL;萃取剂体积:500 μL乙酸乙酯;萃取时间:1h;离心力:13,523 × g;离心时间:10min
NEPX3共培养最终种群组成: 通过差异平板计数法测定。培养物系列稀释后涂布于SCD和SCX琼脂平板。由于NEPX3和CAN19均可在SCD上生长,SCD上的菌落数代表总活菌种群。由于仅NEPX3携带木糖利用通路并在SCX上形成菌落,CAN19活菌种群通过从SCD总菌落数中减去SCX菌落数计算。
【数据】方法:差异平板计数法;培养基:SCD和SCX琼脂平板;计算方式:CAN19活菌数 = SCD总菌落数 − SCX菌落数
研究结果
木糖与毕赤酵母甲醇诱导表达兼容
为在毕赤酵母中建立共培养系统,首先评估了木糖能否与甲醇联合使用而不影响甲醇诱导的通路表达。在PpHR3背景中构建了两个甲醇诱导型报告系统,包括AOX1p驱动的荧光蛋白(mCherry)和由甲醇诱导型启动子(AOX1p、FLD1p和AOX2mutp)控制的多基因β-胡萝卜素通路。mCherry报告基因可实现AOX1p驱动表达的视觉和定量评估,而β-胡萝卜素产量作为甲醇诱导转录活性的通路级视觉读出。将两种报告菌株在添加或不添加2%(w/v)葡萄糖、甘油或木糖的YPM培养基中培养。葡萄糖和甘油强烈抑制mCherry荧光,与甲醇利用的碳分解代谢阻遏一致。相比之下,木糖无抑制作用,荧光水平与YPM中相当甚至略高(图2A)。β-胡萝卜素通路观察到类似趋势:木糖补充的培养物保持强烈的橙色色素沉着,与YPM培养物相当,而葡萄糖和甘油条件导致色素显著减少甚至完全消失(图2B)。在菌落水平进一步证实了这些结果,两种报告基因在YPM和木糖条件下均保持强信号,但被葡萄糖和甘油显著抑制(补充图S1)。为评估PpHR3背景的内源木糖利用能力,比较了其在YPD和YPX培养基中的生长。PpHR3在YPD中生长旺盛,而在YPX中仅观察到边缘生长(补充图S2),表明在测试条件下内源木糖利用能力有限。
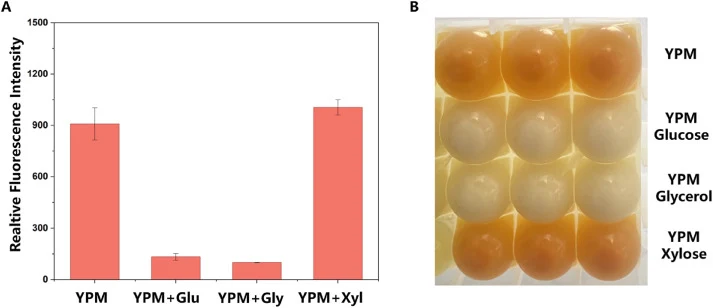
【数据】木糖浓度:2%(w/v);葡萄糖浓度:2%(w/v);甘油浓度:2%(w/v);mCherry激发波长:561 nm;发射波长:620 nm;木糖条件下荧光水平:与YPM相当或略高;葡萄糖/甘油条件下:强烈抑制;PpHR3在YPX中:仅边缘生长
木糖支持工程毕赤酵母菌株生长和尼泊内酯生产
基于木糖与甲醇诱导表达的兼容性,接下来构建了共培养系统的木糖利用上游菌株。选择了四株先前工程改造的尼泊内酯生产菌株(NEPC1、NEPC4、NEPC6和NEPC6P2),具有不同的尼泊内酯生产能力。将氧化还原木糖利用通路(XR–XDH–XKS)引入各菌株,生成NEPX1–NEPX4。所有工程菌株在木糖上生长良好,证实木糖利用功能已成功实现(图3A)。尽管所有菌株在YPX培养基中均能生长,但生物量积累通常低于YPD。尽管存在这些生长差异,所有菌株在木糖条件下均维持了可观的尼泊内酯产量。培养72小时后,NEPX1在YPX中产生311.8 mg/L尼泊内酯,与YPD中的294.4 mg/L相当。NEPX2、NEPX3和NEPX4在YPX中的相应产量分别为537.6 mg/L、622.2 mg/L和772.7 mg/L,相当于YPD水平的77–106%(图3B)。NEPX1在不同碳源间产量几乎相同,而NEPX2–NEPX4在木糖条件下显示适度下降,NEPX4在两种培养基中均持续产生最高产量。因此将这四株NEPX菌株纳入后续共培养系统设计。
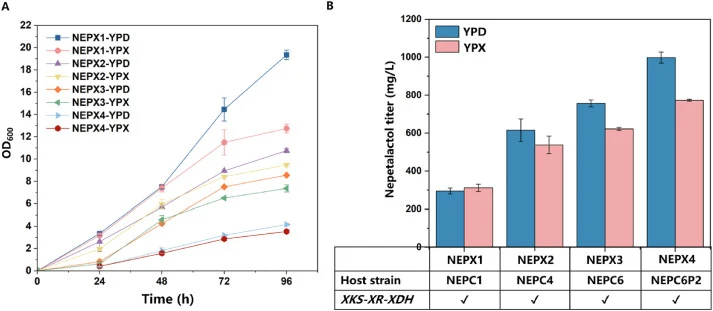
【数据】菌株:NEPX1–NEPX4;培养时间:72h;NEPX1在YPX中尼泊内酯产量:311.8 mg/L;NEPX1在YPD中:294.4 mg/L;NEPX2在YPX中:537.6 mg/L;NEPX3在YPX中:622.2 mg/L;NEPX4在YPX中:772.7 mg/L;YPX/YPD产量比:77–106%
共培养前体供应增强提高毕赤酵母长春花碱产量
基于木糖支持代谢与甲醇诱导表达的兼容性,接下来评估了通过将尼泊内酯生产菌株NEPX1–NEPX4与CAN19(携带完整长春花碱生物合成通路的菌株)配对来增强前体供应的共培养策略。CAN19携带完整的从头长春花碱生物合成通路,其中尼泊内酯经STR模块(IO、CYADH2、7DLGT、7DLH、LAMT、SLS、STR和TDC)依次转化为strictosidine,再经CAN模块(SGD、GS、GO、Redox 1、Redox 2、SAT、PAS、DPAS和CS)进一步转化为长春花碱,所有基因均由甲醇诱导型启动子驱动。为评估NEPX菌株的前体供应能力,定量了NEPX1–NEPX4在24、48和72小时的胞内和胞外尼泊内酯水平。整个培养过程中尼泊内酯主要在胞外组分中检测到(补充图S3),表明尼泊内酯的胞外释放,支持其作为共培养系统中额外前体的可用性。接下来通过将NEPX1–NEPX4与CAN19配对评估长春花碱生产。为指导初始接种比例设计,比较了CAN19和NEPX1–NEPX4在各自碳源条件下的单培养生长特性。菌株表现出不同的生长行为,NEPX菌株在较晚时间点通常达到比CAN19更高的生物量(补充图S4)。考虑到这些生长差异和NEPX1–NEPX4不同的尼泊内酯生产能力(图3B),使用1:1、1:4和1:9的初始NEPX与CAN19比例作为标准化初步系列,逐步增加CAN19比例,比较不同前体供应和下游转化平衡。酵母共培养在补充2%(w/v)木糖和2%(w/v)甲醇的YP培养基中培养,72小时后定量OD600、长春花碱滴度和细胞密度归一化产量(图4A-C)。尽管CAN19单培养达到最高最终生物量,但仅产生306.4 μg/L长春花碱。相比之下,多个NEPX–CAN19共培养配置尽管整体生物量降低,但产量显著更高。长春花碱产量强烈依赖于所有菌株组合的初始接种比例。1:1比例一致导致最低产量。将CAN19比例增加至1:4改善了NEPX1和NEPX2系统的长春花碱产量,而NEPX3和NEPX4共培养在1:9比例时达到最大产量。NEPX3-CAN19共培养在1:9时达到1511.5 μg/L长春花碱,较单培养提高4.9倍。长春花碱比产量达到212.7 μg/L/OD600,提高9.8倍,进一步表明通路效率改善超出了生长效应。为进一步研究共培养过程中的前体动态,检测了测试的NEPX–CAN19共培养中尼泊内酯的积累。整个培养过程中尼泊内酯维持在极低水平(<10 mg/L)或未检测到,可能是由于共培养条件下前体利用和/或尼泊内酯挥发。尽管NEPX4在单培养中表现出最高的尼泊内酯生产能力,其在1:9条件下的共培养性能与NEPX3相当。这些结果表明共培养性能受前体可用性和CAN19下游生物合成能力的共同影响,而非仅取决于前体产量。基于这些结果,NEPX3–CAN19组合在测试组合中表现最佳,被选用于后续接种比例优化。
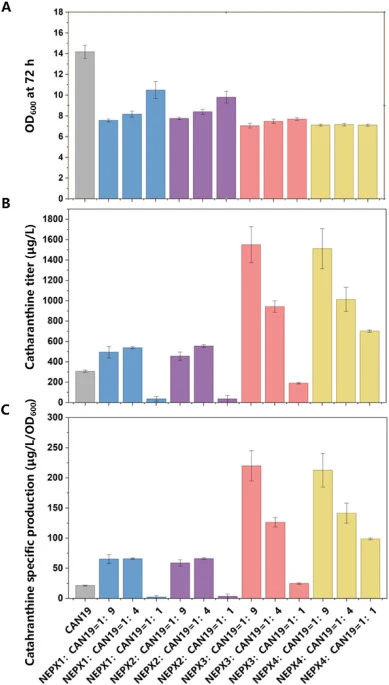
【数据】CAN19单培养长春花碱产量:306.4 μg/L;NEPX3-CAN19(1:9)长春花碱产量:1511.5 μg/L;较单培养提高:4.9倍;比产量:212.7 μg/L/OD600;比产量提高:9.8倍;尼泊内酯水平:<10 mg/L或未检测到;木糖浓度:2%(w/v);甲醇浓度:2%(w/v);培养时间:72h
长春花碱生产初始接种比例优化
接下来系统优化接种比例以进一步提高长春花碱产量。将NEPX3与CAN19比例从1:4变化至1:34。在所有条件下,最终OD600保持相对恒定,范围为7.8至8.4(图5A),显著低于CAN19单培养(约16)。相比之下,长春花碱滴度在共培养比例间变化显著(图5B)。NEPX3–CAN19比例为1:9时在测试比例中产生最高长春花碱滴度,达到1633.9 μg/L,对应……
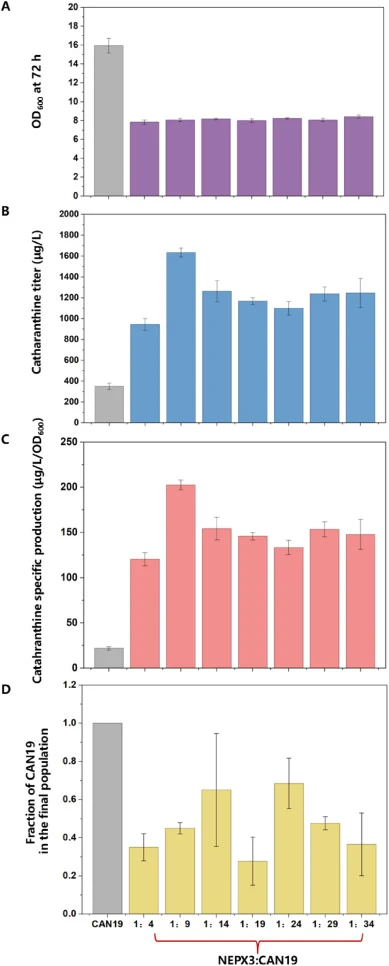
【数据】NEPX3:CAN19比例范围:1:4至1:34;最终OD600范围:7.8–8.4;CAN19单培养OD600:约16;1:9比例长春花碱滴度:1633.9 μg/L
讨论与解读
微生物共培养工程已成为在多个菌株间组织复杂生物合成通路、缓解单培养系统中难以解决的代谢约束的有效策略。尽管该策略已在大肠杆菌和酿酒酵母等模式微生物中充分建立,但在甲基营养型酵母中的应用仍相对有限,尤其是植物天然产物生物合成方面。例如,先前报道的毕赤酵母共培养依赖甲醇作为唯一碳源,而该宿主中的混合碳源共培养策略探索较少。本研究通过将木糖与甲醇诱导系统整合,在毕赤酵母中建立了木糖-甲醇共培养系统。关键发现是木糖作为非阻遏性碳源,不干扰AOX1p驱动或甲醇诱导的通路表达,使两个代谢模块能在同一培养中发挥作用而不产生明显阻遏。这实现了基于共培养的前体供应增强策略:木糖支持额外的尼泊内酯生产,而甲醇驱动CAN19中完整长春花碱生物合成通路的表达。工程上游菌株在木糖培养基中维持了葡萄糖条件下77–106%的尼泊内酯产量,高于已报道的若干木糖利用酿酒酵母系统。
编译者解读: 该研究的巧妙之处在于利用毕赤酵母天然的甲醇诱导表达系统与异源木糖利用通路的正交性,实现了碳源层面的代谢分工——木糖供能供前体,甲醇专司诱导,避免了葡萄糖的分解代谢阻遏。1633.9 μg/L的产量虽仍处于微克级,但4.7倍的提升幅度证明了共培养策略在复杂植物通路中的有效性。局限在于尼泊内酯的胞外积累与挥发可能导致前体损失,且CAN19下游通路的催化效率仍是产量瓶颈。未来若能将木糖代谢流进一步导向乙酰辅酶A供应,并优化CAN模块的酶活平衡,该系统有望向毫克级迈进。
参考来源
期刊:BioDesign Research, 2026
DOI: 10.1016/j.bidere.2026.100127
DOI: 10.1016/j.bidere.2026.100127