来源:Integrating 3D genome engineering with metabolic optimization to enhance spermidine biosynthesis in Bacillus amyloliquefaciens(Chemical Engineering Journal)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
合成生物学策略长期忽视基因组空间组织对代谢网络的调控作用。本研究以解淀粉芽孢杆菌HSPM1为底盘,鉴定出影响基因组形态与亚精胺合成的调控蛋白YpuF。敲除ypuF后,speEB操纵子在差异表达基因中转录倍数变化最高;高分辨率三维基因组图谱揭示ΔypuF中speEB与RNA聚合酶β/β'亚基基因(rpoB/C)之间形成新的空间接触。基于CRISPR-dCas9的靶向实验证实该空间接触是speEB转录升高和亚精胺积累的主要驱动因素。整合ypuF敲除、speEB过表达与摇瓶补料分批发酵,亚精胺产量达到1.94 g/L。
研究背景
亚精胺(N1-(3-氨丙基)丁烷-1,4-二胺)是一种天然多胺化合物,广泛分布于植物、动物和微生物中,具有显著的细胞保护特性,在延缓衰老、改善心血管功能和增强神经保护方面效果突出。随着全球人口老龄化加速和亚健康状态日益普遍,对缓解功能衰退、改善认知表现的策略需求愈发迫切。亚精胺作为新兴营养强化剂,在维持机体健康方面应用前景明确。全球亚精胺市场快速增长,预计到2030年市场规模将超过6亿美元。目前商业化亚精胺生产主要依赖植物提取,但提取效率低、分离纯化困难、成本高昂(约20,000元/公斤)。化学合成虽可实现规模化生产,但副产物多且常残留毒性物质,严重限制了亚精胺的规模化应用和推广。因此,通过合成生物学手段构建高效微生物细胞工厂已成为关键路径。
当前合成生物学策略大多忽略基因组空间组织——这一与全局代谢网络和基因表达调控密切相关的维度。本研究以解淀粉芽孢杆菌HSPM1为模型菌株,开发三维(3D)基因组工程策略以提升亚精胺产量。
研究方法
2.1 菌株与生长条件
本研究使用的菌株和质粒列于表S1,所用引物列于表S2。所有用于基因过表达、互补和敲除的菌株均衍生自解淀粉芽孢杆菌HSPM1。菌株通常保存在−80 °C超低温冰箱中。首先,挑取单菌落接种至液体LB培养基,37 °C培养至OD600为4,作为种子液。随后,以3%接种量转接至发酵培养基(40 g/L木糖、2.5 g/L NaCl、6.3 g/L (NH4)2SO4、3 g/L K2HPO4、3 g/L天冬氨酸、10 g/L蛋白胨、20 g/L玉米浆、2 g/L尿素,pH调至6.5),在37 °C、143 rpm条件下发酵。补料分批发酵中,初始发酵培养基组分为:木糖30 g/L、NaCl 2.5 g/L、(NH₄)₂SO₄ 6.3 g/L、蛋白胨10 g/L、玉米浆10 g/L、KH₂PO₄ 3.0 g/L、MgSO₄·7H₂O 4.2 g/L、尿素2 g/L、谷氨酸3 g/L。用氨水将pH调至6.5。此外,在发酵24 h和48 h时补加1%(w/v)木糖。
【数据】菌株:解淀粉芽孢杆菌HSPM1及其衍生菌株;培养基:LB(种子)、发酵培养基(40 g/L木糖等);温度:37 °C(培养)、−80 °C(保存);接种量:3%;转速:143 rpm;pH:6.5;补料:24 h和48 h各补加1%木糖
2.2 菌株与质粒构建
基因敲除菌株的构建基于此前方法[41]。本研究中构建了Δsmc、ΔscpB、ΔypuF和ΔypuI敲除菌株(表S1)。质粒pHY300用于表达scpA、ypuF和smc基因。具体而言,将P43启动子、相应基因片段和tamyL终止子融合后插入pHY300质粒。上述基因的过表达/互补质粒均已成功构建(表S1)。质粒pHT254用于表达rpoB和rpoC基因。质粒pJOE8999用于构建CRISPR-dCas9系统。具体而言,将pJOE8999质粒骨架、dcas9、RNA聚合酶rpoB或rpoC以及sgRNA片段扩增并无缝克隆在一起(表S1)。这些质粒随后转入HSPM1菌株,用于遗传和表型分析。
【数据】质粒:pHY300(过表达/互补)、pHT254(rpoB/rpoC表达)、pJOE8999(CRISPR-dCas9);启动子:P43;终止子:tamyL;敲除基因:smc、scpB、ypuF、ypuI;表达基因:scpA、ypuF、smc、rpoB、rpoC
2.3 亚精胺检测
亚精胺检测方法参照此前文献[42]。首先,用3倍体积的0.4 M HClO4从发酵液中提取亚精胺。随后,混合物在10,000 ×g离心5 min。然后,将250 μL离心上清液、100 μL 1,7-二氨基庚烷(1 mg/mL)、75 μL饱和NaHCO3、50 μL 2 M NaOH和500 μL丹磺酰氯(5 mg/mL)充分混合。将混合物置于50 °C避光反应45 min。然后加入25 μL 25%氨水,混匀,继续在50 °C反应15 min。最后加入30 μL 6 M HCl和575 μL乙腈,混匀,10,000 ×g离心5 min收集上清,经0.22 μm有机膜过滤。亚精胺含量通过HPLC检测。使用Agilent 1260 HPLC系统和Agilent Zorbax eclipse xdb-C18色谱柱(4.6 mm × 250 mm,5 μM)。流动相为水和乙腈,采用梯度洗脱程序检测亚精胺,设置如下:0–3 min:水50%,乙腈50%;20 min:水10%,乙腈90%;23 min:水10%,乙腈90%;25–30 min:水50%,乙腈50%。柱温:30 °C;紫外吸收波长:254 nm;进样量:10 μL;流速:1 mL/min。
【数据】提取剂:0.4 M HClO4(3倍体积);离心:10,000 ×g,5 min;内标:1,7-二氨基庚烷(1 mg/mL,100 μL);丹磺酰氯:5 mg/mL,500 μL;衍生化:50 °C,45 min(避光)+ 15 min(加氨水后);色谱柱:Zorbax eclipse xdb-C18(4.6 mm × 250 mm,5 μM);柱温:30 °C;检测波长:254 nm;进样量:10 μL;流速:1 mL/min
2.4 Hi-C文库构建与测序
细菌细胞用3%甲醛溶液在4 °C处理1 h以固定染色质三维结构。用0.375 mol/L甘氨酸淬灭交联反应15 min,防止甲醛进一步损伤DNA。细胞经溶菌酶在37 °C孵育10 min裂解以释放染色质。样品用0.5% SDS处理以灭活潜在的内源性核酸酶,防止DNA降解。染色质DNA用100 U MboI限制酶(NEB提供)消化。消化后的DNA片段用生物素-14-dCTP(Invitrogen提供)标记。标记的DNA片段用50 U T4 DNA连接酶(NEB提供)连接形成Hi-C连接产物。去交联和DNA提取按照QIAamp DNA Mini Kit(Qiagen)制造商说明进行。纯化的DNA剪切为300–500 bp片段,进行末端修复、加A尾和接头连接。标记的DNA片段用链霉亲和素包被的磁珠富集,随后PCR扩增以增加测序模板量。Hi-C文库定量后在Illumina Nova-seq平台进行高通量测序。每个Hi-C实验构建1-kb连接产物的全基因组文库,反映全基因组DNA-DNA相互作用频率。归一化相互作用频率可视化为三维基因组二维矩阵图。每个样品使用两个生物学重复。
【数据】交联:3%甲醛,4 °C,1 h;淬灭:0.375 mol/L甘氨酸,15 min;裂解:溶菌酶,37 °C,10 min;去核酸酶:0.5% SDS;消化:100 U MboI;标记:生物素-14-dCTP;连接:50 U T4 DNA连接酶;DNA片段:300–500 bp;测序平台:Illumina Nova-seq;分辨率:1 kb;生物学重复:2个
2.5 接触矩阵构建
Hi-C测序原始数据用Trimmomatic软件进行质控,去除低质量reads获得clean reads。该步骤基于Bolger等人的研究[43]。使用ICE软件包将每个样品两个生物学重复的clean reads迭代比对到参考基因组,排除未比对、单侧、悬挂末端和自环序列作为噪声。仅保留有效配对,遵循Imakaev等人的方法[44]。使用GenomeDISCO软件分析平行样品Hi-C数据的相关性,判断两个生物学重复的数据能否合并以获得更大测序深度。该分析基于Ursu等人的研究[45]。为更有效呈现基因组Hi-C数据,将HSPM1菌株基因组划分为等大bin(1 kb或5 kb),将过滤后的有效配对分配到相应bin。利用这些bin生成接触图,可视化基因组位点间相互作用频率。
【数据】质控软件:Trimmomatic;归一化软件:ICE;重复性分析:GenomeDISCO;bin大小:1 kb或5 kb;参考方法:Bolger等[43]、Imakaev等[44]、Ursu等[45]
2.6 CID与显著相互作用检测与分析
使用Insulation scale方法分析CIDs[46]。绝缘分数是量化染色质区域间相互作用强度的指标,反映每个基因组位点两侧的相互作用情况。CID边界定义为绝缘分数低于相邻bin的位点。该方法以5-kb分辨率计算全基因组每个bin的绝缘分数。使用Fit-Hi-C以1-kb分辨率评估相互作用的显著性。此外,p值≤0.01、q值≤0.01且接触计数>2的相互作用被认为是显著的[47]。
【数据】CID分析方法:Insulation scale;分辨率:5 kb(绝缘分数)、1 kb(Fit-Hi-C);显著性阈值:p ≤ 0.01,q ≤ 0.01,接触计数 > 2
2.7 三维基因组模型构建
使用Pastis以5 kb接触数据构建三维基因组模型。染色体结构使用多维标度(MDS)模型构建。然后使用Centurion标注染色体左右臂[28]。对于复制起点(ori)和终点(ter)位置的鉴定,利用graphDNA方法计算基因组序列的GC含量[48],最高值对应基因组ter位置,最低值对应ori位置。ori位置指定为基因组第一个碱基对,ter位置指定为基因组第1,901,445个碱基对。
【数据】建模软件:Pastis(5 kb数据);模型方法:MDS;染色体臂标注:Centurion;ori/ter鉴定:graphDNA(GC含量法);ori位置:第1 bp;ter位置:第1,901,445 bp
2.8 细菌双杂交实验
该系统利用百日咳博德特菌腺苷酸环化酶CyaA催化结构域的两个互补片段T25和T18,当物理分离时无活性。
【数据】系统:细菌双杂交(CyaA T25/T18);菌株:百日咳博德特菌来源;原文未详述其余参数
研究结果
3.1 YpuF同时影响基因组形态和亚精胺合成
为探究基因组空间组织如何影响基因表达和产物合成,我们筛选了功能上与基因组组织相关的候选基因,鉴定出YpuF是同时影响基因组形态和亚精胺产量的蛋白(图1A)。如图1A所示,敲除YpuF、SMC(smc,orf_01627)或ScpB(scpB,orf_02265)蛋白均大幅提高了解淀粉芽孢杆菌HSPM1(以下简称PM1)的亚精胺产量,其中YpuF敲除效果最为显著。相反,敲除Rok(rok,orf_01440)、ParA(parA,orf_04096)或ParB(parB,orf_04095)蛋白降低了亚精胺产量,而敲除ParC(parC,orf_01847)无显著影响。同时,我们用荧光显微镜观察了指数期ΔypuF菌株的基因组形态。与PM1相比,ΔypuF基因组呈现更不规则、更松弛的构象(图1B)。互补ypuF基因后,基因组恢复至更紧凑的状态(图1B)。为进一步表征这些形态变化,我们采用超分辨率荧光显微镜,发现ΔypuF基因组占据的细胞空间比PM1更大(图1C),表明YpuF在基因组空间组织中发挥调控作用。作为对照,我们检测了Δsmc菌株,发现其基因组比PM1更松弛,而过表达smc基因则导致基因组更紧凑(图1B)。
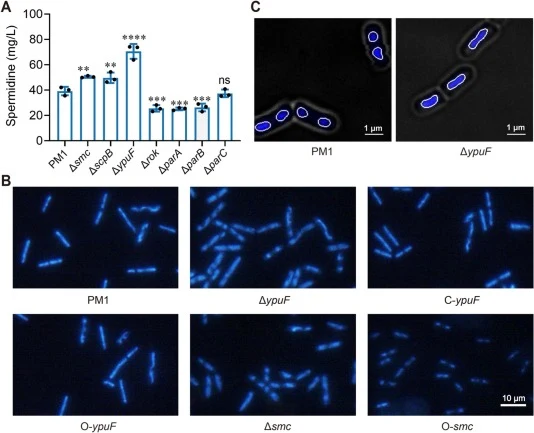
【数据】敲除菌株:ΔypuF、Δsmc、ΔscpB(亚精胺产量大幅提高,ΔypuF最显著);Δrok、ΔparA、ΔparB(产量降低);ΔparC(无显著影响);互补:ypuF基因回补恢复紧凑形态;过表达:smc过表达使基因组更紧凑;显微镜:荧光显微镜+超分辨率荧光显微镜;ΔypuF基因组占据空间大于PM1
3.2 YpuF显著影响基因组空间结构
为进一步探究基因组形态改变是否与亚精胺产量变化相关,首先对指数期PM1和ΔypuF进行Hi-C测序以解析其基因组空间结构。随后比较两株菌的全基因组空间相互作用差异。PM1和ΔypuF基因组的接触矩阵热图显示主对角线具有高相互作用频率,次对角线具有较低相互作用频率(图S1A和1B)。在指数期,每个三维基因组中相邻位点显示最高相互作用概率。此外,两条染色体臂之间观察到弱相互作用。进而,我们对PM1和ΔypuF进行了全基因组消减接触分析。消减接触矩阵热图主要由浅红色、浅蓝色和白色相互作用斑点组成,分布相对均匀(图S2)。这表明PM1和ΔypuF之间的全基因组相互作用频率差异是全局性的,但幅度相对较小。此外,我们还观察到一些远离主对角线的接触热点,表明YpuF敲除轻微增强了三维基因组内的长程相互作用(图S2)。在Hi-C测序分析中,DNA-DNA相互作用频率越高通常表明这些DNA片段在基因组中距离越近[51]。因此,为更直观展示基因组空间结构,本研究采用MDS建模方法构建基因组相对空间结构的三维拓扑图。图2显示PM1菌株的两条染色体臂沿轴对称排列。染色体复制的起点(ori)和终点(ter)区域位于长轴的两个端点,整体形状类似"大脑"(图2A,补充视频S1)。相反,ΔypuF表现出基因组空间结构的显著变化,其两条染色体臂有明显扭曲(图2B和C,补充视频S2)。这表明YpuF强烈影响基因组空间结构。
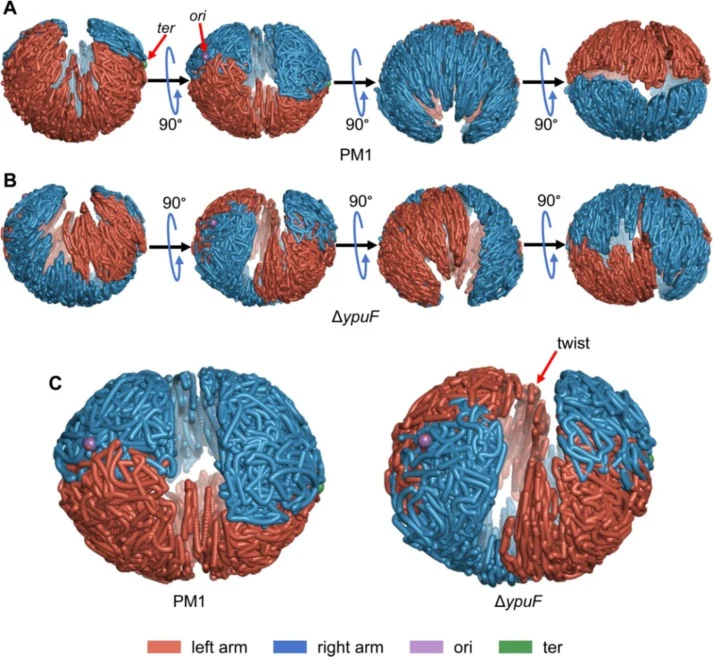
【数据】方法:Hi-C测序(指数期)、MDS建模;PM1基因组形状:类似"大脑",两臂沿轴对称排列;ori/ter:位于长轴两端;ΔypuF:两臂明显扭曲;消减接触矩阵:浅红/浅蓝/白色斑点,全局性差异但幅度较小;长程相互作用:YpuF敲除轻微增强
为进一步探究YpuF如何影响基因组空间组织,我们对PM1和ΔypuF进行了CIDs比较分析(图S3A,表S3)。在PM1基因组中检测到54个CIDs,长度范围10–210 kb(图S3B,表S3);在ΔypuF基因组中检测到50个CIDs,长度范围5–190 kb(图S3B,表S3)。尽管CID数量相似,但YpuF敲除导致全基因组CIDs的显著分裂、融合和重排(图S3C)。具体而言,ΔypuF的50个CIDs中,38个与PM1基本相同,归类为稳定CIDs。其余12个改变的CIDs中,4个源于较大CIDs的分裂,6个源于多个较小CIDs的融合,最后2个由重排产生。有趣的是,本研究在ΔypuF中鉴定到一个5 kb大小的CID,由55 kb CID分裂为50 kb和5 kb CID产生,这也是迄今为止在细菌中鉴定到的最小CID(表S3)。此前的记录保持者是来自羊种布鲁氏菌的约12 kb CID[38]。然而,这个5-kb CID是否代表具有明确生物学功能的调控单元尚不清楚。定向突变、高分辨率成像和功能验证将有助于未来阐明。此外,研究发现基因组中CIDs内部区域的GC含量高于CIDs边界区域(图S3D)。尽管这一相关性在统计上稳健,但GC含量升高是否主动参与CID形成仍有待阐明。未来结合定点突变和高分辨率构象捕获技术的研究将有助于解析核苷酸组成与三维基因组组织之间的因果关系。
【数据】PM1 CIDs:54个,长度10–210 kb;ΔypuF CIDs:50个,长度5–190 kb;稳定CIDs:38个;改变CIDs:12个(分裂4个、融合6个、重排2个);最小CID:5 kb(由55 kb分裂为50 kb + 5 kb);此前最小记录:约12 kb(羊种布鲁氏菌);GC含量:CID内部 > CID边界
上述基于所有有效接触配对的分析表征了PM1和ΔypuF之间基因组空间结构的整体差异。为鉴定具有统计显著性和潜在调控生物学意义的具体相互作用位点,我们进一步对两个1-kb基因组位点进行了全基因组显著性检验。YpuF敲除导致全基因组显著相互作用数量从PM1的258,424对增加至ΔypuF的312,213对(补充数据S2和S3),增加约20.8%。这表明YpuF对基因组空间结构稳定性有重要影响。值得注意的是,这一增加主要由超过200–400 kb和1200 kb的长距离相互作用显著富集驱动,同时0–200 kb内的短距离相互作用略有减少(图S4),表明YpuF对基因组空间结构稳定性有重要影响。
【数据】显著相互作用:PM1 258,424对 → ΔypuF 312,213对;增幅:约20.8%;长距离相互作用富集:>200–400 kb和>1200 kb;短距离相互作用:0–200 kb略有减少
讨论与解读
本研究揭示YpuF通过影响基因组三维结构调控解淀粉芽孢杆菌HSPM1的亚精胺生物合成。ypuF敲除诱导speEB与RNA聚合酶亚基基因之间形成新的空间相互作用,强烈激活speEB转录。利用上述基因组空间工程策略,高产菌株的亚精胺滴度进一步提升至1.94 g/L。本研究首次在细菌中证明空间基因组相互作用调控基因表达机制,为通过三维基因组工程优化微生物细胞工厂提供了新范式。
本研究中,YpuF被鉴定为主要存在于芽孢杆菌属中、能够影响基因组空间结构的功能蛋白(图S5A)。基于当前发现,我们提出以下关于YpuF可能调控机制的推测:首先,荧光显微成像和Hi-C测序分析表明ypuF基因敲除改变了基因组空间组织。其次,ypuF基因敲除后,该基因周围100 kb范围内的基因组空间组织未发生显著变化(图S5B和S5C),且ΔypuF菌株的基因组形态在通过表达YpuF的质粒互补后恢复(图1B),表明ypuF基因对基因组空间组织的影响是……
编译者解读
该研究将三维基因组工程引入代谢工程,思路新颖。核心贡献在于发现了细菌中空间位置效应调控基因表达的首个实验证据——speEB与rpoB/C的空间接触直接驱动转录激活。方法上,Hi-C与CRISPR-dCas9靶向验证的结合形成了完整的因果证据链。局限在于YpuF调控基因组结构的分子机制尚未完全阐明,5-kb CID的生物学功能有待验证。从应用角度看,1.94 g/L的摇瓶滴度距工业化仍有差距,但三维基因组工程作为独立于传统代谢调控的维度,为底盘细胞优化提供了可叠加的新策略。
参考来源
期刊:Chemical Engineering Journal, 2026
DOI: 10.1016/j.cej.2026.182923
DOI: 10.1016/j.cej.2026.182923