来源:Improved xylose utilization and ethanol fermentation performance with ultracentrifugation-assisted adaptive evolution of Saccharomyces cerevisiae(Journal of Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
木质纤维素中的木糖约占全糖的30–40%,但其高效微生物利用一直是生物炼制的瓶颈。酿酒酵母虽为工业乙醇发酵的主力菌株,却难以高效同化木糖。本研究将反复超速离心作为物理扰动引入适应性进化方案,获得进化菌株S. cerevisiae X100。其木糖和葡萄糖利用速率分别提升128.6%和66.4%,批次发酵乙醇滴度提高31.2%,补料分批发酵乙醇达94.96 g/L,木糖消耗率达95.66%,为纤维素乙醇生产提供了新策略。
研究背景
木糖占木质纤维素生物质总糖的30–40%,其高效微生物利用仍是生物炼制工程的关键挑战。酿酒酵母是工业乙醇发酵的主导微生物,但其有限的木糖同化能力制约了利用木质纤维素原料高效生产纤维素乙醇。木糖异构酶途径已在酿酒酵母中成功建立,可实现木糖向木酮糖的一步转化,从而避免XR-XDH两步途径固有的辅因子失衡问题。然而,即便在携带木糖异构酶途径的工程化酿酒酵母中,木糖利用仍显著慢于葡萄糖利用,部分原因在于碳分解代谢阻遏和木糖相关代谢通量效率低下。适应性进化是改善复杂微生物表型的强有力策略——这些表型难以仅通过理性代谢工程优化。在适当的选择压力下,适应性进化可富集有益突变,促进与糖摄取、氧化还原平衡、胁迫抗性和中心碳代谢相关的全局生理适应。
研究方法
2.1 菌株与培养
酿酒酵母Z100是一株携带异源牛瘤胃来源木糖异构酶基因Ru-xylA的耐热工程菌株,本研究以其作为亲本菌株(Li et al., 2016; Zhang et al., 2023)。合成培养基含10 g/L酵母提取物、2.6 g/L K₂HPO₄、2 g/L (NH₄)₂SO₄和2 g/L MgSO₄·7H₂O,按需补充葡萄糖和木糖。麦秸水解液和糖浆培养基额外补充33.3 g/L玉米浆干粉(CSL,干基)、2.6 g/L K₂HPO₄、2 g/L (NH₄)₂SO₄和2 g/L MgSO₄·7H₂O。
【数据】菌株:S. cerevisiae Z100(携带Ru-xylA);酵母提取物:10 g/L;K₂HPO₄:2.6 g/L;(NH₄)₂SO₄:2 g/L;MgSO₄·7H₂O:2 g/L;CSL:33.3 g/L
2.2 试剂
商业纤维素酶Cellic CTec 3购自诺维信(中国)北京。其余分析纯试剂均购自上海泰坦科技股份有限公司。
【数据】纤维素酶:Cellic CTec 3(Novozymes);其余试剂:分析纯(Titan Scientific);原文未详述具体试剂清单
2.3 麦秸原料与生物炼制操作
干酸预处理麦秸由凯赛生物(太原,中国)于2024年秋季提供。以396.2 g原始麦秸计,初始生物质含122.5 g葡聚糖、83.9 g木聚糖、56.4 g木质素和24.1 g灰分。干酸预处理麦秸在5 L生物反应器中进行酶解,固含量20%(w/w),50 °C,200 rpm,12 h,纤维素酶用量为4 mg总蛋白/g干麦秸(Liu et al., 2026)。所得水解液以396.2 g初始麦秸计含121.6 g葡萄糖和62.7 g木糖,以及8.0 g乙酸、3.4 g糠醛和1.2 g 5-羟甲基糠醛(HMF)。随后在3 L生物反应器中于37 °C进行液体生物脱毒,接种10%(v/v)脱毒菌株Paecilomyces variotii FN89以去除糠醛、HMF和乙酸(Zhang et al., 2025)。生物脱毒后,乙酸、糠醛和HMF降至各自检测限以下。脱毒麦秸水解液浆液经离心去除木质素残渣,获得澄清水解液用于适应性进化和批次发酵。澄清水解液随后通过真空旋转蒸发浓缩,转速42 rpm。所得麦秸糖浆含428 g/L葡萄糖和193 g/L木糖,用作补料分批发酵的浓缩原料。
【数据】麦秸:396.2 g;葡聚糖:122.5 g;木聚糖:83.9 g;木质素:56.4 g;灰分:24.1 g;固含量:20%(w/w);温度:50 °C;转速:200 rpm;时间:12 h;纤维素酶用量:4 mg蛋白/g干麦秸;水解液:121.6 g葡萄糖、62.7 g木糖、8.0 g乙酸、3.4 g糠醛、1.2 g HMF;脱毒温度:37 °C;接种量:10%(v/v);浓缩转速:42 rpm;糖浆:428 g/L葡萄糖、193 g/L木糖
2.4 适应性进化
超速离心辅助适应性进化通过将亲本酿酒酵母Z100在含30 mL培养基(合成培养基或麦秸水解液培养基)的250 mL摇瓶中培养24–48 h进行,随后使用配备JA-25.50转子的Beckman Coulter J-E离心机在20 °C、53,300 × g离心10 min。所得细胞沉淀重悬后以10%(v/v)比例作为下一轮进化培养的接种物。每24 h通过添加5 M NaOH将pH调至5.5。每次传代接种前收集样品。无超速离心胁迫的适应性进化采用类似方案,仅省略离心步骤。
【数据】培养体积:30 mL;培养时间:24–48 h;离心力:53,300 × g;离心时间:10 min;离心温度:20 °C;转子:JA-25.50;接种比例:10%(v/v);pH:5.5(5 M NaOH调节);调节频率:每24 h
2.5 纤维素乙醇发酵
酿酒酵母Z100和X100首先在50 mL合成培养基中于30 °C、200 rpm培养24 h。随后以10%(v/v)接种量转接至100 mL相同培养基中再培养24 h制备种子液。该培养物随后以10%(v/v)装载比接种至3 L生物反应器,初始OD600为2。批次发酵在3 L生物反应器中进行,工作体积1.1 L,30 °C,300 rpm,不通气(0 vvm)。麦秸澄清水解液含约100 g/L葡萄糖和45 g/L木糖,用作碳源。通过自动添加6 M NaOH维持pH 5.5。补料分批发酵在相同3 L生物反应器和相同培养条件下进行。在36、60和84 h取出50 mL,在108 h取出30 mL并补料。发酵数据以独立生物学重复的均值±标准差(SD)表示。两组独立组间统计比较采用双侧Welch's t检验。一个星号(*)表示P < 0.05,两个星号(**)表示P < 0.01。
【数据】种子培养:50 mL→100 mL,30 °C,200 rpm,24 h+24 h;接种量:10%(v/v);初始OD600:2;生物反应器:3 L;工作体积:1.1 L;温度:30 °C;转速:300 rpm;通气:0 vvm;水解液:~100 g/L葡萄糖、~45 g/L木糖;pH:5.5(6 M NaOH);取料:36/60/84 h各50 mL,108 h取30 mL;统计方法:双侧Welch's t检验
2.6 分析方法
葡萄糖、木糖、乙酸、糠醛、5-羟甲基糠醛(HMF)和乙醇使用高效液相色谱(HPLC)系统(Shimadzu,京都,日本)定量。该系统配备LC-20AD色谱泵、Bio-Rad Aminex HPX-87H柱和RID-10A示差折光检测器。分析使用5 mM H₂SO₄作为流动相,流速0.6 mL/min,温度65 °C,参照先前报道的方案(Han et al., 2026)。胞内NAD(H)水平使用NAD⁺/NADH检测试剂盒(WST-8法,碧云天生物,上海,中国)测定。胞内总蛋白含量使用Bradford蛋白定量试剂盒(天根生化,北京,中国)测定。统计显著性采用双侧Welch's t检验确定。一个星号(*)表示P < 0.05,两个星号(**)表示P < 0.01。
【数据】HPLC:Shimadzu LC-20AD;色谱柱:Bio-Rad Aminex HPX-87H;检测器:RID-10A;流动相:5 mM H₂SO₄;流速:0.6 mL/min;温度:65 °C;NAD(H)试剂盒:WST-8法(碧云天);蛋白定量:Bradford法(天根);统计:双侧Welch's t检验
2.7 基因组重测序
酿酒酵母Z100和X100的全基因组重测序由凌恩生物(上海,中国)使用Illumina平台完成。质量过滤后,X100和Z100分别获得3596万和3658万条clean reads,Q30值分别为98.49%和98.48%。使用BWA v0.7.12-r1039将reads比对至酿酒酵母S288c参考基因组(NCBI: GCA_000146045.2)。X100和Z100的比对率分别为97.06%和97.48%,基因组覆盖度分别为99.22%和99.24%,平均测序深度分别为402.99×和415.05×。比对质量分数低于10的reads被排除。使用GATK HaplotypeCaller v4.1.2.0鉴定SNP和InDel,并按以下标准过滤:SNP质量≥20、测序深度≥4、QD≥2.0、FS≤60.0、MQ≥40.0、MQRankSum≥−12.5、ReadPosRankSum≥−8。过滤后的变异使用ANNOVAR注释。变异按二倍体框架解读。在Z100中检测到的变异作为背景多态性排除,保留X100特异性变异,共获得76个SNP和143个InDel。这些被指定为候选突变,因为它们可能代表新获得的突变或适应性进化过程中富集的预先存在的低频变异。
【数据】平台:Illumina;X100 clean reads:3596万,Q30:98.49%;Z100 clean reads:3658万,Q30:98.48%;参考基因组:S288c(GCA_000146045.2);比对工具:BWA v0.7.12-r1039;X100比对率:97.06%,覆盖度:99.22%,深度:402.99×;Z100比对率:97.48%,覆盖度:99.24%,深度:415.05×;变异鉴定:GATK HaplotypeCaller v4.1.2.0;过滤标准:SNP质量≥20、深度≥4、QD≥2.0、FS≤60.0、MQ≥40.0、MQRankSum≥−12.5、ReadPosRankSum≥−8;注释:ANNOVAR;结果:76个SNP、143个InDel
2.8 转录组分析
转录组分析由凌恩生物(上海,中国)完成。亲本菌株酿酒酵母Z100和进化菌株酿酒酵母X100分别在含60 g/L葡萄糖和30 g/L木糖的合成培养基中于30 °C、200 rpm独立培养,每株三个独立生物学重复。接种后24 h收获细胞。总RNA使用TRIzol®试剂(Invitrogen)提取,经DNase I处理,并通过琼脂糖凝胶电泳、NanoPhotometer分光光度计、Qubit 2.0荧光计和Agilent 2100生物分析仪评估。A260/A280比值1.8–2.2、A260/A230比值≥2.0、RIN≥6.5、28S:18S比值≥1.0且总RNA量>10 μg的样品用于文库构建。使用oligo(dT)磁珠富集Poly(A)+ mRNA,使用TruSeq RNA Sample Prep Kit制备文库,选择约200–300 bp的cDNA片段在Illumina平台上进行双端150 bp测序。使用Trimmomatic v0.39进行质量过滤,X100和Z100每个样品分别获得4215–4846万和3914–3964万条clean reads,Q30值为98.66%–98.85%。使用HISAT2 v2.2.1将clean reads比对至参考基因组,总比对率为95.34%–96.54%,使用featureCounts v2.1.1生成基因水平reads计数。差异表达分析w
【数据】培养基:60 g/L葡萄糖+30 g/L木糖;温度:30 °C;转速:200 rpm;收获时间:24 h;生物学重复:3;RNA提取:TRIzol®;质控标准:A260/A280 1.8–2.2、A260/A230≥2.0、RIN≥6.5、28S:18S≥1.0、总量>10 μg;文库:TruSeq RNA Sample Prep Kit;片段大小:200–300 bp;测序:双端150 bp;过滤:Trimmomatic v0.39;X100 clean reads:4215–4846万;Z100 clean reads:3914–3964万;Q30:98.66%–98.85%;比对:HISAT2 v2.2.1,比对率95.34%–96.54%;计数:featureCounts v2.1.1
研究结果
3.1 超速离心辅助方案对工程酿酒酵母的适应性进化
亲本菌株酿酒酵母Z100首先在麦秸水解液中进行常规适应性进化,每24 h定期传代(图1a)。经过91天连续培养,未观察到木糖利用的实质性改善,表明在所测试条件下常规适应性进化不足以提升酿酒酵母Z100的木糖同化能力。超速离心辅助适应性进化过程采用逐步变化的培养条件,以选择改善的木糖利用、葡萄糖和木糖同步利用以及对麦秸水解液的适应性(图1b,表S1,见补充材料)。在初始阶段,使用含50 g/L木糖和5 g/L葡萄糖的合成培养基,传代间隔为24–48 h。较低的葡萄糖浓度旨在维持木糖为主要碳源,同时提供少量葡萄糖支持细胞生长。在第二阶段,葡萄糖浓度逐渐增加以加强葡萄糖和木糖同步利用的选择压力,同时维持木糖作为碳源。在此阶段,木糖利用速率增加。在第三阶段,引入含80 g/L葡萄糖和50 g/L木糖的麦秸水解液,以促进对复杂木质纤维素水解液环境的适应。然而,未观察到木糖利用速率的进一步增加。因此,在第四阶段,交替使用麦秸水解液和含木糖的合成培养基,以选择水解液适应性和木糖利用。在此交替进化方案下,水解液中的木糖几乎完全消耗。在最终阶段,传代间隔缩短至36 h,随后缩短至24 h,以增加快速生长和糖利用的选择压力。然而,在缩短的培养周期下木糖利用能力未改善。经过156次传代,相当于约518代(10%接种量对应每次传代约3.32代),从最终进化培养物中分离出单菌落,命名为酿酒酵母X100。
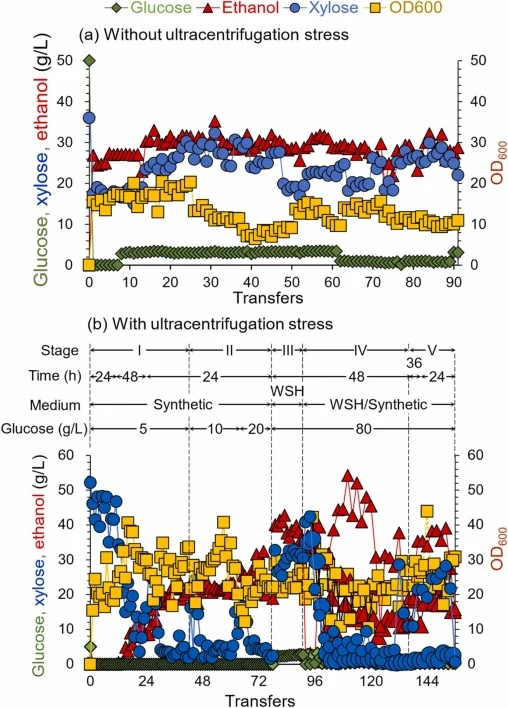
【数据】常规进化时间:91天;初始阶段:50 g/L木糖+5 g/L葡萄糖,传代间隔24–48 h;第三阶段:80 g/L葡萄糖+50 g/L木糖(麦秸水解液);最终阶段传代间隔:36 h→24 h;总传代数:156次;总代数:约518代;每次传代代数:约3.32代(10%接种量)
3.2 适应性进化稳定菌株酿酒酵母X100利用麦秸水解液和糖浆的发酵评价
适应性进化稳定菌株酿酒酵母X100的纤维素乙醇发酵性能使用麦秸水解液(批次发酵)和麦秸糖浆(补料分批发酵)进行评价(图2)。图2a显示使用含约100 g/L葡萄糖和45 g/L木糖的麦秸水解液进行乙醇发酵。与亲本菌株相比,酿酒酵母X100表现出显著增强的葡萄糖和木糖利用。选择前12 h进行比较,因为该阶段代表葡萄糖消耗的活跃期,且受后期底物耗尽和产物积累影响较小。在此期间,平均葡萄糖利用速率从4.67 g/L/h增至7.77 g/L/h,对应66.4%的提升。在48 h发酵期间,平均木糖利用速率从0.35 g/L/h增至0.80 g/L/h,对应128.6%的提升。值得注意的是,在前12 h当发酵液中仍存在葡萄糖时,木糖消耗速率从酿酒酵母Z100的0.29 g/L/h增至酿酒酵母X100的1.30 g/L/h,增幅达348.3%。48 h发酵后,酿酒酵母Z100和酿酒酵母X100的最终乙醇滴度分别达到48.14 g/L和63.15 g/L(分别相当于体积百分比6.10%和8.00%)。相应的平均体积乙醇产率分别为1.00 g/L/h和1.32 g/L/h,表明酿酒酵母X100相比酿酒酵母Z100的乙醇生产性能提升31.2%。乙醇得率从0.42 g乙醇/g混合糖增至0.46 g乙醇/g混合糖,对应9.5%的提升。图2b显示酿酒酵母X100使用麦秸糖浆作为碳水化合物原料的补料分批发酵,在132 h发酵期间的36、60、84和108 h补入高浓度麦秸糖浆。乙醇滴度达到94.96 g/L(相当于体积百分比12.04%),基于表S2的质量平衡,乙醇得率为0.50 g乙醇/g混合糖。值得注意的是,发酵期间可用的75.18 g木糖中仅剩余3.26 g(相当于利用率95.66%),补料阶段之间无明显积累。图2c显示酿酒酵母X100发酵表型的稳定性,通过将−80 °C保藏菌种复活并在无超速离心胁迫的麦秸水解液中进行22次传代后接种至新鲜水解液进行评估。在无超速离心胁迫下传代22次后,酿酒酵母X100维持了与原始分离株相当的稳定发酵表型,证明改良发酵表型的稳定性。总之,这些结果表明进化菌株酿酒酵母X100在麦秸来源糖流中具有改善且稳定的葡萄糖和木糖共发酵能力。与近期木糖发酵研究中报道的代表性酿酒酵母菌株相比,酿酒酵母X100表现出有竞争力的发酵性能(Demeke et al., 2024; Wu et al., 2023; Wang et al., 2022)。在批次发酵中,酿酒酵母X100实现了1.32 g/L/h的体积乙醇产率,在所比较菌株中最高,总木糖利用速率为0.80 g/L/h,前12 h达到1.30 g/L/h。其总木糖利用速率与酿酒酵母MDS130相当,高于酿酒酵母YL13–2和酿酒酵母GRE3OE在各自发酵条件下估计的数值。
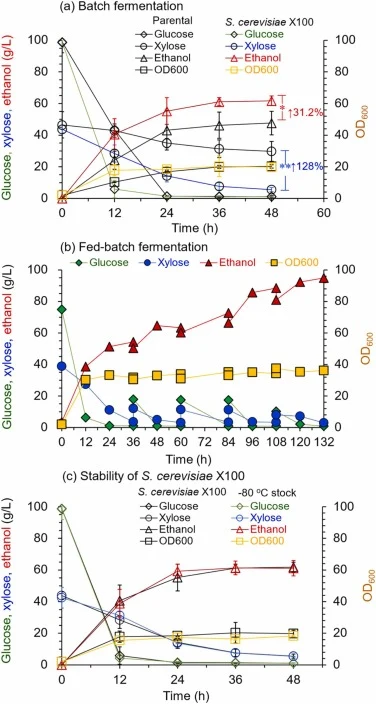
【数据】水解液:~100 g/L葡萄糖、~45 g/L木糖;前12 h葡萄糖利用速率:4.67→7.77 g/L/h(+66.4%);48 h木糖利用速率:0.35→0.80 g/L/h(+128.6%);前12 h木糖消耗速率:0.29→1.30 g/L/h(+348.3%);48 h乙醇滴度:48.14→63.15 g/L(6.10%→8.00% v/v);体积乙醇产率:1.00→1.32 g/L/h(+31.2%);乙醇得率:0.42→0.46 g乙醇/g混合糖(+9.5%);补料分批:132 h,补料36/60/84/108 h;乙醇滴度:94.96 g/L(12.04% v/v);乙醇得率:0.50 g乙醇/g混合糖;木糖:75.18 g总量,剩余3.26 g,利用率95.66%;稳定性:22次传代
3.3 转录组和基因组重测序分析揭示与酿酒酵母X100改良发酵表型相关的生理变化
全基因组重测序鉴定出76个SNP和143个InDel存在于酿酒酵母X100中而亲本菌株酿酒酵母Z100中不存在(表S3、S4和S5,见补充材料)。转录组分析(图3a)揭示83个基因表现出显著差异表达,其中51个上调、32个下调(|log2FoldChange| ≥ 2;FDR ≤ 0.05)。在转录组采样点,酿酒酵母Z100和酿酒酵母X100表现出相似的生物量和葡萄糖消耗,但残余木糖水平差异显著,这可能影响了部分观察到的转录变化。这些结果表明酿酒酵母X100在基因组和转录水平上均与亲本菌株不同(图4)。酿酒酵母X100中的若干转录变化与进化过程中的胁迫适应、细胞恢复和蛋白质稳态相关。未折叠蛋白反应(UPR)相关基因的上调,包括KAR2、PDI1和SSA2,以及SSA2中的单碱基插入突变,提示适应性进化过程中蛋白质稳态的改变(Farley et al., 2023; Kawazoe et al., 2017; Mares and Ramos, 2018)。若干参与蛋白质稳态的基因上调,包括泛素-蛋白酶体系统(UPS)相关基因RAD6、HUL5、RUB1和CUE3,以及SEC61,提示蛋白质质量控制可能参与酿酒酵母X100的适应性响应。
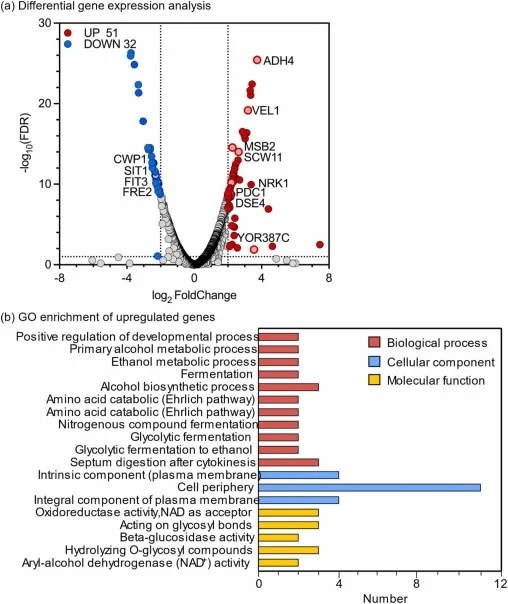
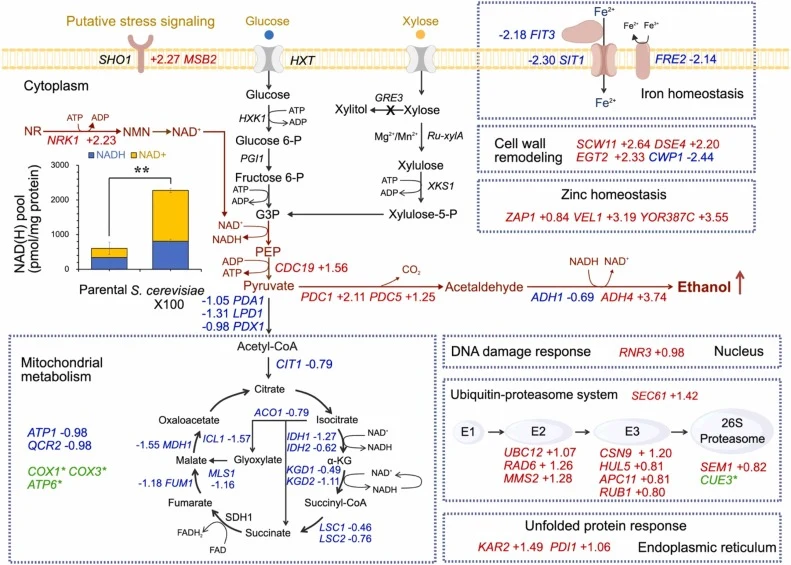
【数据】X100特异性变异:76个SNP、143个InDel;差异表达基因:83个(51上调、32下调),标准:|log2FoldChange|≥2,FDR≤0.05;上调基因:KAR2、PDI1、SSA2(含单碱基插入突变)、RAD6、HUL5、RUB1、CUE3、SEC61
讨论与解读
本研究通过将反复超速离心作为物理扰动引入适应性进化方案,获得了酿酒酵母X100。其木糖和葡萄糖利用速率分别比亲本菌株提高128.6%和66.4%。在干酸预处理和生物脱毒的麦秸来源糖补料分批发酵中,酿酒酵母X100产乙醇94.96 g/L,消耗95.66%的可用木糖,展现了葡萄糖和木糖的高效共利用能力。全基因组重测序和转录组分析鉴定出多个与进化表型相关的生理和基因组变化,涉及胁迫响应、蛋白质稳态、细胞壁重塑、金属离子稳态、乙醇生物合成、NAD(H)代谢和线粒体代谢。本研究描述了一种包含反复物理扰动的实验性适应性进化方法,获得了具有增强葡萄糖和木糖同步利用能力的酿酒酵母X100。
编译者解读:该研究的巧妙之处在于将超速离心这一物理胁迫嵌入经典适应性进化流程,而非依赖理性代谢工程改造。反复高速离心施加的选择压力可能筛选出细胞壁重塑和胁迫响应增强的突变体,从而间接改善糖摄取与代谢通量。156次传代、约518代的进化周期虽长,但获得了表型稳定的菌株。局限在于:超速离心扰动的具体分子机制尚未完全阐明,76个SNP和143个InDel中哪些是驱动突变仍待验证。对合成生物学而言,这种"物理扰动+适应性进化"的范式可拓展至其他胁迫条件,为工业菌株全局表型优化提供了一条非理性但有效的路径。
参考来源
期刊:Journal of Biotechnology, 2026
DOI: 10.1016/j.jbiotec.2026.09.016
DOI: 10.1016/j.jbiotec.2026.09.016