来源:Whole-genome sequencing of Saccharomyces cerevisiae TML01 Reveals genetic features associated with potential acute thermal-stress tolerance(Ecological Genetics and Genomics)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
面包发酵高度依赖酿酒酵母的代谢活性,但工业菌株普遍对高温敏感,热处理、干燥或全球变暖均可能削弱发酵效率。本研究从马来西亚莎阿南一家商业烘焙坊的白面包面团中分离到一株酵母,经ITS测序和系统发育分析鉴定为酿酒酵母,命名为TML01。该菌株在25°C至75°C梯度热激下,75°C仍有少量细胞存活。全基因组测序组装出约11.8 Mb基因组,GC含量38.2%,BUSCO完整度99.6%,与参考菌株S288C高度相似。变异分析检出73,979个高置信SNP,其中高影响和中等影响变异涉及蛋白稳态、MAPK信号、转录调控、线粒体维持、脂质稳态、海藻糖代谢及分子伴侣介导的蛋白折叠等通路,为酵母热胁迫适应机制提供了基因组层面的线索。
研究背景
面包是全球消费最广的主食之一,其生产依赖面包酵母酿酒酵母的代谢活动。面团发酵过程中,酵母通过糖酵解和酒精发酵将可用糖转化为二氧化碳,驱动面团膨胀,并影响面包最终质地与感官品质。除技术功能外,酿酒酵母还被视为功能性生物分子的来源,包括B族维生素、β-葡聚糖和甘露糖蛋白,这些成分与免疫调节和肠道健康益处相关。这些特性使酵母不仅是发酵剂,还可作为潜在的功能性配料或后生元来源,从而扩大了工业界的兴趣。
然而,面包酵母的功能性受其生理稳健性,尤其是耐受工业加工中环境胁迫能力的强烈影响。尽管具有工业重要性,酿酒酵母通常被视为嗜温生物,对高温耐受有限。传统面包酵母菌株在热胁迫下通常表现出活力和代谢性能下降,而热胁迫可能发生在面团加工、干燥、储存或热处理步骤中。虽然热激蛋白诱导、膜脂重塑等热胁迫响应机制已被认识,但菌株间热耐受性的遗传基础仍需深入解析。本研究从商业面包面团中分离出一株耐急性热胁迫的酵母,通过生理筛选、分子鉴定和全基因组测序,探究与热胁迫响应相关的遗传因素。
研究方法
2.1 样品采集与酵母分离
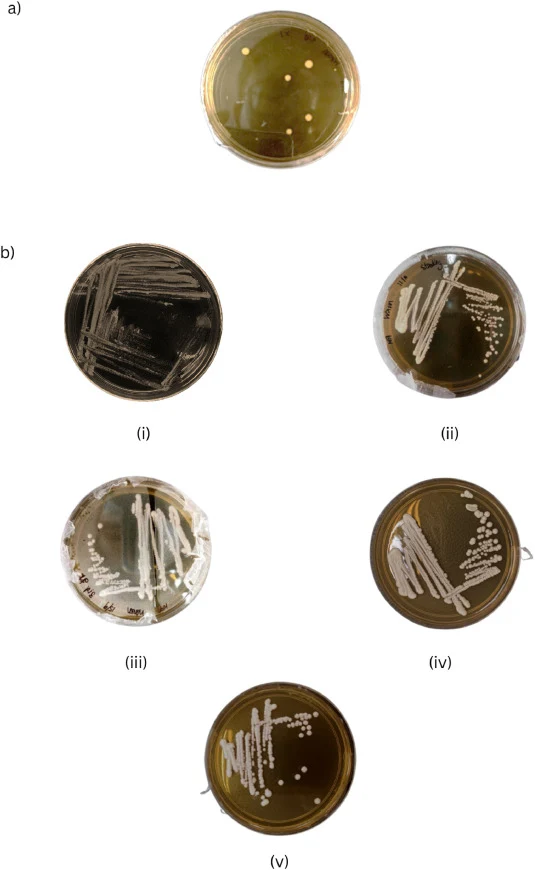
从马来西亚雪兰莪州莎阿南一家商业烘焙坊采集约100 g白面包面团。样品保存于4°C,以在分析前保持微生物组成并最小化代谢活动。无菌操作取1 g面团转移至10 mL无菌蒸馏水中,充分涡旋以确保微生物在悬液中均匀分布。随后,取1 mL悬液用无菌L形玻璃涂布棒涂布于沙氏葡萄糖(SD)琼脂平板(40 g/L葡萄糖、10 g/L蛋白胨、20 g/L琼脂)。平板于37°C培养24至48小时。培养后,观察到多个具有不同形态特征(如大小、形状、边缘和隆起度)的酵母样菌落并进行挑选。每个菌落独立划线接种于新鲜SD琼脂平板,连续传代至少三轮以确保培养纯度。每个阶段均选择形态一致的单菌落进行后续传代培养。
【数据】样品:白面包面团100 g;保存温度:4°C;SD琼脂:葡萄糖40 g/L、蛋白胨10 g/L、琼脂20 g/L;培养温度:37°C;培养时间:24–48 h;传代次数:至少3轮
2.2 DNA提取与质量定量
纯化后的分离株随后在无菌SD肉汤中富集,用于下游分析。酵母分离株的基因组DNA(gDNA)按照制造商推荐方案使用GenElute细菌基因组DNA试剂盒(Sigma-Aldrich Co., St. Louis, MO)提取,并加以修改。提取的gDNA浓度使用Qubit 4荧光计(Thermo Fisher Scientific, Waltham, Massachusetts, United States)和Qubit dsDNA HS Assay Kit(Thermo Fisher Scientific, Waltham, Massachusetts, United States)按先前描述的方法定量。gDNA质量使用1%(w/v)琼脂糖凝胶电泳评估,凝胶用1× TAE缓冲液(40 mM Tris、20 mM乙酸、1 mM EDTA)配制,并用6× Loading dye(Thermo Fisher Scientific, Waltham, Massachusetts, United States)预染色。电泳在100 V下进行40分钟,DNA条带使用Amersham Imager 680可视化。DNA提取成功的标志是形成无拖尾的可见条带,如先前所述。
【数据】DNA提取试剂盒:GenElute细菌基因组DNA试剂盒;定量仪器:Qubit 4荧光计;琼脂糖凝胶浓度:1%(w/v);TAE缓冲液:40 mM Tris、20 mM乙酸、1 mM EDTA;电泳电压:100 V;电泳时间:40 min;染色:6× Loading dye
2.3 分离株的分子鉴定与系统发育分析
进行聚合酶链反应(PCR)扩增酵母基因组的内部转录间隔区(ITS),靶向ITS1和ITS4引物,方案如下:初始变性95°C 120秒,随后35个循环的94°C 60秒、55°C 45秒、68°C 60秒,最终延伸68°C 300秒。随后,PCR产物质量使用2%(w/v)琼脂糖凝胶电泳评估,如先前所述。所用ITS1和ITS4引物序列分别为5′-TCCGTAGGTGAACCTGCGG-3′和5′-TCCTCCGCTTATTGATATGC-3′。PCR产物外送至外部测序机构进行Sanger测序。获得的原始正向和反向序列使用BioEdit(v 7.7.1)修剪并组装成单一共识序列,随后针对NCBI核苷酸(nr/nt)数据库进行BLAST查询以进行物种鉴定。系统发育分析中,共识ITS序列与通过BLAST-N检索的参考序列使用MEGA软件比对。系统发育分析采用最大似然法。分支支持率以500次自举重复评估,低于50%的值视为不可靠。以白色念珠菌(CBD 562)作为外群生根。
【数据】引物:ITS1 5′-TCCGTAGGTGAACCTGCGG-3′、ITS4 5′-TCCTCCGCTTATTGATATGC-3′;初始变性:95°C 120 s;循环数:35;循环条件:94°C 60 s、55°C 45 s、68°C 60 s;最终延伸:68°C 300 s;凝胶浓度:2%(w/v);自举重复:500次;外群:白色念珠菌CBD 562
2.4 热胁迫下基于表型驱动的酵母菌株筛选
取1 mL处于指数生长期的酵母培养物(来自纯化分离株,先前在SD肉汤中富集),在热胁迫下进行表型驱动筛选,设双重复。培养物置于热混合仪(Eppendorf, Hamburg, Germany)中,先在25°C无搅拌平衡15分钟。根据筛选结果,选择一株表现出增强热胁迫耐受性的代表性分离株,命名为TML01。分子鉴定确认TML01属于酿酒酵母,与参考菌株S288C亲缘关系密切。该分离株随后用于热胁迫耐受性的详细评估和下游基因组分析。随后,酵母培养物暴露于30°C至75°C的一系列递增温度,以5°C为增量,每个温度处理在受控条件下持续15分钟。此步骤经修改以施加急性热胁迫并选择性富集表现出增强热耐受性的酵母细胞。热暴露后,使用台盼蓝染色初步评估细胞活力,并用血细胞计数板定量。活力从膜完整性推断:膜完整的细胞排斥染料,而膜受损的细胞吸收染料呈蓝色。需承认膜完整性可能不完全反映功能性活力,特别是在热胁迫条件下,细胞可能保持结构完整但失去繁殖能力。细胞计数使用以下公式进行;[1] 细胞活力率=活细胞数总细胞数×100%。活细胞不着色,死细胞呈深蓝色。暴露于75°C以上温度的酵母培养物中存在活细胞,提示潜在的热胁迫耐受表型。相应的酵母培养物在新鲜无菌SD肉汤中进一步富集。
【数据】培养物体积:1 mL;平衡温度:25°C;平衡时间:15 min;热激温度范围:30–75°C;温度增量:5°C;每温度处理时间:15 min;染色:台盼蓝;计数工具:血细胞计数板;活力公式:活细胞数/总细胞数×100%
2.5 全基因组测序、基因组组装与注释
取100 ng提取的DNA使用Illumina DNA Prep试剂盒进行文库制备,随后在NovaSeqX上测序,产生约1 Gb数据。测序质量统计使用SeqKit v2.3.0生成。读段使用fastp v0.20.1修剪polyG伪影,并使用MaSuRCA v4.1.0进行从头组装。短于500 bp的contig从下游分析中排除。组装完整度使用BUSCO v6.0.0以saccharomycetaceae_odb12数据集在基因组模式下评估。基因组注释使用Liftoff v1.6.3进行,基于序列相似性和共线性从酿酒酵母参考基因组(S. cerevisiae S288C)转移基因模型。注释以GFF3格式导出,编码序列和蛋白序列使用gffread v0.12.7提取。
【数据】DNA用量:100 ng;文库试剂盒:Illumina DNA Prep;测序平台:NovaSeqX;数据量:约1 Gb;质量统计:SeqKit v2.3.0;修剪:fastp v0.20.1;组装:MaSuRCA v4.1.0;contig阈值:>500 bp;完整度评估:BUSCO v6.0.0、saccharomycetaceae_odb12;注释:Liftoff v1.6.3;序列提取:gffread v0.12.7
2.6 分离酿酒酵母的变异分析
变异分析中,过滤后的读段使用BWA-MEM v0.7.17比对到酿酒酵母S288C参考基因组,变异使用bcftools v1.22调用。原始变异随后过滤,保留高置信SNP,条件为最小读段深度(DP)>10且最小Phred质量分数(QUAL)>20。为评估这些变异在热胁迫耐受中的潜在作用,高置信SNP使用SnpEff注释,预测其对基因编码序列的功能效应。本研究中,仅考虑预测对酿酒酵母经典编码序列具有中等或高影响的变异。此外,从酿酒酵母基因组数据库(SGD)检索表型数据,以识别经实验验证在热耐受中具有作用的基因。基因集富集分析使用R包clusterProfiler进行。
【数据】比对工具:BWA-MEM v0.7.17;参考基因组:S288C;变异调用:bcftools v1.22;SNP过滤:DP>10、QUAL>20;注释工具:SnpEff;表型数据库:SGD;富集分析:R包clusterProfiler
2.7 数据可用性
酿酒酵母完整基因组序列已提交至NCBI数据库(http://www.ncbi.nlm.nih.gov/BLAST),作为BioProject、BioSample和GenBank,登录号分别为SUB15935180、SUB15935214和SUB1593531。
【数据】数据库:NCBI;登录号:BioProject SUB15935180、BioSample SUB15935214、GenBank SUB1593531
研究结果
3.1 分子鉴定与系统发育分析
通过系列稀释、涂布平板和连续划线分离酵母,获得五个不同菌落。所有分离株随后进行分子鉴定(图1)。
BLAST-N前位命中确认查询序列与酿酒酵母具有最高一致性,百分比一致性超过97%的可靠物种水平区分阈值(表1)。酿酒酵母物种确认的可靠性由E值为0.0证明,表明非常强、统计显著且稳健的比对。为支持物种鉴定,基于ITS的系统发育分析显示,分离株与酿酒酵母参考序列聚为一支。该分支的形成得到100%自举值的支持(图2)。
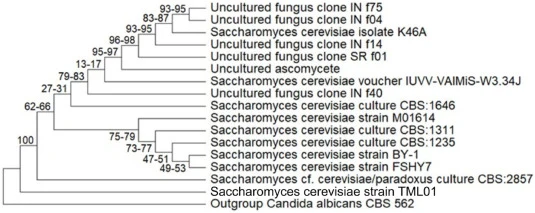
BLASTN比对和系统发育分析共同进一步确认实验分离株为酿酒酵母,确立了其在酵母属内的身份和进化关系。因此,选择酵母分离株TML01用于热胁迫耐受性评估。
【数据】分离菌落数:5;BLAST一致性:>97%;E值:0.0;自举值:100%;鉴定物种:酿酒酵母;选定菌株:TML01
3.2 耐急性热胁迫酵母筛选的适应性分析
酵母细胞活力直接受热激温度影响(图3)。
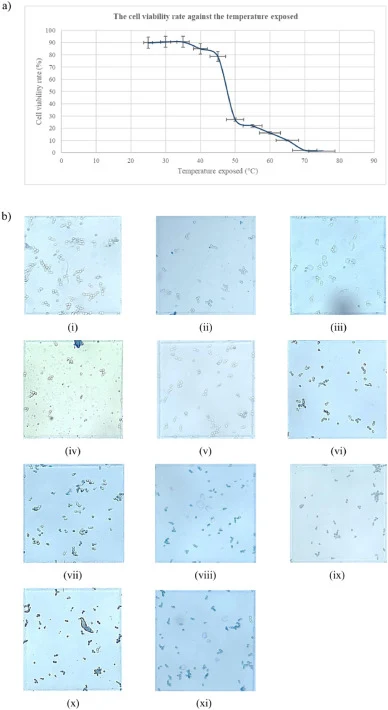
在室温(25°C)下,记录的细胞活力为89.96%,在35°C时升至最大值90.63%。由于热胁迫,40°C时细胞活力略有下降。真菌细胞培养物在40°C和45°C时的细胞活力率分别为84.95%和78.66%。酵母细胞活力率在50°C时急剧下降至27.11%,随后在60°C时大幅降至16.16%,并在70°C和75°C时降至2%以下。
【数据】25°C活力:89.96%;35°C活力:90.63%;40°C活力:84.95%;45°C活力:78.66%;50°C活力:27.11%;60°C活力:16.16%;70°C和75°C活力:<2%
3.3 酿酒酵母TML01菌株的一般基因组信息
分离酿酒酵母TML01菌株基因组的从头组装产生11.8 Mb组装,GC含量38.2%。组装N50为166.2 kb,L50为20,包含122个contig,表明中等碎片化。这种碎片化水平最可能归因于Illumina测序相关的技术限制,特别是短读长限制了重复或结构复杂基因组区域的准确组装,而非反映基因组的任何固有生物学特征。尽管如此,BUSCO分析显示高完整度,从saccharomycetaceae_odb12数据集中检测到3269个(99.6%)BUSCO基因,仅两个(0.1%)重复,表明基因丢失和冗余极少。使用Minimap2对酿酒酵母S288C参考基因组的全基因组比对显示基因组结构大体相似,仅有少数小缺口,可能反映轻微菌株差异或组装碎片化,无大菌株特异性区域证据(图4)。
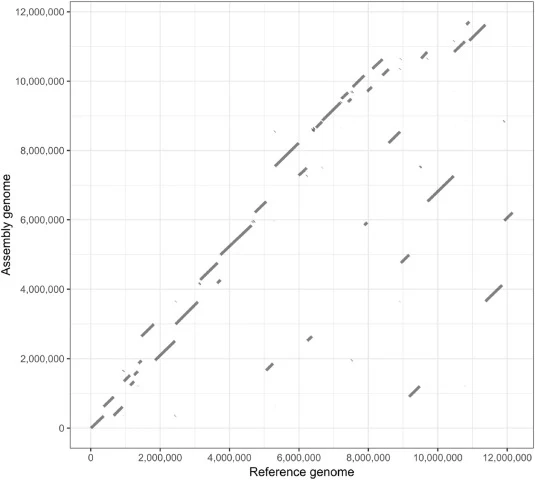
与此一致,平均核苷酸一致性(ANI)分析显示组装基因组与S288C共享99.3%序列一致性,表明高度相似的基因组背景(表2)。组装基因组大小(11.8 Mb)和GC含量(38.2%)也与S288C(12.1 Mb,38.5%)相当,进一步支持与参考基因组的结构相似性。总之,组装的酿酒酵母基因组显示高完整度和与参考基因组的强序列相似性,尽管组装连续性中等。
【数据】组装大小:11.8 Mb;GC含量:38.2%;N50:166.2 kb;L50:20;contig数:122;BUSCO完整度:3269/99.6%;BUSCO重复:2/0.1%;ANI与S288C:99.3%;S288C大小:12.1 Mb;S288C GC:38.5%
3.4 酿酒酵母TML01菌株基因组的功能注释
为阐明可能贡献于酿酒酵母TML01热胁迫耐受的分子变异,进行了全基因组注释和变异分析。来自酿酒酵母参考基因组(RefSeq登录号:GCF_000146045.2)的注释基于序列相似性和共线性转移至组装基因组。共6194个基因成功转移,包括5829个mRNA、6104个编码序列(CDS)、6524个外显子和非编码RNA(表3)。经过严格质量过滤,通过bcftools(v1.22)在全基因组检测到总共73,979个高置信SNP。另一方面,检测到5932个插入缺失(indel)变异,而没有多核苷酸多态性(MNP)或其他变异类型通过质量标准。总体而言,这些结果表明组装基因组中的序列变异主要由SNP组成,indel贡献较小,多等位基因位点比例有限。
【数据】参考基因组:GCF_000146045.2;转移基因:6194;mRNA:5829;CDS:6104;外显子:6524;高置信SNP:73,979;indel:5932;MNP:0
3.5 酿酒酵母TML01热胁迫耐受的遗传变异基础
从73,979个SNP中,408个注释为高影响,定义为snpEff预测对蛋白质造成重大功能破坏的变异,如移码、提前终止密码子或剪接位点改变。另一方面,16,640个SNP注释为中等影响,定义为预测改变氨基酸序列但不导致蛋白质功能完全丧失的变异。最后,28,135和457,579个SNP分别注释为低影响和修饰影响,代表预测引起最小蛋白质变化(即同义突变)或发生在非编码区且对蛋白质功能无预期影响的变异。接下来,为仅关注影响先前报道与热胁迫响应相关基因的SNP,从酿酒酵母基因组数据库(SGD)检索经实验验证的表型数据,以确定受高或中等影响SNP影响的基因是否与温度敏感或胁迫相关表型连锁。分别有48和1721个独特基因经实验证明与热胁迫耐受性增加或减少相关(补充表1)。需注意,此处的SNP和受影响基因应视为探索性候选位点,而非本研究中热胁迫耐受的菌株特异性决定因素。预测影响这些基因的高影响SNP发现涉及核心细胞系统,包括蛋白稳态(UBI4、PUP1、RTT101)、MAPK信号通路(SSK22、RGS2、BEM2、KDX1、TDA1)、转录调控(CIN5、PIP2、MIG3、TUP1)、线粒体动力学与维持(MGM1、MDM12、ATP23、RSM27)以及脂质稳态(FAS2、LCB5、RSB1、PDR18、NCR1)。另一方面,预测受中等影响SNP影响的更大一组推定热胁迫相关位点包括酿酒酵母中多个经典热响应基因,如参与海藻糖代谢(TPS1、TPS2、NTH1)和分子伴侣介导的蛋白折叠(SSA4、HSP12、HSP26、HSP78、HSP82)的基因。这些推定变异可能影响热条件下的蛋白折叠能力和胁迫保护,而不破坏必需细胞系统。基因集富集分析进一步揭示,高影响SNP基因中无显著GO术语富集(补充表2),而中等影响SNP基因中有54个术语(生物学过程)显著富集(校正p ≤ 0.05)(补充表3)。值得注意的是,若干富集术语包括错误折叠或不完全合成蛋白质的蛋白质质量控制(GO:0006515)、细胞内信号转导(GO:0035556)、刺激响应调控(GO:0048583)、翻译后蛋白质修饰(GO:0043687)和生长调控(GO:0040008),这些在生物学上与已知真菌通过维持蛋白稳态、转录重编程和调节高温下细胞适应来响应热胁迫一致。总体而言,这些结果表明,尽管组装酿酒酵母分离株基因组具有高结构相似性,变异特别是SNP揭示约12%(48/408)的高影响和10%(1721/16,640)的中等影响SNP与具有实验证据的基因相关。
【数据】高影响SNP:408;中等影响SNP:16,640;低影响SNP:28,135;修饰影响SNP:457,579;热耐受增加相关基因:48;热耐受减少相关基因:1721;高影响SNP热相关比例:12%(48/408);中等影响SNP热相关比例:10%(1721/16,640);显著富集GO术语:54个(校正p ≤ 0.05);高影响SNP GO富集:无显著
讨论与解读
酿酒酵母TML01从当地制造商的商业面包面团中分离,并在急性热胁迫条件下评估。尽管在系统发育分析中归入同一分支,TML01与典型野生酵母菌株分开聚类,反而与其他酵母属序列更紧密地聚在一起。驯化菌株受特定生态和工业环境塑造,常形成适应发酵相关生态位的独特谱系。这一观察凸显了深入研究的必要性,促使对TML01进行全面的基因组水平分析。还需注意,系统发育分析基于ITS区域,该区域因其在公共数据库中的广泛代表性而被广泛接受为真菌鉴定和分类定位的分子标记。然而,ITS在亲缘关系密切的酵母属物种间区分力有限,可能促成观察到的聚类模式。本研究中,基于ITS的系统发育主要用于物种确认而非高分辨率进化推断。因此,结果应谨慎解释,未来纳入全基因组系统发育分析的研究可提供更好的菌株水平关系分辨率。
在耐急性热胁迫酵母细胞的筛选中,酿酒酵母TML01在75°C下仍有少量细胞存活,全基因组测序显示其与参考菌株S288C高度相似(ANI 99.3%),但携带73,979个高置信SNP。高影响变异集中于蛋白稳态、MAPK信号、转录调控、线粒体维持和脂质稳态等核心系统;中等影响变异则富集于海藻糖代谢和分子伴侣介导的蛋白折叠等经典热响应通路。基因集富集分析进一步支持蛋白质质量控制、信号转导和翻译后修饰等过程参与热胁迫适应。作者指出,这些变异应视为探索性候选位点,而非菌株特异性决定因素。
编译者解读:本研究以“表型筛选+全基因组测序+变异注释”的组合策略,从一株商业面团来源的酿酒酵母中挖掘热耐受相关候选位点,方法链条清晰、成本可控。其价值在于将高影响变异(核心系统)与中等影响变异(经典热响应通路)分层解读,避免了单一通路归因。局限也明显:仅凭ITS系统发育和SNP关联,缺乏基因编辑或转录组验证;组装碎片化(122 contigs)可能遗漏结构变异。未来若对候选基因(如TPS1、HSP26)做点突变回补实验,将显著提升结论的说服力。
参考来源
期刊:Ecological Genetics and Genomics, 2026
DOI: 10.1016/j.egg.2026.100492
DOI: 10.1016/j.egg.2026.100492