来源:Insights into Pyrazinone Biosynthesis from Biochemical and Cryo-EM Studies of the Hybrid NRPS-PKS Enzyme CorA(Engineering Microbiology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
杂合非核糖体肽合成酶-聚酮合酶(NRPS-PKS)系统将肽与聚酮的生物合成逻辑融为一体,用以组装结构复杂的天然产物。CorA 是源自黏细菌 Corallococcus exiguus SDU70 的典型 NRPS-PKS 杂合酶,负责合成 5-烷基化吡嗪酮类活性代谢物。本研究结合体外生化、冷冻电镜结构解析、定点突变与分子对接,发现全长 CorA 可利用六种氨基酸组合与两种酰基-CoA 延伸单元生成 12 种不同的吡嗪酮产物,并揭示了 AT 结构域的非典型 SGFH 基序与 KS 结构域的非螺旋环帽如何共同赋予该酶宽泛的底物容忍性。
研究背景
细菌 I 型 NRPS-PKS 杂合酶采用模块化结构域排布,参与多种杂合分子的生物合成,包括埃博霉素、雷帕霉素、博来霉素和耶尔森菌素等。在这类装配线上,蛋白质-蛋白质相互作用对于不同生物合成中间体之间的准确连接至关重要。此类系统存在两种架构:串联型(模块共价连接于一条多肽链)与分离型(模块为独立亚基)。二者的通讯策略也不同——分离型系统依赖对接结构域,而串联型系统则依靠连接肽以及载体蛋白与缩合结构域之间的直接接触。这些相互作用决定了不同结构域对底物的有效识别。对相互作用界面进行工程改造可拓展产物多样性,但也可能使整体生物合成活性丧失。因此,针对底物识别相关的腺苷化(A)结构域、腺苷化-硫酯化(AT)结构域以及下游缩合(C)结构域和 KS 结构域的内部工程改造,是一种更为稳健的策略。在 PKS 模块中,AT 结构域通常表现出严格的底物特异性,这由其保守的底物识别基序决定。同样,经典 KS 结构域仅作用于简单的酰基中间体,而串联型杂合酶中的特化 KS 结构域则可处理肽基底物。
研究方法
2.1 材料
丙二酰基-和甲基丙二酰基-酰基辅酶 A(分别为 M-CoA 和 MM-CoA)底物购自 Sigma-Aldrich(中国上海)。氨基酸原料由生工生物工程(上海)股份有限公司提供。链霉亲和素亲和层析树脂购自天地人和生物技术(上海)有限公司。
【数据】试剂来源:M-CoA、MM-CoA 购自 Sigma-Aldrich;氨基酸原料购自生工生物;链霉亲和素树脂购自天地人和;原文未详述具体用量
2.2 全长 CorA 的克隆、表达与纯化
将 corA 基因片段连接至 pET28a(+) 载体,所得重组质粒转化至大肠杆菌 BAP1 细胞中。收集菌体沉淀,重悬于裂解缓冲液(20 mM Tris,pH 7.5,100 mM NaCl)中。冰浴超声破碎并离心后,将澄清裂解液上样至 Ni-NTA 树脂。使用含咪唑的洗脱缓冲液(20 mM Tris,pH 7.5,100 mM NaCl,300 mM 咪唑)获得粗制 CorA,随后通过 Strep-Tag II 亲和层析进一步纯化。将洗脱样品上样至预平衡的 Strep-Tactin 琼脂糖,用五倍柱体积的 Tris-HCl 洗涤缓冲液(100 mM Tris-HCl,pH 8.0,150 mM NaCl,1 mM EDTA)洗涤,加入 2.5 mM 脱硫生物素后洗脱。最终纯化使用经 20 mM Tris(pH 8.0)和 100 mM NaCl 平衡的 Superdex 200 凝胶过滤柱。合并所有纯化蛋白组分,液氮速冻,并于 −80°C 下在相应的 Tris-NaCl 缓冲液中长期保存。
【数据】载体:pET28a(+);宿主:大肠杆菌 BAP1;裂解缓冲液:20 mM Tris,pH 7.5,100 mM NaCl;洗脱缓冲液:20 mM Tris,pH 7.5,100 mM NaCl,300 mM 咪唑;Strep 洗涤缓冲液:100 mM Tris-HCl,pH 8.0,150 mM NaCl,1 mM EDTA;洗脱条件:2.5 mM 脱硫生物素;凝胶过滤缓冲液:20 mM Tris,pH 8.0,100 mM NaCl;保存温度:−80°C
2.3 胶内酶切与 LC-MS/MS 检测
目标蛋白样品经 SDS-PAGE 分离。切取目的 CorA 条带并切成约 2 × 2 mm 的胶块。用 0.5 mL 缓冲液 I(25 mM 碳酸氢铵加 50% 乙腈)脱色至可见色素褪去,随后真空离心至完全干燥。接着将胶块浸入 0.1 mL 10 mM 二硫苏糖醇溶液中,56°C 孵育 1 h 以还原二硫键。还原步骤后,用乙腈冲洗胶块。为进行半胱氨酸碘乙酰胺化,向混合物中加入 100 μL 55 mM 碘乙酰胺(IAA)溶液,于室温(25-30°C)避光孵育 30 min。随后弃去残余 IAA 溶液。胶块依次用 25 mM NH₄HCO₃ 和乙腈各洗涤两次,再次真空干燥。干燥后的胶块按胰蛋白酶/蛋白质量比 1:20(w/w)于 37°C 酶切 12 h。加入 20 μL 0.1% 三氟乙酸终止酶解。提取的肽段混合物在仪器检测前用 C18 ZipTip 移液枪头(Millipore,美国马萨诸塞州比勒里卡)脱盐。肽段分离在 Ultimate 3000 色谱系统(Dionex,美国加州桑尼维尔)上进行,连接 Q Exactive 质谱仪(Thermo Fisher Scientific,美国马萨诸塞州沃尔瑟姆)。流动相为溶剂 A(含 0.1% 甲酸的超纯水)和溶剂 B(含 0.1% 甲酸的乙腈),流速恒定设为 0.4 μL·mL⁻¹。线性洗脱梯度程序如下:0–6 min 内 5–8% 溶剂 B;6–40 min 内 8–30% 溶剂 B;40–45 min 内 30–60% 溶剂 B;45–48 min 内 60–80% 溶剂 B;最后 48–60 min 维持 80% 溶剂 B。
【数据】胶块尺寸:约 2 × 2 mm;脱色缓冲液:0.5 mL(25 mM 碳酸氢铵 + 50% 乙腈);DTT 浓度:10 mM,0.1 mL;还原温度/时间:56°C,1 h;IAA 浓度:55 mM,100 μL;烷基化条件:室温 25-30°C,避光 30 min;胰蛋白酶/蛋白比:1:20(w/w);酶切条件:37°C,12 h;终止液:20 μL 0.1% 三氟乙酸;流速:0.4 μL·mL⁻¹;梯度:0–6 min 5–8% B,6–40 min 8–30% B,40–45 min 30–60% B,45–48 min 60–80% B,48–60 min 80% B
2.4 数据库搜索
原始串联质谱(MS/MS)数据集使用 Proteome Discoverer(Thermo Fisher Scientific,版本 1.4)在 CorA 的内部序列数据库中进行搜索。搜索参数配置如下:选择胰蛋白酶作为蛋白酶,允许最多两个漏切位点。半胱氨酸碘乙酰胺化定义为固定修饰,甲硫氨酸氧化和丝氨酸泛酰巯基乙胺化(Ppant,+326.10 Da)为可变修饰。全程采用 Orbitrap 采集的默认母离子和碎片离子质量容差。对所有肽段-谱图匹配进行过滤,以确保可靠鉴定 CorA 并准确定位 Ppant 修饰位点。
【数据】软件:Proteome Discoverer v1.4;蛋白酶:胰蛋白酶;漏切位点:最多 2 个;固定修饰:半胱氨酸碘乙酰胺化;可变修饰:甲硫氨酸氧化、丝氨酸 Ppant 化(+326.10 Da);原文未详述质量容差具体数值
2.5 定点突变
突变 PCR 反应使用 50 ng pET28a-CorA-WT 作为模板,正向/反向引物对各 0.2 μM(突变所用引物详情见 Table S1),以及 10 μL 2 × Phanta Max Master Mix(诺唯赞生物科技,中国南京),总反应体积 25 μL。每 25 μL 反应液加入 1 μL DpnI(2 U·μL⁻¹),于 37°C 消化 2 h。然后取 2 μL 消化混合物转化 50 μL DH5α(约 5 × 10⁷ 细胞)。突变质粒经纯化后送生工生物进行测序。
【数据】模板:50 ng pET28a-CorA-WT;引物浓度:各 0.2 μM;PCR 预混液:10 μL 2 × Phanta Max Master Mix;总反应体积:25 μL;DpnI 用量:1 μL(2 U·μL⁻¹)/25 μL;消化条件:37°C,2 h;转化用量:2 μL 转化 50 μL DH5α(约 5 × 10⁷ 细胞)
2.6 动力学分析
酶动力学参数采用基于 DTNB(5,5′-二硫代双-2-硝基苯甲酸)的检测方法测定,监测游离 CoA 的释放。由于独立的 AT 结构域无法单独表达,所有动力学实验均使用重组 KS-AT 双结构域蛋白进行。反应在室温下于 100 μL 体系中进行,含 50 mM 磷酸钠缓冲液(pH 7.5)、1 μM KS-AT 蛋白、6.25–100 μM 酰基-CoA 底物、0.2 mM DTNB、1 mM EDTA、1 mM TCEP 和 10% 甘油。使用微孔板分光光度计连续监测 412 nm 处吸光度的增加。动力学参数使用 GraphPad Prism 8.3.0 通过非线性回归拟合 Michaelis–Menten 模型计算。
【数据】检测方法:DTNB 法监测游离 CoA 释放;反应体积:100 μL;缓冲液:50 mM 磷酸钠,pH 7.5;酶浓度:1 μM KS-AT;底物浓度范围:6.25–100 μM 酰基-CoA;DTNB:0.2 mM;EDTA:1 mM;TCEP:1 mM;甘油:10%;检测波长:412 nm;拟合软件:GraphPad Prism 8.3.0
2.7 体外酶学实验与产物检测
系统性体外活性实验,包括反应配方、阴性对照构建、样品前处理和 HPLC-HRMS 检测梯度,均按照此前文献 [18] 中详细记录的方法进行。
【数据】原文未详述具体参数,参见文献 [18]
2.8 冷冻电镜数据采集与处理
冷冻电镜样品制备时,取 3 μL CorA(2 mg·mL⁻¹)上样至辉光放电处理的 Quantifoil R1.2/1.3 金网(Quantifoil Micro Tools,德国耶拿),然后用 Vitrobot Mark IV(Thermo Fisher Scientific,美国马萨诸塞州沃尔瑟姆)吸干并投入液氮速冻。冷冻电镜数据集在 200 kV Glacios G2 显微镜(Falcon 4i 探测器,EPU)(Thermo Fisher Scientific,美国马萨诸塞州沃尔瑟姆)上以 130,000 × 放大倍率采集(像素尺寸 0.89 Å,总剂量 40 e⁻·Å⁻²)。共记录 5,816 个电影帧,散焦范围 −2.5 至 −1.0 μm,每个电影帧在 3 s 曝光时间内分为 40 帧。所有单颗粒处理步骤均在 CryoSPARC v4.6.2 [19] 中完成。原始显微照片使用 MotionCor2 [20] 进行运动校正,使用 Gctf [21] 进行 CTF 计算;有缺陷的显微照片被手动剔除。自动拾取约 485 万个颗粒,使用 280-Å 掩膜进行迭代 2D 分类。合格的类平均用于生成从头 3D 模型,随后的 3D 分类在相同掩膜下筛选了 58,128 个二聚体颗粒进行非均匀精修。C2 对称性和连续 CTF/散焦优化产生了 3.13-Å 的全局重构。对同一颗粒子集进行对称扩展和 AT 结构域的局域精修,产生了 3.60-Å 的局域密度图。分辨率以金标准 FSC = 0.143 判定,局域分辨率图用 Chimera X [22] 可视化。
【数据】上样量:3 μL CorA(2 mg·mL⁻¹);电镜网:Quantifoil R1.2/1.3 金网;显微镜:200 kV Glacios G2(Falcon 4i 探测器);放大倍率:130,000 ×;像素尺寸:0.89 Å;总剂量:40 e⁻·Å⁻²;电影帧数:5,816;散焦范围:−2.5 至 −1.0 μm;曝光时间:3 s(40 帧);掩膜:280 Å;拾取颗粒数:约 485 万;3D 分类颗粒数:58,128;全局分辨率:3.13 Å;AT 局域分辨率:3.60 Å;FSC 阈值:0.143
2.9 模型构建
以 AlphaFold3 预测的 CorA 结构作为 KS-AT 双结构域从头建模的模板。初始原子模型通过 Phenix map_to_model [23] 对接至冷冻电镜密度图中。无规则多肽片段在 Coot [24] 中手动追踪。完整的 CorA-KS-AT 模型涵盖 KS(氨基酸 1641–2069)和 AT 结构域(氨基酸 2163–2449)、LD 连接区(氨基酸 2070–2162)以及 PAL 片段(氨基酸 2450–2511)。使用 MolProbity [25] 验证立体化学质量,蛋白质界面在 ChimeraX 中分析,结构图使用 ChimeraX 和 PyMOL 渲染。
【数据】建模模板:AlphaFold3 预测结构;KS 结构域:氨基酸 1641–2069;AT 结构域:氨基酸 2163–2449;LD 连接区:氨基酸 2070–2162;PAL 片段:氨基酸 2450–2511;验证工具:MolProbity;分析工具:ChimeraX;渲染工具:ChimeraX、PyMOL
2.10 预备(原文节选至此,后续内容未详述)
【数据】原文未详述
研究结果
3.1 CorA 在体外表现出广泛的底物混杂性
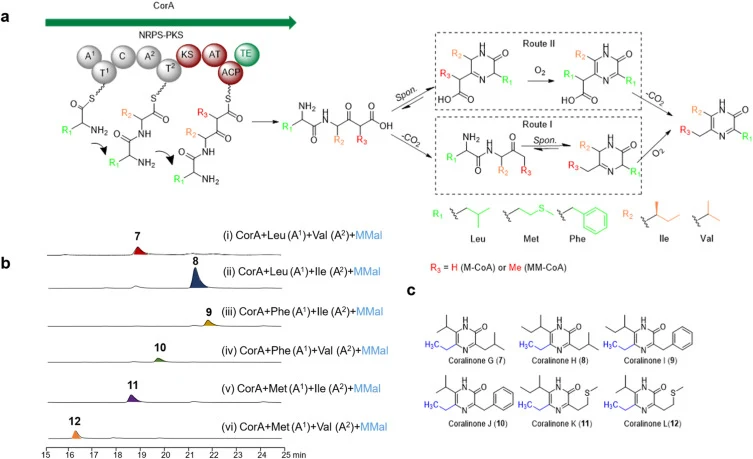
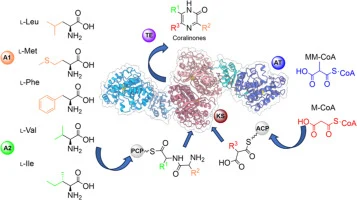
CorA 是来自黏细菌 C. exiguus SDU70 的串联型 NRPS-PKS 杂合巨合成酶,负责 5-烷基化吡嗪酮的产生(图1a)。我们此前已在体外重构了 CorA 的生物合成功能,并考察了其 A 和 AT 结构域的底物混杂性 [18]。在该研究中,为确定两个 A 结构域的底物特异性,我们首先进行了组合筛选,将 CorA 的天然氨基酸与其余 19 种经典氨基酸逐一配对。UPLC 分析显示,CorA 仅能利用六种氨基酸组合:Leu-Val、Leu-Ile、Met-Ile、Met-Val、Phe-Ile 和 Phe-Val,以 M-CoA 作为延伸单元时生成产物 1–6(图 S3a)。接着,我们单独表达了 A1 结构域蛋白,并使用 ATP/PPi 交换实验表征其底物特异性;在本研究中,我们使用 MBP 融合的可溶性构建体将这一方法扩展至 A2(图 S3b)。结果证实 A¹ 识别 Leu、Met 和 Phe,而 A² 对 Ile 和 Val 具有特异性,表明两个结构域蛋白均不接受所测试的其他经典底物。在该工作中,我们还使用单独表达的 PKS 模块来确定 AT 结构域的底物混杂性。以 Leu-Val-SNAC 为底物、MM-CoA 为延伸单元时,CorA-PKS 反应生成了相应的 5-乙基化产物 7,证实 AT 结构域除 M-CoA 外也接受 MM-CoA。总体而言,这些发现表明 CorA 的 A 和 AT 结构域各自具有内在的底物混杂性。
为评估单个 A 和 AT 结构域的内在底物灵活性是否在全长巨合成酶中协同运作,我们在本工作中以六种配对氨基酸组合和 MM-CoA 延伸单元在体外重构了全长 CorA。HPLC-DAD 和 LC-MS 分析显示,当提供 MM-CoA 时,全长 CorA 将全部六种氨基酸组合转化为相应的 5-乙基化吡嗪酮产物(7–12)(图1b、1c 和 S5)。连同上述 M-CoA 衍生产物 1–6,这些数据表明全长 CorA 以六种二肽单元和两种酰基-CoA 延伸单元进行组合催化,生成 12 种不同的吡嗪酮产物(图 S4a)。这种宽泛的底物容纳能力值得关注,因为在模块化 NRPS-PKS 系统中,底物替换常常会损害生产率。即使上游的装载或缩合步骤能够进行,后续步骤如 KS 结构域催化的链延伸或产物释放也可能表现出低效率 [8]。这一发现表明,观察到的 CorA 混杂性并不局限于 A 或 AT 结构域,而是反映了整个装配机器——特别是下游 KS 结构域——的协同容忍性。
迄今为止,关于 KS 结构域内在底物混杂性的研究仍然有限。虽然已有若干位于 NRPS-PKS 连接处的 KS 结构域被证明可容纳非经典底物:BaeJ-KS2 结构域耐受构型翻转 [33];ClbI-KS 结构域容纳含氨基丙二酰基和氨基酮的构建单元 [34];HMWP1-KS 结构域接受半胱氨酸衍生的中间体 [5];OzmQ-KS1 结构域识别甘氨酸衍生的 β-甲酰胺中间体 [13]。然而,这些例子仅限于对特定底物的适应性;它们均未表现出 CorA-KS 结构域所展现的宽泛底物容忍性。因此,对 CorA 进行结构表征可能为其宽泛的底物混杂性提供新的见解。反过来,这些发现也可能为未来 NRPS-PKS 装配线的工程改造提供指导。
【数据】氨基酸组合数:6 种(Leu-Val、Leu-Ile、Met-Ile、Met-Val、Phe-Ile、Phe-Val);延伸单元:2 种(M-CoA、MM-CoA);产物总数:12 种(M-CoA 衍生 1–6,MM-CoA 衍生 7–12);A¹ 特异性:Leu、Met、Phe;A² 特异性:Ile、Val;PKS 反应底物:Leu-Val-SNAC;PKS 反应产物:5-乙基化产物 7
3.2 CorA-PKS 的 KS-AT 双结构域冷冻电镜结构
为建立 CorA 宽泛底物容忍性的结构基础,我们进一步解析了全长 CorA 的冷冻电镜结构。在大肠杆菌 BAP1 细胞中重组表达后,蛋白通过依次的 His 标签和 Strep 标签亲和纯化达到高均一性(图 S6a)。尺寸排阻色谱(SEC)显示单一对称峰,表观分子量为 424 kDa,显著高于理论单体质量(310 kDa)但低于预期二聚体(620 kDa)。这一差异可能是由于溶液中存在可逆的单体-二聚体平衡(图 S6b)。鉴于多步纯化和样品处理可能导致结构域解离或部分降解,我们进一步通过质谱分析了纯化的 CorA。肽段覆盖率超过蛋白序列的 90%,证实了全长构建体的完整性(图 S7)。该分析还确认了共价连接的 Ppant 臂的存在(图 S8)。尽管做出了这些努力,迭代的 2D 分类和 3D 精修仅对 KS-AT 双结构域产生了清晰的密度图,而 CorA 的其余区域,特别是 NRPS 模块,仍然不可见(图 S9a 和 S9c)。这些结果表明,PKS 核心区域相对于其他高度动态的模块和载体蛋白相关结构域具有更高的局部结构有序性和构象稳定性 [35]。虽然该局部结构不覆盖整个 CorA 蛋白,但它包含了对延伸单元选择和链延伸至关重要的关键催化区域。因此,该 KS-AT 结构可能有助于揭示 CorA 产物多样性的分子基础。
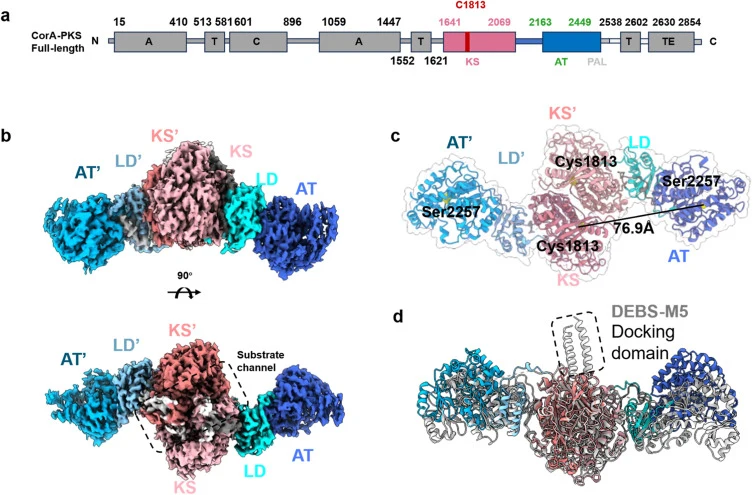
冷冻电镜密度图清晰解析了具有显著二重旋转对称性的二聚体核心架构(图2b)。该对称轴在俯视图中垂直取向,在仰视图中面向观察者。与此一致,2D 类平均显示了明显的二重对称投影(图 S9b),即使在颗粒比对和平均过程中未施加对称性。这表明二聚体构象是 CorA 的主要组装状态。此前关于 PKS-NRPS 杂合酶 HMWP 的研究报道了溶液中单体和二聚体物种的共存 [36],表明 KS 介导的二聚化并不能将全长酶完全锁定在二聚体状态。相比之下,PKS-NRPS 杂合酶 ClbK 在溶液中为二聚体,由 SEC 和 SAXS 确定。然而,其分离的 Clb-PKS 结构域在溶液中为单体但在晶体中为二聚体,二聚体界面主要通过 KS-KS 界面形成,类似于经典二聚体 PKS [37]。综合来看,我们的观察扩展了这一新兴图景,表明 CorA 在溶液中也经历可逆的单体-二聚体平衡。瞬态二聚体组装与单体共存解释了其通过 SEC 测得的升高表观分子量,突出了 NRPS-PKS 和 PKS-NRPS 杂合酶共享的一种保守的、KS 依赖的动态二聚化模式。
最终 3D 重构达到了约 3.13 Å 的总体分辨率(图 S9d),二聚体组装中局部分辨率各不相同(图 S9d)。中央 KS 二聚体区域解析最佳,局部分辨率达到 2.8 Å(图 S9g)。相比之下,内在灵活的 AT 结构域在全长二聚体图中解析较差。使用定制软掩膜进行靶向局域精修改善了 AT 结构域密度,产生了 3.6-Å 分辨率的高质量局域图(图 S9e 和 S9h)。该高质量冷冻电镜密度图使得核心结构域的原子建模得以明确进行。KS、LD 和 AT 结构域的代表性良好解析区域如图 S10 所示。然而,与典型的顺式-AT PKS 如 DEBS 模块 5 不同,CorA-PKS 缺乏构成对接结构域的螺旋元件 [38–40](图2d)。这种独特的 KS-AT 排布也与来自大肠杆菌素生物合成基因簇的 ClbK、ClbC 和 ClbI 中观察到的排布一致。
【数据】SEC 表观分子量:424 kDa;理论单体质量:310 kDa;预期二聚体质量:620 kDa;肽段覆盖率:>90%;全局分辨率:3.13 Å;KS 局域分辨率:2.8 Å;AT 局域分辨率:3.6 Å;二聚体颗粒数:58,128
3.3 CorA-AT 结构域的结构与功能分析
(原文节选至此,后续结果内容未详述)
【数据】原文未详述
3.4 杂合与经典 KS 结构域活性位点帽的结构与功能分析
(原文节选至此,后续结果内容未详述)
【数据】原文未详述
【数据】原文未详述
讨论与解读
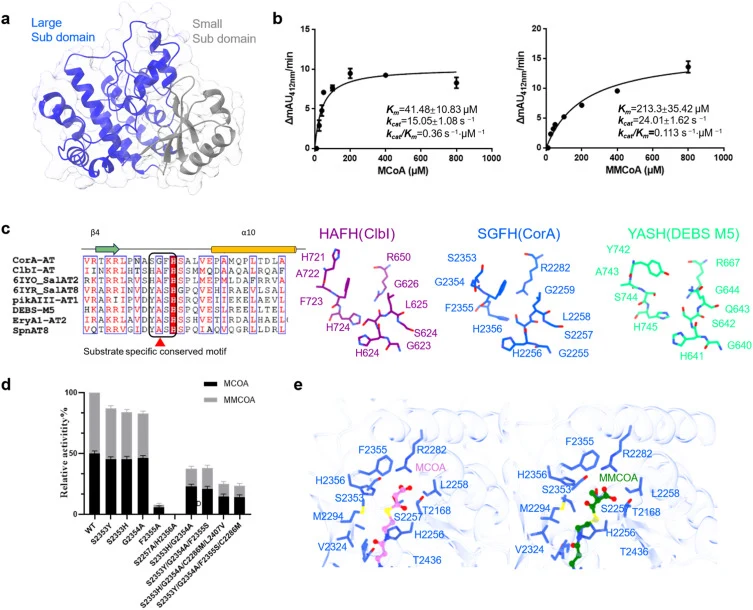
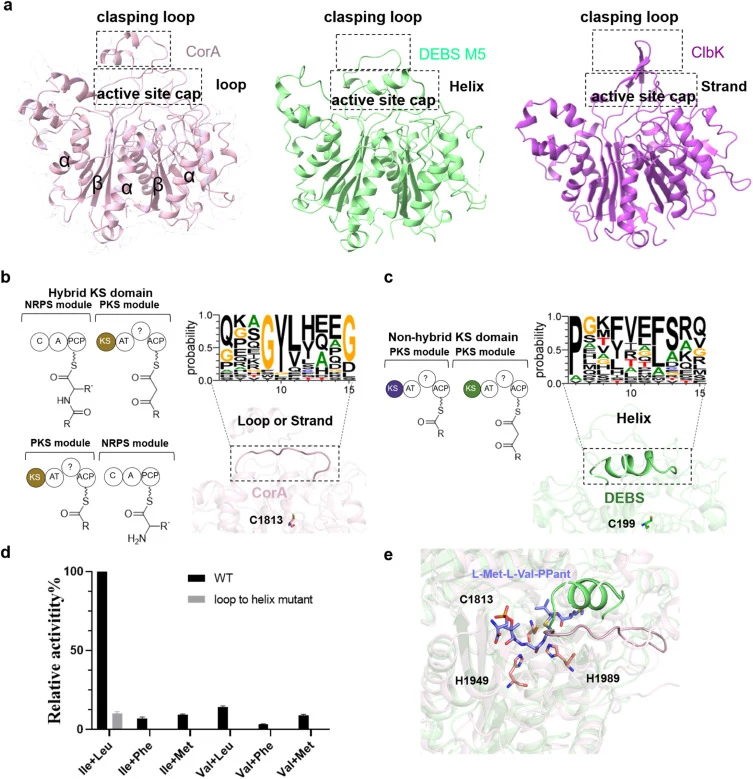
本研究通过体外实验证明杂合 NRPS-PKS 酶 CorA 具有显著的底物混杂性,可生成 12 种不同的 C5-烷基化吡嗪酮。底物容忍性不仅存在于 A 和 AT 结构域,也存在于 KS 结构域——后者对上游中间体表现出异常宽泛的底物容忍性。虽然冷冻电镜分析仅限于 KS-AT 双结构域,但所获得的结构为 AT 和 KS 结构域的底物混杂性提供了有价值的结构见解。进一步的生化、结构、突变和分子动力学分析揭示,CorA-AT 结构域中的非典型 SGFH 基序(Ser2353、Gly2354 和 Phe2355)连同周围残基形成了一个宽松的活性位点口袋,可同时容纳 M-CoA 和 MM-CoA,实现双延伸单元识别。单点突变不足以消除这种宽泛的底物容忍性。值得注意的是,CorA-KS 结构域在其活性位点入口处采用非 α-螺旋环帽,这与经典 PKS 的 KS 结构域中保守的 α-螺旋帽形成对比。结构比较、系统发育分析和结构域交换实验表明,该环帽形成了一个宽敞的底物结合口袋,可容纳多种庞大的氨基酸衍生中间体,确立了非螺旋帽作为杂合 NRPS-PKS 模块中 KS 结构域功能和底物混杂性的关键结构决定因素。
编译者解读
该研究将冷冻电镜应用于 NRPS-PKS 杂合酶的结构解析,方法选择上以 KS-AT 双结构域为突破口,规避了全长蛋白柔性区域带来的解析困难。其核心价值在于识别出非典型 SGFH 基序和非螺旋环帽这两个决定底物宽泛性的结构元件,为理性改造装配线提供了可操作的靶点。局限在于冷冻电镜仅覆盖 KS-AT 区域,NRPS 模块及载体蛋白动态对底物通道的影响仍属空白,且单点突变无法消除混杂性,暗示底物容忍性由多残基协同网络决定,后续工程需考虑组合突变策略。
参考来源
期刊:Engineering Microbiology, 2026
DOI: 10.1016/j.engmic.2026.100308
DOI: 10.1016/j.engmic.2026.100308