来源:Adaptive rewiring of NADPH electron flow reveals escape routes from redox-balance-based growth coupling in Escherichia coli(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
基于氧化还原平衡的生长偶联将氧化还原酶活性与细胞适应度挂钩,可实现高通量酶筛选与菌株进化。然而生长反映的是全细胞适应度,代谢适应可能绕过预设选择压力。本研究追踪了大肠杆菌NADPH氧化还原平衡选择菌株的进化稳定性,发现适应进化首先选择松弛NADH依赖型醌氧化还原酶辅因子特异性的突变,使NADPH来源的还原当量进入呼吸电子流。删除主要NADH-醌氧化还原酶并不能消除逃逸能力——在一个成功进化的谱系中,适应进化揭示了一条潜伏的乳酸介导电子转移路径。
研究背景
氧化还原化学是生命最基本过程的核心。生命依赖高能还原当量完成细胞维持与分裂所需的工作,生物系统必须协调电子在供体与受体之间的流动,以满足生物质形成和能量保存的氧化还原需求。这些过程通过氧化还原酶操控的相互连接的电子载体池来控制。现存生物维持多个化学性质不同的氧化还原载体池,各自适应不同类别的细胞反应。例如NADH和NADPH在许多生物中扮演互补角色:NADH主要支持分解代谢和呼吸电子传递,而NADPH主要支持还原性生物合成和抗氧化防御。许多代谢酶维持严格的辅因子特异性,以避免生物合成与分解代谢过程之间的低效交叉反应,通常通过NADPH上高度极性的2′磷酸基团来区分可溶性氧化还原辅因子。因此这些氧化还原池维持在不同氧化状态。基于氧化还原平衡的生长偶联将氧化还原酶活性与细胞适应度联系起来,可实现高通量酶选择和菌株进化。但由于生长反映的是全细胞适应度,代谢适应可能绕过预期的选择压力。
研究方法
4.1 细胞培养
常规培养时,细菌菌株在2xYT培养基(16 g/L胰蛋白胨、10 g/L酵母提取物、5 g/L氯化钠)中生长,根据菌株所含质粒补充相应抗生素。对于生长偶联实验和适应进化,细菌菌株在含2%葡萄糖或2%甘露醇(w/v)的MOPS基本培养基(Teknova M2106)中生长,并根据菌株所含质粒补充相应抗生素。NNPEQS从2xYT培养基转移至MOPS基本培养基时无法生长,因此进行了向基本培养基的中间适应步骤——将菌株在含20 mM甘油、琥珀酸和乙酸各一的MOPS培养基中生长,然后再转移至含葡萄糖的基本培养基。该适应步骤对所有涉及NNPEQS或进化分离株的实验均执行。
【数据】培养基:2xYT(16 g/L胰蛋白胨、10 g/L酵母提取物、5 g/L NaCl);基本培养基:MOPS(Teknova M2106);碳源:2%葡萄糖或2%甘露醇(w/v);中间适应碳源:20 mM甘油+20 mM琥珀酸+20 mM乙酸;原文未详述培养温度与时间
4.2 DNA克隆与组装
为构建大肠杆菌LdhA和LdhA D174A的pET28a表达载体,分别从野生型大肠杆菌和NNPEQS第6轮分离株中通过菌落PCR扩增野生型和突变型ldhA基因。PCR引物含有与pET28a骨架同源的突出端,所得扩增子通过NEB HiFi DNA Assembly插入载体。组装反应转化至XL1-Blue大肠杆菌中进行质粒扩增和保存。分离单克隆、测序验证后用于蛋白生产。
【数据】载体:pET28a;方法:NEB HiFi DNA Assembly;宿主:XL1-Blue大肠杆菌;基因:ldhA野生型及D174A突变型;原文未详述PCR条件
4.3 转化
质粒DNA通过电穿孔转化至细胞中。转化前,对数期大肠杆菌培养物以4000 × g离心收集,去除上清,细胞沉淀用10%甘油洗涤三次。每个反应将1 μL浓度为100 ng/μL的质粒DNA与25 μL洗涤后的细胞混合,装入0.1 cm电击杯。细胞在1.55 kV下电击。随即加入1 mL 2xYT培养基,转移至1.75 mL Eppendorf管。细胞在37 °C恢复1 h后涂布于含相应抗生素的LB琼脂上进行选择。
【数据】离心力:4000 × g;洗涤液:10%甘油;质粒用量:1 μL(100 ng/μL);细胞用量:25 μL;电击杯:0.1 cm;电压:1.55 kV;恢复培养基:1 mL 2xYT;恢复温度:37°C;恢复时间:1 h;原文未详述离心时间
4.4 基因组工程
基因缺失使用lambda Red重组工程生成。从质粒pKD4 PCR扩增卡那霉素抗性盒,引物携带与染色体目标位点对应的同源区域。等位基因替换由质粒pKD46表达的Red Disruption System介导(Datsenko and Wanner, 2000)。卡那霉素盒随后使用质粒pCP20切除。
【数据】抗性盒来源:质粒pKD4;重组系统:pKD46 Red Disruption System;抗性盒切除质粒:pCP20;原文未详述PCR条件与重组步骤参数
4.5 适应性实验室进化
为适应菌株在葡萄糖上生长,从预培养物中收集培养物,用不含碳源的MOPS培养基洗涤三次以去除残留碳源。洗涤后的培养物接种至5 mL含2%葡萄糖和相应抗生素的MOPS培养基中,起始OD为0.1。在37 °C、250 rpm振荡培养至培养物达到光密度1(PEQS ALE)或0.5(NNPEQS ALE)。达到终密度后,将培养物以1:10比例稀释至新鲜含2%葡萄糖的MOPS培养基中。每轮ALE结束时收集1 mL进化培养物样品并保存,随后用于测定倍增时间以指示进化正在发生。
【数据】洗涤次数:3次;洗涤液:无碳源MOPS;接种体积:5 mL;起始OD:0.1;葡萄糖浓度:2%;温度:37°C;转速:250 rpm;终密度:PEQS ALE OD=1,NNPEQS ALE OD=0.5;稀释比例:1:10;样品体积:1 mL;原文未详述每轮间隔时间
4.6 细菌生长测量
菌株在2xYT培养基中37 °C过夜培养。对于NNPEQS及其衍生物,过夜培养物接种至含20 mM甘油、琥珀酸和乙酸各一的二级预培养培养基中过夜生长。次日,将浓过夜培养物以1:20比例稀释至新鲜培养基中,在37 °C生长约2 h或直至培养物光密度(OD600)达到约0.4。细胞用不含碳源的MOPS培养基洗涤三次,然后稀释至OD 0.1于含指定补充碳源和诱导剂的筛选培养基中。将0.5 mL稀释培养物转移至透明底48孔板(Falcon),在Molecular Devices M2酶标仪中37 °C振荡培养指定时间。板用Breathe-Easy膜密封。在时间过程中每10 min测量600 nm光密度。原始光密度测量值调整为反映标准1 cm光程。倍增时间根据He et al. (2024)所述方法计算。
【数据】过夜培养温度:37°C;二级预培养碳源:20 mM甘油+20 mM琥珀酸+20 mM乙酸;稀释比例:1:20;生长时间:约2 h;目标OD600:约0.4;洗涤次数:3次;洗涤液:无碳源MOPS;接种OD:0.1;培养体积:0.5 mL;板型:48孔透明底板(Falcon);仪器:Molecular Devices M2酶标仪;测量间隔:每10 min;光程校正:1 cm;原文未详述振荡速度
4.7 全基因组测序与分析
在指定的适应性进化轮次,分离单菌落并通过全基因组测序分析。分离株在5 mL 2xYT肉汤中生长以产生足够的生物量用于测序。从细胞沉淀中提取DNA,并由Plasmidsaurus通过Illumina短读长测序技术进行测序。全基因组测序读长使用AfterQC version 0.9.7(Chen et al., 2017)进行过滤和修剪。读长随后使用breseq pipeline version 0.33.1(Deatherage and Barrick, 2014)比对至大肠杆菌BW25113参考基因组(CP009273.1)。共识频率截止值设为0.75,要求匹配分数设为0.95。breseq pipeline根据样品类型以克隆或群体模式运行。突变分析使用ALEdb(Phaneuf et al., 2019)上实现的工作流程进行。
【数据】培养体积:5 mL;培养基:2xYT;测序平台:Illumina短读长(Plasmidsaurus);过滤工具:AfterQC v0.9.7;比对工具:breseq v0.33.1;参考基因组:BW25113(CP009273.1);共识频率截止:0.75;匹配分数:0.95;突变分析:ALEdb;原文未详述培养温度与时间
4.8 蛋白纯化
携带pET28a_LdhA或pET28a_LdhA_D174A的BL21(DE3)大肠杆菌菌株用于接种500 mL TB(补充卡那霉素),初始OD600为0.1。培养物在37 °C、200 rpm振荡培养至OD600约0.4,然后在冰上冷却10 min,再用终浓度0.1 mM IPTG诱导。诱导后,培养物在18 °C过夜孵育以允许LdhA蛋白过表达。表达18 h后,收集细胞并重悬于30 mL裂解缓冲液(含50 mM Tris-HCl pH 7.4、300 mM NaCl、10%(v/v)甘油和5 mM咪唑)中。细胞通过超声裂解,裂解液在4 °C以5000 × g离心15 min澄清。澄清裂解液用于纯化。将裂解缓冲液平衡的Ni-NTA树脂珠(2 mL;Thermo Fisher Scientific)加入裂解液,4 °C旋转孵育1 h。裂解液-树脂混合物转移至重力流柱以分离树脂与裂解缓冲液。通过用6 mL洗涤缓冲液(含50 mM Tris-HCl pH 7.4、300 mM NaCl和40 mM咪唑)洗涤树脂四次,去除未结合和非His标签蛋白。His标签蛋白使用洗脱缓冲液(含50 mM Tris-HCl pH 7.4、300 mM NaCl、10%(v/v)甘油和200 mM咪唑)以2 mL级分从Ni-NTA树脂洗脱。纯化级分透析去除咪唑,并在蛋白储存缓冲液(含50 mM Tris-HCl pH 7.4)中速冻。
【数据】表达菌株:BL21(DE3);培养基:500 mL TB+卡那霉素;初始OD600:0.1;培养温度:37°C;转速:200 rpm;诱导OD600:约0.4;冰上冷却:10 min;IPTG浓度:0.1 mM;诱导温度:18°C;表达时间:18 h;重悬体积:30 mL;裂解缓冲液:50 mM Tris-HCl pH 7.4+300 mM NaCl+10%甘油+5 mM咪唑;离心力:5000 × g;离心时间:15 min;离心温度:4°C;Ni-NTA树脂:2 mL;孵育温度:4°C;孵育时间:1 h;洗涤次数:4次;洗涤体积:6 mL;洗涤缓冲液:50 mM Tris-HCl pH 7.4+300 mM NaCl+40 mM咪唑;洗脱级分:2 mL;洗脱缓冲液:50 mM Tris-HCl pH 7.4+300 mM NaCl+10%甘油+200 mM咪唑;储存缓冲液:50 mM Tris-HCl pH 7.4;原文未详述超声条件
4.9 蛋白质组分析
发酵后,培养物以5000 × g离心3 min收集细胞。从所得细胞沉淀中提取蛋白质,使用标准方案制备胰蛋白酶肽(Chen, 2021; Cowan et al., 2025)。简要而言,沉淀用Qiagen P2裂解缓冲液裂解,蛋白质用NaCl和丙酮沉淀,所得沉淀洗涤后重悬于碳酸氢铵/甲醇中。蛋白质浓度用DC蛋白测定(Bio-Rad)测量。样品用三(2-羧乙基)膦还原,用碘乙酰胺烷基化,并以1:50酶与底物比例用胰蛋白酶过夜消化。肽样品使用Agilent 1290 UHPLC偶联Thermo Scientific Orbitrap Exploris 480质谱仪分析。分离在C18柱上以10 min梯度进行。
【数据】离心力:5000 × g;离心时间:3 min;裂解缓冲液:Qiagen P2;沉淀剂:NaCl+丙酮;蛋白定量:DC蛋白测定(Bio-Rad);还原剂:三(2-羧乙基)膦;烷基化剂:碘乙酰胺;消化酶:胰蛋白酶;酶底比:1:50;消化时间:过夜;液相系统:Agilent 1290 UHPLC;质谱仪:Thermo Scientific Orbitrap Exploris 480;色谱柱:C18;梯度时间:10 min;原文未详述发酵条件
研究结果
2.1 BW25113 Δpgi Δedd Δqor ΔsthA(PEQS)在氧化还原失衡下仍能在葡萄糖上生长
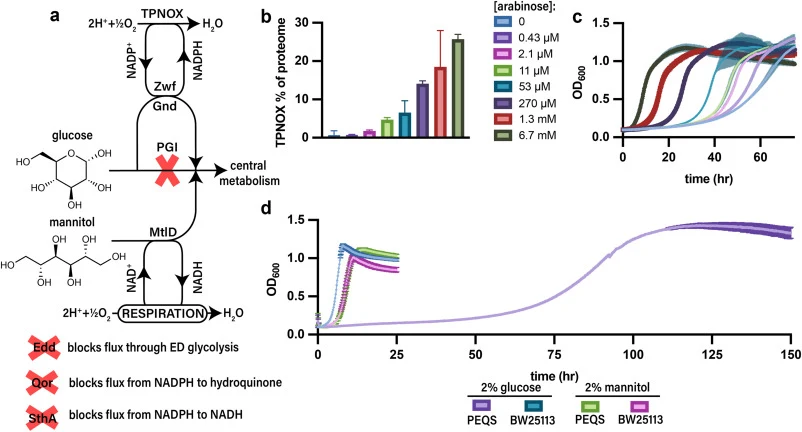
在PEQS中,NADPH依赖型还原酶的功能性表达可通过氧化NADPH并再生NADP+(关键的限制性代谢辅因子)来拯救生长。这实现了一种生长偶联表型,其中PEQS中表达的外源还原酶的周转速率决定生长速率。这一现象通过水形成型NADPH氧化酶TPNOX在PEQS中的异源表达得到证明(Cracan et al., 2017)。生长可通过TPNOX表达进行调节(图1b和c),通过更强诱导TPNOX操纵子可实现更快生长(图1c)。然而,即使没有外源还原酶,PEQS也能生长,尽管比野生型大肠杆菌慢得多(图1d)。这种非零生长速率表明存在完整的NADPH氧化反应,能够实现有限的PEQS生长拯救,或其他维持糖酵解通量并克服所施加氧化还原失衡的手段。独立PEQS培养物之间可重复的生长动力学和近乎立即的生长起始,反对预培养期间快速适应的可能性,更符合内源代谢活性支持生长的解释。从工程角度看,这是不理想的,因为内源生长使能反应表明该菌株有自己的方式在所提供的外源途径之外实现生长。如果菌株能够生长,它可能进化出更快的生长,可能造成目标还原酶的期望定向进化与绕过选择压力的不期望菌株进化同时发生的情况。这一担忧限制了PEQS定向进化工作的范围,使其仅用作体外生成的DNA文库的选择平台。通过在体外生成突变DNA并在生长选择前建立还原酶多样性,而非依赖宿主的错误率向目标还原酶引入有益突变,可在可能的生长拯救基因组突变出现之前,通过保持总细胞分裂次数相对较低来富集适应变体。虽然这是菌株不稳定性问题的可行解决方案,但开发更稳定的选择菌株将是理想的,而鉴定生长使能途径可能是实现该目标的第一步。更广泛地说,使PEQS能够生长的途径或反应仍不清楚,更好地理解PEQS生长的机制可帮助我们更广泛地理解氧化还原代谢。
【数据】菌株:PEQS(BW25113 Δpgi Δedd Δqor ΔsthA);外源酶:TPNOX(水形成型NADPH氧化酶);生长对比:PEQS生长显著慢于WT大肠杆菌;原文未详述具体倍增时间数值
2.2 PEQS适应进化揭示使NADPH与醌池之间通量成为可能的突变
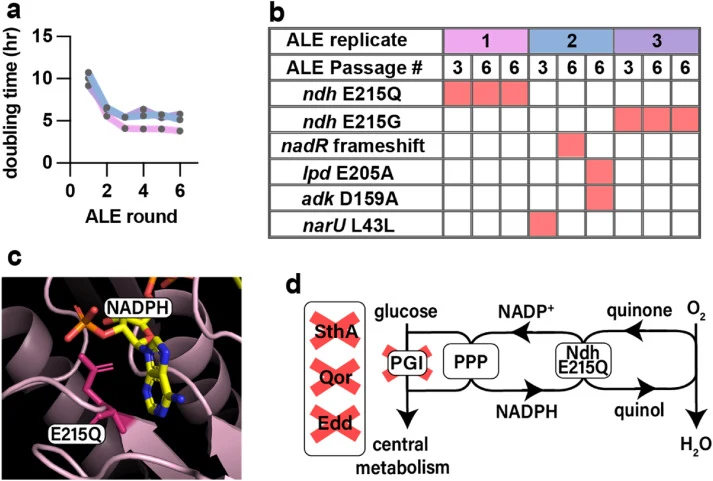
为鉴定能够增强PEQS生长的突变,在葡萄糖基本培养基中进行了适应性实验室进化(ALE)实验。PEQS被连续培养,每当细胞达到稳定期时将生长的细胞群体稀释至新鲜培养基中(即传代)。测定每个ALE传代时群体的倍增时间,使我们能够监测PEQS群体生长速率随时间的变化(图2a)。ALE一式三份进行,到每个重复的第三次传代时,群体倍增时间已减少约50%,表明群体正在进化为增强生长并绕过了所施加的选择压力(图2a)。随着ALE进一步传代,每个重复进化的倍增时间保持大致相同(图2a)。分别从第三轮和第六轮传代中分离单克隆,以鉴定可能解释改善生长的初始突变和在后轮ALE中固定的突变。在两个ALE重复中,所有测序分离株均携带Ndh(一种NADH依赖型醌氧化还原酶)残基215的替换(Salewski et al., 2016)。重复1选择了E215Q,而重复3选择了E215G(图2b)。Ndh E215在两个独立ALE重复中的独立替换提供了强有力的证据,表明该残基的改变处于正选择之下并促成了改善生长的表型。ALE重复2未显示向单一突变收敛的明确模式,使得因果推断更具挑战性,该重复进化中特定突变的重要性也不太明确(图2b)。然而,该重复进化中鉴定的Lpd E205A替换此前在一个NADPH营养缺陷型大肠杆菌菌株的适应进化中被选择,并显示拓宽Lpd辅因子特异性朝向NADP+(Bouzon et al., 2021)。由于Lpd反应是可逆的,这种拓宽的特异性反过来可能允许在PEQS中施加的高度还原的NADPH:NADP+条件下氧化NADPH,尽管该反应的生理贡献仍有待确定(Wilkinson and Williams, 1981)。我们认为在重复进化1和3的每个分离株中观察到的Ndh突变可能松弛Ndh的辅因子特异性,允许电子从NADPH池移动到醌池。结构建模将Ndh残基215置于腺苷核糖2′位置附近。E215替换为谷氨酰胺或甘氨酸可能减少对NADPH 2′-磷酸的静电排斥,允许Ndh接受NADPH从而松弛辅因子特异性(图2c)。此前对同源Ndh蛋白的生化研究表明,该区域酸性残基可控制NADH/NADPH特异性。在A. tumefaciens Ndh中,E203替换为谷氨酰胺使NADPH氧化成为可能(Desplats et al., 2007),而在C. glutamicum Ndh中,D213G、D213N和D213Q替换引入了NADPH依赖型活性(Komati Reddy et al., 2015)。为确定大肠杆菌Ndh E215是否占据与这些实验表征残基相同的辅因子区分位置,我们预测了大肠杆菌Ndh及来自A. tumefaciens和C. glutamicum的同源Ndh蛋白的辅因子结合结构,并比对了这些预测结构(补充图1)。该比对将大肠杆菌Ndh E215置于与A. tumefaciens Ndh E203和C. glutamicum Ndh D213相同的核苷酸结合位置。这些比较生化和结构数据支持以下解释:PEQS进化期间选择的E215替换可能松弛Ndh辅因子特异性朝向NADPH,尽管需要大肠杆菌Ndh变体的直接生化表征来确定其催化效应。允许Ndh接受NADPH将创建一条电子从NADPH流入醌池的路径,在那里电子可参与氧化磷酸化,从而恢复氧化还原平衡同时保存积累的NADPH中的能量(图2d)。这些结果表明PEQS可通过改变内源呼吸氧化还原酶辅因子特异性的单突变逃逸NADPH胁迫。这些结果与先前报道的PEQS通过NuoF E183A替换进化出NuoF(NDH-1复合体亚基,参与相同的NADH-醌反应)NADPH混杂性的结果具有惊人的相似性(Auriol et al., 2011)。与Ndh E215一样,NuoF E183位于结合NADH的腺苷核糖2′-羟基位置附近,即NADPH中被磷酸化的位置(补充图2)。这些结果进一步支持以下论断:PEQS在适应进化至葡萄糖生长后观察到的NDH突变可能松弛辅因子特异性以容纳NADPH,并允许电子从NADPH池移动到醌池。
【数据】菌株:PEQS;ALE重复数:3;倍增时间减少:约50%(第三轮传代时);突变:Ndh E215Q(重复1)、Ndh E215G(重复3)、Lpd E205A(重复2);结构位置:Ndh残基215位于腺苷核糖2′位置附近;同源蛋白对应残基:A. tumefaciens Ndh E203、C. glutamicum Ndh D213;原文未详述具体倍增时间数值
2.3 ndh和nuoF的缺失在NNPEQS中造成NADH氧化还原失衡
由于本工作中适应进化选择了ndh突变,此前工作中选择了nuoF突变,我们通过等位基因交换删除了PEQS中的这两个基因,旨在生成……
【数据】菌株:PEQS;缺失基因:ndh、nuoF;方法:等位基因交换;原文节选在此处截断,后续内容未详述
讨论与解读
本研究表明,需氧NADPH氧化还原平衡型选择可通过内源电子传递途径的快速重连被逃逸。在PEQS中,适应进化反复选择可能松弛呼吸氧化还原酶辅因子特异性的突变,使积累的NADPH进入醌池。尝试通过删除ndh和nuoF消除这些逃逸路径揭示了额外的氧化还原约束,并最终发现了通过乳酸代谢的第二条适应路径。与PEQS(在葡萄糖中容易但缓慢生长)相比,NNPEQS表现出显著更强的初始生长缺陷,只有在引入二级预培养步骤并反复尝试启动ALE后才能建立生长。然而,一旦建立了生长的NNPEQS群体,它也快速适应,到第6轮传代时达到约5 h的倍增时间,与进化的PEQS相似。因此,ndh和nuoF的缺失大幅增加了选择的初始严格性,但并未消除进化逃逸的能力。进化出的逃逸路径不仅仅是再生NADP+的NADPH氧化反应。它们似乎还通过将过量还原当量重新连接至呼吸电子流而非积累发酵产物来保存碳和能量。在第6轮NNPEQS分离株中,醌依赖型D-乳酸脱氢酶丰度增加与……
编译者解读:该研究揭示了氧化还原平衡型生长偶联选择平台的一个核心脆弱性——大肠杆菌拥有多条冗余的呼吸重连路径,单基因删除难以封堵逃逸。从合成生物学应用角度看,PEQS/NNPEQS平台的价值在于将还原酶活性转化为可选择的生长表型,但本工作表明,任何基于全细胞适应度的选择系统都必须考虑内源代谢的可塑性。设计更稳健的选择菌株或许需要同时限制多条呼吸电子入口,同时保留足够的碳能量通量以支持生长——这一平衡极为微妙。该研究为氧化还原工程选择系统的设计提供了重要的负面清单。
参考来源
期刊:Metabolic Engineering, 2027
DOI: 10.1016/j.ymben.2026.102561
DOI: 10.1016/j.ymben.2026.102561