来源:Artificial metabolic pathway for homoserine biosynthesis enables formaldehyde-dependent growth of Corynebacterium glutamicum(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
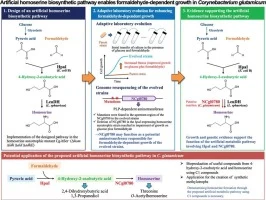
本研究在谷氨酸棒杆菌中设计了一条仅含两步反应的人工高丝氨酸合成途径:由大肠杆菌B株来源的HpaI催化丙酮酸与甲醛的羟醛缩合生成HOB,再由赖氨酸芽孢杆菌来源的LeuDH催化还原胺化将HOB转化为高丝氨酸。将该途径导入高丝氨酸营养缺陷型菌株后,细胞可在仅补充甲醛、不添加高丝氨酸的条件下缓慢生长。通过适应性实验室进化获得生长显著提升的进化菌株,全基因组重测序揭示所有进化菌株中NCgl0780(编码氨基转移酶)上游区域均发生突变,暗示NCgl0780可替代或补偿LeuDH的功能。
研究背景
基于异源代谢途径构建人工代谢通路,已显著拓展了微生物细胞的生产能力。这类策略可实现目标产物产量超越已知代谢途径、利用易操作微生物高产植物中稀有的代谢物、绕过低效的天然途径,甚至生产生物系统中不存在的化学品。然而,人工代谢途径面临的核心难题是代谢通量低——途径中所用酶的底物在大多数情况下并非细胞原生代谢物。应对策略包括定量方法(过表达相应基因)和定性方法(设计催化效率更高的酶突变体)。此外,当人工途径与细胞生长必需代谢物相关联时,适应性实验室进化(ALE)是提高代谢通量的有效策略。在ALE中,细胞适应研究者设定的培养环境,通过积累突变获得生长优势。本研究即围绕这一思路,设计人工高丝氨酸合成途径并利用ALE提升其通量。
研究方法
2.1 菌株、质粒与培养基
本研究所用细菌菌株和质粒列于表S1。全程使用谷氨酸棒杆菌野生型菌株NBRC 12168(即模式菌株ATCC 13032的同义词)。大肠杆菌JM109用于构建质粒。大肠杆菌BL21(DE3)和枯草芽孢杆菌168用于制备基因组DNA,作为聚合酶链反应(PCR)的模板。Lennox(L)培养基含1% hipolypepton(Shiotani M. S. Co., Ltd.,兵库,日本)、0.5%干燥酵母提取物D-3H(Shiotani M. S. Co., Ltd.)、0.5% NaCl和0.1%葡萄糖(pH 7.0),用于培养谷氨酸棒杆菌和大肠杆菌。CGXII培养基(Eggeling and Bott, 2005)含20 g L⁻¹ (NH₄)₂SO₄、5 g L⁻¹尿素、1 g L⁻¹ KH₂PO₄、1 g L⁻¹ K₂HPO₄、0.25 g L⁻¹ MgSO₄·7H₂O、42 g L⁻¹ 3-(N-吗啉代)丙磺酸、10 mg L⁻¹ CaCl₂、10 mg L⁻¹ FeSO₄·7H₂O、10 mg L⁻¹ MnSO₄·H₂O、1 mg L⁻¹ ZnSO₄·7H₂O、0.2 mg L⁻¹ CuSO₄、0.02 mg L⁻¹ NiCl₂·7H₂O、30 mg L⁻¹原儿茶酸、0.2 mg L⁻¹ D-生物素和4 g L⁻¹葡萄糖(pH 7.0),用于谷氨酸棒杆菌的ALE及人工高丝氨酸合成途径的功能评价。此外,向CGXII培养基中添加甲醛;补充0.25、0.3、0.5和1 mM甲醛作为碳源的CGXII培养基分别命名为CGXII-0.25F、CGXII-0.3F、CGXII-0.5F和CGXII-1F。脑心浸液山梨醇培养基(Eggeling and Bott, 2005)含37 g L⁻¹脑心浸液(Becton, Dickinson and Company,富兰克林湖,新泽西州,美国)和91 g L⁻¹山梨醇,用于构建谷氨酸棒杆菌重组菌株。制备琼脂平板时,向培养基中添加1.5%琼脂。必要时,向培养基中添加10或20 mg L⁻¹卡那霉素分别用于培养谷氨酸棒杆菌和大肠杆菌。
【数据】菌株:谷氨酸棒杆菌NBRC 12168、大肠杆菌JM109、大肠杆菌BL21(DE3)、枯草芽孢杆菌168;培养基:Lennox培养基、CGXII培养基、脑心浸液山梨醇培养基;甲醛浓度:0.25、0.3、0.5、1 mM;葡萄糖浓度:4 g L⁻¹(CGXII)、0.1%(L培养基);卡那霉素浓度:10 mg L⁻¹(谷氨酸棒杆菌)、20 mg L⁻¹(大肠杆菌);琼脂浓度:1.5%;pH:7.0
2.2 谷氨酸棒杆菌中的基因缺失
缺失靶基因hom(NCgl1136)、ldh(NCgl2810)、ald(NCgl2698)、adhE(NCgl0313)和nucS(NCgl1168)开放阅读框(ORF)的上游和下游区域,使用KOD one PCR master mix(Toyobo Co., Ltd.,大阪,日本)和表S2所列引物组,从谷氨酸棒杆菌NBRC 12168的基因组DNA中通过PCR扩增。随后通过重叠延伸PCR连接两个片段。每个连接片段克隆至pK18mobsacB(Schäfer et al., 1994)。所得质粒pK18mobsacB-Δhom、pK18mobsacB-Δldh、pK18mobsacB-Δald、pK18mobsacB-ΔadhE和pK18mobsacB-ΔnucS导入谷氨酸棒杆菌NBRC 12168及其突变体,获得卡那霉素抗性转化子;在转化子中,导入的质粒通过同源重组插入靶ORF的上游或下游区域。随后将卡那霉素抗性转化子在L培养基中过夜培养,通过同源重组诱导靶ORF连同pK18mobsacB骨架的去除。将培养物涂布于含20%蔗糖的L琼脂平板上,获得蔗糖抗性菌株。最后,通过从蔗糖抗性菌株的基因组DNA进行PCR,确认靶基因的缺失。本研究中,构建了缺失四个基因(hom、ldh、ald和adhE)和五个基因(hom、ldh、ald、adhE和nucS)的菌株,分别命名为Cg-hSer–和Cg-hSer– ΔnucS。在删除通过ALE获得的菌株中的NCgl0780时,由于相邻NCgl0781的ORF存在重叠,NCgl0780 ORF的3′区域(含终止密码子的24 bp)保留在基因组中。除此之外,质粒pK18mobsacB-ΔNCgl0780的构建和NCgl0780的缺失以与其他基因缺失相同的方式进行。
【数据】缺失基因:hom (NCgl1136)、ldh (NCgl2810)、ald (NCgl2698)、adhE (NCgl0313)、nucS (NCgl1168);蔗糖浓度:20%;卡那霉素浓度:10 mg L⁻¹;NCgl0780缺失保留区域:含终止密码子的24 bp;培养条件:过夜(L培养基)
2.3 人工代谢途径相关基因表达质粒的构建
质粒pECt_tHL携带来自大肠杆菌B株的hpaI基因和来自球形赖氨酸芽孢杆菌的leuDH基因(图S1),构建方法如下。使用引物组5′-TGTATGTCCTCCTGGACTTCGTG-3′和5′-GAAAGGTGTGTTTCACACATG-3′,从pECt_tPL(见补充方法)通过PCR扩增含谷氨酸棒杆菌tuf启动子、leuDH和载体骨架的DNA片段。使用引物组5′-CCAGGAGGACATACAATGGAAAACAGTTTTAAAGCGGCG-3′和5′-TGAAACACACCTTTCTTAATACACGCCGGGCTTAATC-3′,从pGE1142(补充方法)通过PCR扩增hpaI基因。两个PCR产物用DpnI处理以消化PCR混合物中的模板DNA。使用Favorprep凝胶/PCR纯化迷你试剂盒(Favorgen Biotech Co.,屏东,台湾)纯化后,使用无缝连接克隆提取物(SLiCE)方法以大肠杆菌JM109细胞裂解液连接片段,获得pECt_tHL。在验证所得质粒上tuf启动子、hpaI和leuDH的序列后,将质粒导入谷氨酸棒杆菌菌株。
为构建携带tuf启动子下hpaI基因的pECt_tH,使用引物组5′-ACCTTTCTTAATACACGCCG-3′和5′-GGCTGTTTTGGCGGATGAGAG-3′,从pECt_tHL通过PCR扩增含hpaI基因、tuf启动子和pECt骨架的DNA片段,随后用T4多核苷酸激酶(Nippon Gene Co., Ltd.,富山,日本)进行5′端磷酸化,并使用Ligation-convenience试剂盒(Nippon Gene Co., Ltd.)自连接。以相同方式,使用引物组5′-TGTATGTCCTCCTGGACTTCGTG-3′和5′-ATGGAAATCTTCAAGTACATGGAG-3′,从pECt_tHL构建仅携带tuf启动子下leuDH基因的pECt_tL。
为构建携带tuf启动子下hpaI和NCgl0780基因的pECt_Ptuf-hpaI-NCgl0780,将pECt_tHL中的leuDH替换为NCgl0780。使用引物组5′-GTGTGAAACACACCTTTCTTAATACAC-3′和5′-AAGCTTGGCTGTTTTGGCGGATG-3′,从pECt_tHL通过PCR扩增含hpaI基因、tuf启动子和pECt骨架的DNA片段。使用引物组5′-AGAAAGGTGTGTTTCACACATGAATCCTTTGCGCACCAATC-3′和5′-CGCCAAAACAGCCAAGCTTCTATAGTTTCTTAATCCCC-3′,从NBRC 12168基因组DNA通过PCR扩增NCgl0780。使用SLiCE组装两个PCR产物,获得pECt_Ptuf-hpaI-NCgl0780。
【数据】质粒:pECt_tHL、pECt_tH、pECt_tL、pECt_Ptuf-hpaI-NCgl0780;来源基因:hpaI(大肠杆菌B株)、leuDH(球形赖氨酸芽孢杆菌)、NCgl0780(谷氨酸棒杆菌NBRC 12168);启动子:tuf启动子;连接方法:SLiCE;模板消化酶:DpnI;磷酸化酶:T4多核苷酸激酶
2.4 适应性实验室进化
将L液体培养基中生长的Cg-hSer– ΔnucS/pECt_tHL菌株细胞用生理盐水洗涤,接种至CGXII-0.25F培养基中使660 nm光密度(OD660)达到0.1,使用分光光度计UVmini-1240(Shimadzu Corporation,京都,日本)测定。培养物在30 °C孵育24 h。当OD660超过1时,将培养物用含相同浓度甲醛的新鲜CGXII培养基稀释至OD660为0.1,再次在30 °C孵育24 h。当OD660在24 h内未达到1时,仅添加相同浓度的甲醛,继续孵育直至OD660超过1。重复稀释和孵育过程七次后,将甲醛浓度提高至0.3 mM。此外,将稀释后的初始OD660从0.1改为0.01,进行相同的稀释和孵育过程,直至比生长速率增加并稳定维持。本研究中进行了五个独立的培养系列,命名为ALE-1、ALE-2、ALE-3、ALE-4和ALE-5。
【数据】起始菌株:Cg-hSer– ΔnucS/pECt_tHL;起始OD660:0.1;甲醛浓度:0.25 mM → 0.3 mM;温度:30 °C;培养时间:24 h/轮;稀释次数:7次;后续OD660:0.01;ALE系列:ALE-1至ALE-5(5个独立系列);比生长速率稳定值:约0.2 h⁻¹(约800 h后);实验结束时间:1000 h
2.5 进化菌株的分离
从所有ALE系列中分离出在补充甲醛的葡萄糖培养基上表现高生长的菌株。将ALE结束时获得的培养物用生理盐水稀释,涂布于CGXII-0.3F琼脂平板,30 °C孵育。从每个ALE系列中取十个菌落,在CGXII-0.3F液体培养基中30 °C培养2天。向培养物中添加甘油(15%,v/v)制备冷冻保存液后,将各培养物转接至新鲜CGXII-0.3F培养基中使OD660达到0.1,使用摇摆培养箱TVS062CA(Advantec Toyo Kaisha, Ltd.,东京,日本)在30 °C自动监测所选菌株的生长。
【数据】甲醛浓度:0.3 mM;琼脂平板:CGXII-0.3F;温度:30 °C;培养时间:2天;甘油浓度:15%(v/v);初始OD660:0.1;每系列挑取菌落数:10个
研究结果
3.1 hpaI和leuDH基因导入对谷氨酸棒杆菌高丝氨酸营养缺陷型突变体生长的影响
我们设计了一条包含两个代谢反应的人工高丝氨酸合成途径:丙酮酸与甲醛之间的羟醛反应生成HOB,以及将HOB转化为高丝氨酸的还原胺化反应(图1)。
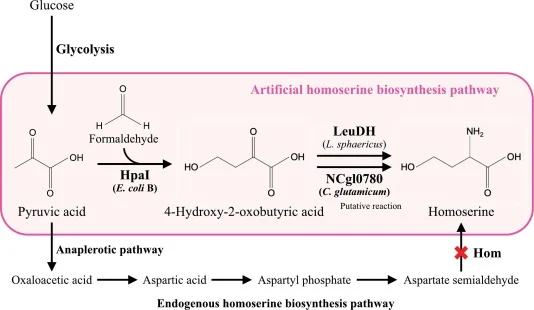
对于第一个反应,我们搜索了能够催化丙酮酸与乙醛之间羟醛反应的酶,因为当时尚无酶被报道可利用甲醛作为羟醛受体。我们选择了大肠杆菌B株来源的HpaI,因为与其他候选酶如BphJI(Wang et al., 2010)和MhpFE(Lee et al., 2006; Pollard et al., 1998)相比,该单亚基酶的异源表达预期更为容易,后两者均需形成双亚基复合物才能表现醛缩酶活性。对于第二个反应,选择了来自球形赖氨酸芽孢杆菌的亮氨酸脱氢酶(LeuDH),因为该酶已被报道可催化2-氧代戊酸的还原胺化,2-氧代戊酸是HOB的甲基类似物,其末端羟基被甲基取代(Kataoka and Tanizawa, 2003; Li et al., 2009; Ohshima et al., 1978)。在该途径中,HpaI催化丙酮酸与甲醛之间的羟醛反应;丙酮酸是葡萄糖经糖酵解生成的关键中间体,而甲醛作为次级碳源供应至培养基。该反应提供C4中间体HOB,可通过LeuDH的还原胺化转化为高丝氨酸。为研究设计的代谢途径是否能在谷氨酸棒杆菌细胞中发挥作用,我们构建了高丝氨酸营养缺陷型菌株Cg-hSer–,转化携带hpaI和leuDH双基因的pECt_tHL(Cg-hSer–/pECt_tHL),并检测其在葡萄糖加甲醛、不添加高丝氨酸条件下的生长。作为对照,我们检测了携带空载体pECt的Cg-hSer–菌株(Cg-hSer–/pECt)的生长。在Cg-hSer–菌株中,hom基因被缺失以赋予高丝氨酸营养缺陷型。此外,ald和adhE被缺失以避免甲醛的消耗(Witthoff et al., 2015),ldh基因也被缺失以抑制丙酮酸向乳酸的转化。在含葡萄糖作为唯一碳源的CGXII培养基中培养时,Cg-hSer–/pECt和Cg-hSer–/pECt_tHL均不生长,而在补充高丝氨酸的CGXII培养基中两株菌均生长(图2)。
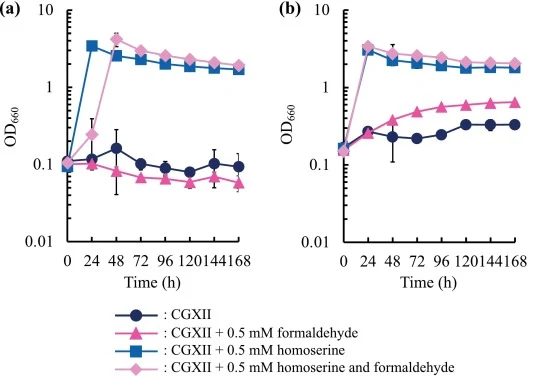
在CGXII-0.5F培养基中培养时,Cg-hSer–/pECt_tHL表现出生长,尽管速率较慢,而Cg-hSer–/pECt不生长。当培养基中同时添加甲醛和高丝氨酸时,两株菌均生长良好。这些结果证实,通过实施人工高丝氨酸合成途径并在甲醛补充条件下,Cg-hSer–的高丝氨酸营养缺陷型被轻微逆转。
【数据】菌株:Cg-hSer–/pECt、Cg-hSer–/pECt_tHL;缺失基因:hom、ald、adhE、ldh;培养基:CGXII、CGXII-0.5F;甲醛浓度:0.5 mM;高丝氨酸:添加/不添加;结果:CGXII中两株菌均不生长;CGXII+高丝氨酸中两株菌均生长;CGXII-0.5F中Cg-hSer–/pECt_tHL生长(慢速),Cg-hSer–/pECt不生长
3.2 携带hpaI和leuDH基因的高丝氨酸营养缺陷型菌株的ALE
高丝氨酸是甲硫氨酸和苏氨酸生物合成的前体氨基酸。在hom基因缺失的高丝氨酸营养缺陷型Cg-hSer–菌株中,由于谷氨酸棒杆菌中未发现其他高丝氨酸生物合成途径,高丝氨酸生物合成的代谢通量被认为与其生长能力直接相关。事实上,Cg-hSer–的生长速率与培养基中高丝氨酸浓度相关(图S2)。鉴于这些结果,我们预期Cg-hSer–/pECt_tHL在补充甲醛的CGXII培养基中的缓慢生长速率可通过ALE得到改善,推测是通过在pECt_tHL的hpaI和leuDH基因中引入突变实现的。本研究中,使用nucS缺失的Cg-hSer–菌株即Cg-hSer– ΔnucS作为ALE的宿主菌株以提高突变率;谷氨酸棒杆菌的nucS基因编码错配特异性内切酶,该基因的缺失已被报道可提高突变率(Ishino et al., 2018)。值得注意的是,Cg-hSer– ΔnucS/pECt_tHL在CGXII培养基或CGXII-0.5F中的生长特征(图S3)与Cg-hSer–/pECt_tHL相似(图2)。最初,使用CGXII-0.25F培养基对Cg-hSer– ΔnucS/pECt_tHL进行ALE,设五个独立培养系列,即ALE-1、ALE-2、ALE-3、ALE-4和ALE-5。培养开始约400 h后,所有ALE系列中细胞群体的比生长速率达到约0.1 h⁻¹(图S4)。随后,ALE培养基中甲醛浓度提高至0.3 mM,培养物稀释率提高至OD660为0.01。结果,所有ALE系列的比生长速率在ALE开始约800 h后达到0.2 h⁻¹,并在实验完成时的1000 h后保持稳定。
【数据】宿主菌株:Cg-hSer– ΔnucS/pECt_tHL;缺失基因:nucS;起始甲醛浓度:0.25 mM;后续甲醛浓度:0.3 mM;起始OD660:0.1 → 0.01;比生长速率:约0.1 h⁻¹(400 h)→ 0.2 h⁻¹(800 h);稳定时间:1000 h;ALE系列:5个独立系列
3.3 从ALE培养物细胞群体中分离进化菌株
从ALE培养物的细胞群体中分离出在CGXII-0.3F培养基中表现高比生长速率的菌株。详细步骤见2.5节。第一轮筛选中,评估了从每个ALE培养系列获得的十株菌在CGXII-0.3F培养基中的生长;结果从每个ALE系列获得两株表现最高比生长速率的菌株,即来自ALE-1的1-36-3和1-36-7、来自ALE-2的2-33-4和2-33-6、来自ALE-3的3-36-2和3-36-4、来自ALE-4的4-37-6和4-36-7、来自ALE-5的5-33-2和5-33-6(图S5)。第二轮筛选中,从第一轮所选两株菌(共十株)的培养物中获得五株菌,测定其在CGXII-0.3F中的生长。随后,获得每个ALE系列中表现最高比生长速率的菌株,即1-36-7-2、2-33-6-1、3-36-4-4、4-37-6-1和5-33-6-3,其比生长速率分别为0.17、0.25、0.22、0.22和0.20 h⁻¹(图S5)。这些生长速率显著高于其亲本Cg-hSer– ΔnucS/pECt_tHL菌株(图3)。
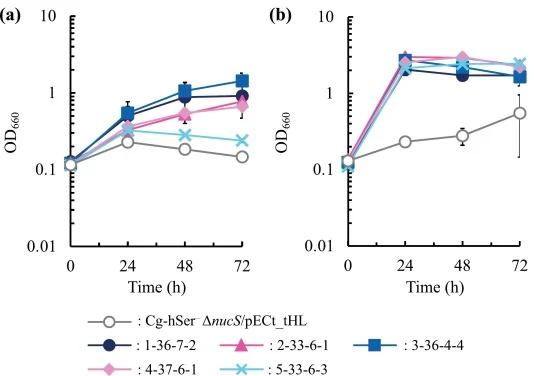
该结果证明了ALE在提高携带设计人工代谢途径的高丝氨酸营养缺陷型菌株于甲醛存在下的生长速率方面的有效性。出乎意料的是,除5-33-6-3外的所有菌株在不补充甲醛的CGXII培养基中均表现出生长,且其生长速率低于甲醛存在时(图3)。
【数据】筛选轮次:2轮;每系列初筛菌株数:10;初筛获得菌株:1-36-3、1-36-7、2-33-4、2-33-6、3-36-2、3-36-4、4-37-6、4-36-7、5-33-2、5-33-6;最终菌株及比生长速率:1-36-7-2(0.17 h⁻¹)、2-33-6-1(0.25 h⁻¹)、3-36-4-4(0.22 h⁻¹)、4-37-6-1(0.22 h⁻¹)、5-33-6-3(0.20 h⁻¹);培养基:CGXII-0.3F;对照亲本:Cg-hSer– ΔnucS/pECt_tHL
3.4 进化菌株中hpaI和leuDH及其突变的功能研究
我们预期ALE菌株生长速率的提高是由pECt_tHL中hpaI和/或leuDH的突变引起的。为证实这一点,我们消除了进化菌株中的质粒,并分析了消除质粒的进化菌株即Cg-hSer– ΔnucS E1、Cg-hSer– ΔnucS E2、Cg-hSer– ΔnucS E3、Cg-hSer– ΔnucS E4和Cg-hSer– ΔnucS E5在CGXII-0.3F培养基中的生长(图S6)。这些菌株在CGXII培养基和CGXII-0.3F培养基中均不生长,表明质粒是进化菌株在甲醛存在下快速生长所必需的。接下来,我们分析了进化菌株中hpaI和leuDH基因的突变(表S4)。在2-33-6-1、3-36-4-4和4-37-6-1的hpaI基因中发现了错义突变,在1-36-7-2的leuDH基因中发现了错义突变。出乎意料的是,在2-33-6-1的leuDH基因中发现了无义突变,并通过SDS-PAGE确认了2-33-6-1中LeuDH蛋白合成的缺失(图S7)。此外,在5-33-6-3的hpaI基因和leuDH基因中均未发现突变。这些结果表明,hpaI和leuDH基因的突变并非进化菌株在甲醛存在下快速生长所必需,且LeuDH并非必需。为进一步分析,将消除质粒的进化菌株连同Cg-hSer– ΔnucS菌株分别转化携带hpaI或leuDH的质粒pECt_tH和pECt_tL。
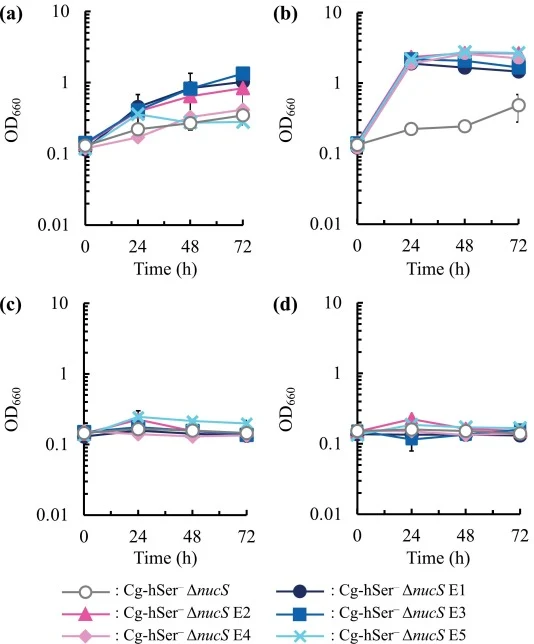
【数据】消除质粒菌株:Cg-hSer– ΔnucS E1至E5;培养基:CGXII、CGXII-0.3F;结果:均不生长;hpaI错义突变菌株:2-33-6-1、3-36-4-4、4-37-6-1;leuDH错义突变菌株:1-36-7-2;leuDH无义突变菌株:2-33-6-1;无突变菌株:5-33-6-3(hpaI和leuDH均无突变);质粒:pECt_tH(hpaI)、pECt_tL(leuDH)
3.5 进化菌株中NCgl0780上游区域突变及功能验证
对进化菌株进行全基因组重测序,在所有进化菌株中鉴定到NCgl0780基因(编码氨基转移酶)上游区域的突变(图5)。
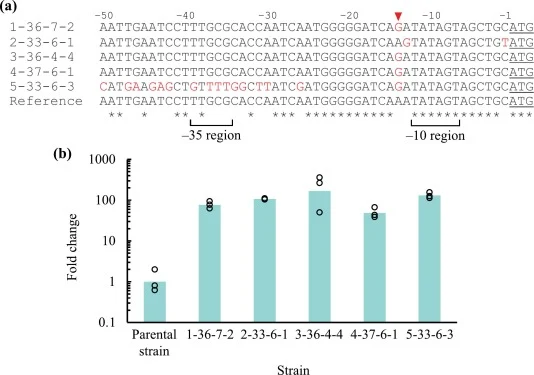
NCgl0780的5′上游区域(起始密码子上游50个核苷酸)的核苷酸序列比对显示,进化菌株中鉴定到的突变以红色标出。此外,与亲本菌株相比,进化菌株中NCgl0780的表达上调。高丝氨酸营养缺陷型谷氨酸棒杆菌菌株同时过表达hpaI和NCgl0780时,在不添加高丝氨酸的葡萄糖加甲醛条件下表现出高生长(图6)。
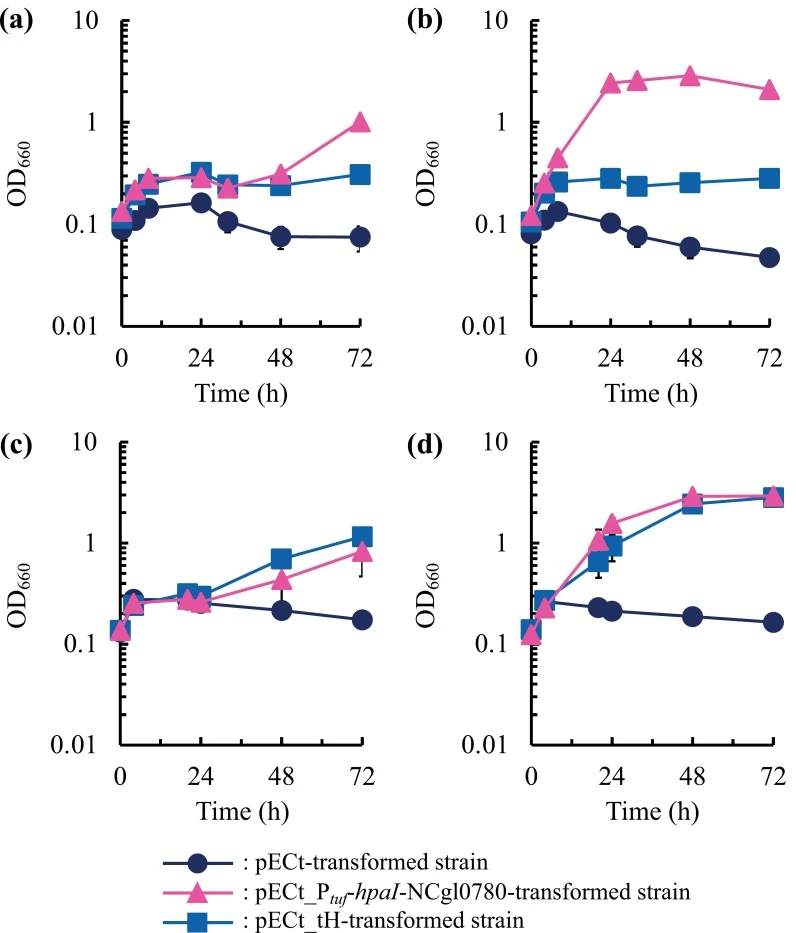
这些结果支持HpaI和NCgl0780在进化菌株观察到的生长表型中发挥作用,并表明NCgl0780可能在进化菌株中替代或补偿LeuDH。
【数据】突变基因:NCgl0780上游区域;突变菌株:所有进化菌株;NCgl0780编码产物:氨基转移酶;表达变化:上调;过表达基因:hpaI + NCgl0780;培养基:葡萄糖 + 甲醛(不添加高丝氨酸);结果:高生长
讨论与解读
本研究设计了一条由HpaI催化的丙酮酸与甲醛羟醛缩合生成HOB、再由LeuDH催化的还原胺化将HOB转化为高丝氨酸的人工高丝氨酸合成途径。将该途径导入谷氨酸棒杆菌高丝氨酸营养缺陷型突变体后,在甲醛存在、不添加高丝氨酸的条件下实现了细胞生长,尽管速率较慢。为提高该人工途径的代谢通量,对该菌株进行了ALE,获得了在CGXII-0.3F培养基中高生长速率的进化突变体。所有进化菌株中均发现NCgl0780(编码PLP依赖性氨基转移酶)的5′上游区域突变。在高丝氨酸营养缺陷型突变体中同时过表达NCgl0780和hpaI,即使在缺乏LeuDH的情况下,也能在甲醛存在、不补充高丝氨酸的条件下加速生长。这些结果表明,HpaI和NCgl0780参与了一条能够补偿Cg-hSer–菌株在葡萄糖加甲醛条件下高丝氨酸营养缺陷型的人工高丝氨酸合成途径,尽管通过该人工生物合成途径的高丝氨酸产量尚未被直接证实。为验证这一点,需要使用13C-甲醛进行示踪实验和/或使用纯化酶进行体外分析。在本研究分离的进化菌株中,2-33-6-1、3-36-4-4和4-37-6-1的生长速率……
编译者解读:该研究展示了一条仅两步的人工途径,用甲醛作为非天然碳源驱动高丝氨酸合成,思路巧妙。ALE结合nucS缺失提高突变率,成功筛选到生长提升的进化菌株,并意外发现NCgl0780可替代LeuDH——这提示细胞内存在未被识别的氨基转移酶活性,为途径设计提供了新候选元件。局限在于高丝氨酸产量尚未直接检测,途径通量仍低,且NCgl0780的具体反应机制未明。未来若能用13C示踪验证碳流,并解析NCgl0780的酶学性质,该途径有望成为甲醛同化与氨基酸合成的通用模块。
参考来源
期刊:Bioresource Technology, 2026
DOI: 10.1016/j.biortech.2026.136046
DOI: 10.1016/j.biortech.2026.136046