来源:A precursor-driven triterpenoid platform enables high-level biosynthesis of structurally distinct triterpenoids in Saccharomyces cerevisiae(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
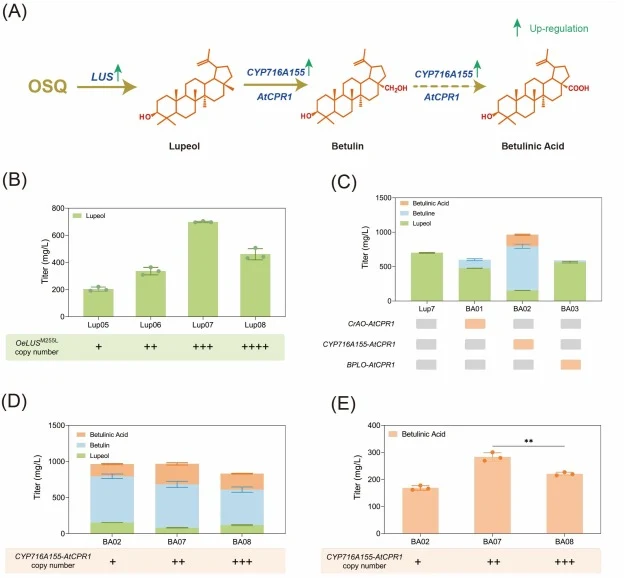
三萜类天然产物结构多样、药用价值高,但微生物合成受限于酵母固有的甾醇稳态调控——关键中间体2,3-氧化鲨烯(OSQ)和2,3;22,23-二环氧鲨烯(DOS)被羊毛甾醇合酶(Erg7p)迅速导入麦角甾醇合成途径。本研究采用泛素N-degron标签在翻译后水平动态削弱Erg7p稳定性,结合储存池重塑与途径优化,构建了OSQ产量1.4 g/L、DOS产量3.1 g/L的双前体底盘,并以此高效合成了五环羽扇豆烷型白桦脂酸(BA)和四环葫芦烷型罗汉果醇,在7-L反应器中羽扇豆烷型三萜总产量达8.5 g/L,在50-L中试规模实现罗汉果醇124.5 mg/L的创纪录产量。
研究背景
三萜类(C30)是植物源天然产物中结构最为多样的一类,具有重要的药学、营养和工业价值。按骨架可分为无环、单环、三环、四环和五环类型,其中四环和五环骨架占天然存在形式的绝大多数。五环羽扇豆烷型的白桦脂酸(BA)和四环葫芦烷型的罗汉果醇是典型代表。BA及其前体羽扇豆醇和白桦脂醇具有抗炎、抗氧化和抗病毒(尤其是抗HIV)活性;罗汉果醇是天然零热量甜味剂罗汉果苷V的直接前体,同时具有抗癌和抗糖尿病作用。然而,从天然植物中提取这些化合物面临天然丰度低、季节性波动和化学提取过程环境负荷大等限制。微生物细胞工厂——尤其是利用公认安全(GRAS)的酿酒酵母——因其天然的甲羟戊酸(MVA)途径、稳健的内源代谢网络和良好的可扩展性,提供了可持续的替代方案。
研究方法
2.1 菌株与试剂
大肠杆菌DH5α(实验室保藏)用于质粒构建和维持。酿酒酵母CEN.PK2-1Ca(MATa; his3 1; leu2-3_112; ura3-52; trp1-289; MAL2-8c; SUC2)作为BA生产的亲本菌株。本研究所用全部菌株列于表S1。体外聚合酶链式反应(PCR)扩增中,采用Prime STAR 2×(TaKaRa,日本)进行高保真PCR,KOD-FX 101(TOYOBO,日本)用于酵母基因组菌落PCR。引物由生工生物工程(上海,中国)合成。使用One step DNA Pure Mini Kit(美基生物,广州,中国)回收DNA片段。质粒构建采用CloneExpress II一步克隆试剂盒(诺唯赞生物,南京,中国)。质粒提取使用FastPure Mini Plasmid Kit(Genesand Biotech,北京,中国)。SQ和OSQ标准品购自麦克林生化科技(上海,中国),DOS购自百灵威科技(北京,中国),羽扇豆醇、白桦脂醇、BA和罗汉果醇标准品购自Must Bio-Technology(成都,中国)。
【数据】菌株:大肠杆菌DH5α、酿酒酵母CEN.PK2-1Ca;试剂:Prime STAR 2×、KOD-FX 101、CloneExpress II、FastPure Mini Plasmid Kit;标准品来源:麦克林、百灵威、Must Bio-Technology;原文未详述其他数值
2.2 质粒与酵母菌株构建
来自油橄榄(Olea europaea)的OeLUS基因(NCBI: BAA86930.1)、来自蓖麻(Ricinus communis)的RcLUS基因(NCBI: NP_001310684.1)、来自落地生根(Kalanchoe daigremontiana)的KdLUS基因(NCBI: E2IUA9.1)、来自秋茄(Bruguiera gymnorrhiza)的BgLUS基因(NCBI: A8CDT3.1)、来自白桦(Betula platyphylla)的BPLO基因(NCBI: AHL46848.1)、来自长春花(Catharanthus roseus)的CrAO基因(NCBI: JN565975)和来自迷迭香(Rosmarinus officinalis)的CYP716A155基因(NCBI: MK592859),以及来自罗汉果(Siraitia grosvenorii)的CBS(NCBI: K7NBZ9.1)、EPH3(NCBI: P0DO70.1)和CYP87D18(NCBI: K7NBR2.1)基因,均基于酿酒酵母密码子偏好性进行密码子优化,由金斯瑞生物科技(南京,中国)合成。本文所用基因序列列于表S2。本研究中,质粒YEp352仅作为体外克隆骨架在大肠杆菌中通过Gibson组装构建启动子-基因-终止子表达盒,而非用于酵母中的游离表达。所有异源生物合成途径基因和调控模块均通过CRISPR/Cas9系统稳定整合到酿酒酵母的指定染色体位点。本研究所用全部质粒列于表S3。gRNA靶点使用在线工具CRISPRdirect(https://crispr.dbcls.jp/)生成。设计靶点后,使用p426质粒构建gRNA表达盒。供体DNA片段通过PCR扩增,两侧带有与靶位点同源的40 bp同源臂。采用醋酸锂转化法,将供体DNA片段与p426-gRNA质粒共转化酿酒酵母。转化子在SD-Ura-Trp(合成葡萄糖缺陷培养基,含20 g/L葡萄糖,不含尿嘧啶和色氨酸)固体平板上筛选,并通过菌落PCR验证。随后,通过SD-Trp-5-FOA平板上的反向筛选消除瞬态p426-gRNA质粒,并通过非选择性培养消除p414-Cas9质粒,获得无标记、无质粒的原养型菌株,确保高有丝分裂稳定性且无游离质粒丢失风险。
【数据】菌株:酿酒酵母CEN.PK2-1Ca;培养基:SD-Ura-Trp(20 g/L葡萄糖)、SD-Trp-5-FOA;同源臂长度:40 bp;基因来源:OeLUS、RcLUS、KdLUS、BgLUS、BPLO、CrAO、CYP716A155、CBS、EPH3、CYP87D18;原文未详述其他数值
2.3 培养基与培养条件
本研究中,大肠杆菌DH5α用于质粒构建,转化子使用含100 μg/mL氨苄青霉素的Luria-Bertani(LB)培养基(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl)筛选。酿酒酵母菌株及系列工程菌株在酵母提取物蛋白胨葡萄糖(YPD)培养基(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖)中培养。SD-Ura-Trp培养基用于筛选转化子。SD-Trp-5-FOA(含1 mg/mL 5-氟乳清酸的SD-Trp培养基)用于筛选不含p426-gRNA质粒且保留p414-Cas9质粒的酵母菌株。固体培养基通过在相应液体培养基中添加2%(w/v)琼脂制备。工程酵母菌株在SD-Ura-Trp平板上生长2–4天以分离单菌落。经菌落PCR确认后,阳性菌落接种至5 mL新鲜YPD培养基中,30°C、220 rpm振荡培养18 h。随后,种子培养物转接至含10 mL YPD培养基的摇瓶(初始OD600 = 0.05),30°C培养96 h。
【数据】培养基:LB(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl)、YPD(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖)、SD-Ura-Trp、SD-Trp-5-FOA(1 mg/mL 5-FOA);氨苄青霉素浓度:100 μg/mL;琼脂浓度:2%(w/v);单菌落分离时间:2–4天;种子培养:5 mL YPD、30°C、220 rpm、18 h;摇瓶培养:10 mL YPD、初始OD600=0.05、30°C、96 h
2.4 代谢物提取与分析
代谢物提取时,将800 μL发酵液与800 μL乙酸乙酯和200 mg玻璃珠在2 mL裂解管中混合。使用Omni Bead Ruptor 12匀浆仪(OMNI international,美国)在6 m/s条件下进行10个循环的细胞破碎。12,000 rpm离心10 min后,收集上层有机相并用无水硫酸钠脱水。角鲨烯(SQ)、2,3-氧化鲨烯(OSQ)、2,3;22,23-二环氧鲨烯(DOS)、羽扇豆醇和24,25-二羟基葫芦二烯醇(24,25-DHCU)使用GC-2014C系统(岛津,日本)分析,配备Agilent HP-5毛细管柱(30 m × 0.32 mm × 0.25 μm)和火焰离子化检测器(FID)。柱温初始在70°C保持2 min,然后以20°C/min升至300°C并保持10 min。进样口和FID温度分别设为280°C和320°C。对于BA、白桦脂醇和罗汉果醇,有机相在氮气流下蒸干,重新溶于HPLC级甲醇中。使用SHIMADZU LC-16系统在Agilent TC-C18柱(250 × 4.6 mm × 5 μm)上分析,检测波长210 nm。流动相由0.2%(v/v)甲酸水溶液(A)和0.2%(v/v)甲酸乙腈溶液(B)组成。对于BA和白桦脂醇,梯度洗脱程序为:80%至100% B洗脱30 min,然后在5 min内返回80% B,流速0.6 mL/min。对于罗汉果醇,梯度洗脱程序为:50%至100% B洗脱30 min,然后在20 min内返回50% B,流速0.5 mL/min。
【数据】提取体积:800 μL发酵液+800 μL乙酸乙酯+200 mg玻璃珠;破碎条件:6 m/s、10个循环;离心:12,000 rpm、10 min;GC柱温:70°C 2 min→20°C/min→300°C 10 min;进样口温度:280°C;FID温度:320°C;HPLC检测波长:210 nm;BA/白桦脂醇流速:0.6 mL/min;罗汉果醇流速:0.5 mL/min;流动相:0.2%甲酸水溶液/0.2%甲酸乙腈溶液
2.5 补料分批发酵
为评估放大潜力,分别在500-mL摇瓶和7-L生物反应器中进行补料分批发酵。在500-mL摇瓶中,12 h时添加10 g/L葡萄糖促进增殖,通过补加500 g/L葡萄糖溶液维持乙醇浓度在5–10 g/L。对于生物反应器发酵,一级种子培养物(5 mL YPD,18 h)以初始OD600为0.05接种二级培养物(200 mL YPD于1 L摇瓶中,12 h)。随后转移至2.5 L发酵培养基中,培养基组成为20 g/L葡萄糖、10 g/L酵母提取物、20 g/L蛋白胨、8 g/L KH2PO4、3 g/L MgSO4,并添加微量元素和维生素。使用氨水维持pH在5.0–5.5,通过补加600 g/L葡萄糖溶液维持乙醇浓度低于10 g/L。对于两阶段发酵策略,初始使用葡萄糖支持生物量积累。当OD600达到约150时,切换为乙醇驱动的产物强化阶段。对于纯葡萄糖补料分批策略,整个发酵过程中持续补加葡萄糖,动态调整补料速率以最小化整个发酵过程中的乙醇积累。
【数据】摇瓶补料:12 h添加10 g/L葡萄糖、乙醇维持5–10 g/L、补料葡萄糖浓度500 g/L;生物反应器:二级培养200 mL YPD/1 L摇瓶/12 h、发酵培养基2.5 L(20 g/L葡萄糖、10 g/L酵母提取物、20 g/L蛋白胨、8 g/L KH2PO4、3 g/L MgSO4)、pH 5.0–5.5、乙醇<10 g/L、补料葡萄糖600 g/L、两阶段切换OD600约150
2.6 统计分析
统计分析和图形可视化使用GraphPad Prism 9(GraphPad Software,美国)和Origin 2021(OriginLab Corporation,美国)进行。摇瓶实验设三个平行,使用方差分析评估结果的显著性(p < 0.05)。
【数据】统计软件:GraphPad Prism 9、Origin 2021;平行数:3;显著性阈值:p < 0.05
研究结果
3.1 通过代谢重编程和翻译后调控构建高通量OSQ和DOS双前体底盘菌株
角鲨烯(SQ)是所有结构类别三萜类生物合成的通用中心前体,但其在酿酒酵母中的积累受到复杂的天然甾醇稳态调控网络和快速下游流向必需麦角甾醇生物合成的严格限制。为绕过这些严格的系统性约束,对天然甲羟戊酸(MVA)途径依次执行了系统性“推-拉-阻”代谢工程策略(图1A)。通过整合并过表达关键限速途径基因,包括tHMG1(编码截短型HMG-CoA还原酶)、ERG20(编码法尼基焦磷酸合成酶)、ERG9(编码角鲨烯合成酶)和ERG8(编码磷酸甲羟戊酸激酶),显著强化了上游前体供应。同时,为最小化竞争性通量泄漏并缓解强转录反馈抑制,系统敲除了BTS1(编码香叶基香叶基焦磷酸合成酶)、ROX1(编码血红素依赖性转录抑制因子)和YPL062W基因。这一渐进式途径重工程产生了菌株Squ01至Squ04。初步工程评估表明,角鲨烯产量成功提高,在菌株Squ02中达到最高558.2 mg/L(图1B)。然而,进一步增加MVA途径基因拷贝数未能进一步提高SQ产量,表明上游前体合成能力已达到代谢饱和状态。相反,通过删除天然ERG9启动子区域内的上游阻遏序列(URS)来解除转录控制的尝试(菌株Squ04)严重损害了细胞适应性,导致细胞生长急剧崩溃(OD600降至8.33)和SQ生产能力几乎完全丧失(1.5 mg/L)。因此,选择菌株Squ02作为所有后续工程的最优基线底盘。
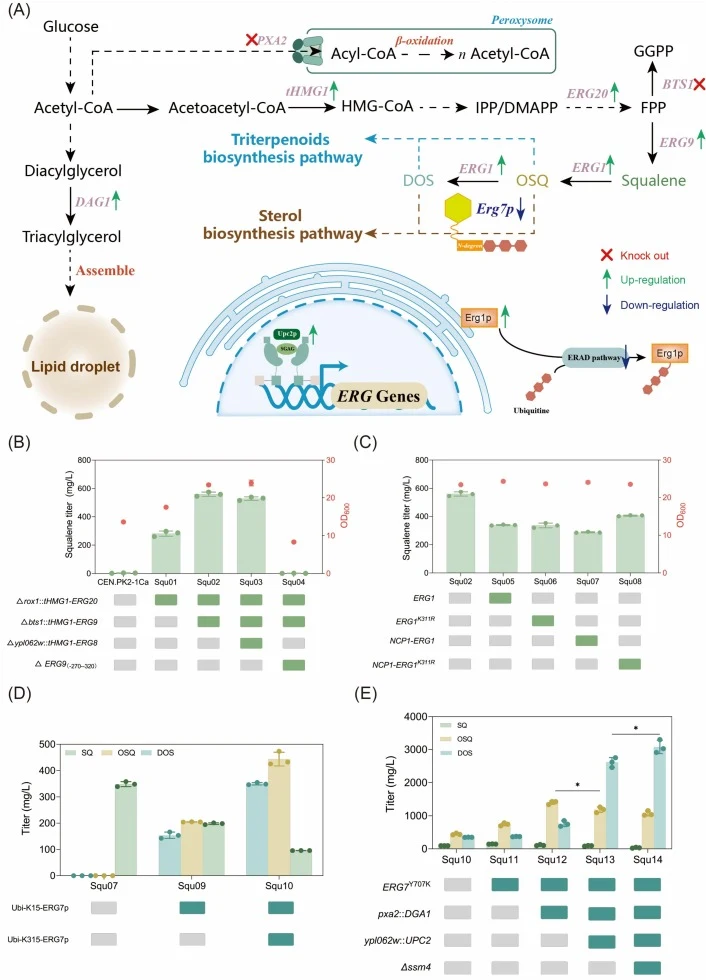
在野生型酵母菌株中,2,3-氧化鲨烯(OSQ)和2,3;22,23-二环氧鲨烯(DOS)的下游中间体是分支向异源三萜途径的关键分界节点。然而,由于天然细胞生存需求,这些中间体被必需酶羊毛甾醇合酶(Erg7p)快速高效地导入核心甾醇生物合成,限制了可用于异源目标途径的代谢通量。为应对这一挑战,首先通过过表达ERG1(编码角鲨烯环氧化酶)、其稳定化变体(Erg1p K311R),并与NADPH-细胞色素P450还原酶NCP1建立共表达系统(菌株Squ05-Squ08)来扩增角鲨烯环氧化能力。尽管积累的角鲨烯被有效消耗,但在这些菌株中未检测到OSQ或DOS的胞内积累(图1C)。这种严格的“零积累”表型证实,标准的转录上调或简单的酶过表达策略完全不足以绕过天然甾醇途径维持的强大稳态屏障。
【数据】菌株:Squ01-Squ08;SQ最高产量:558.2 mg/L(Squ02);Squ04 OD600:8.33;Squ04 SQ产量:1.5 mg/L;OSQ/DOS胞内积累:未检测到
为克服这一稳态屏障,我们实施了翻译后蛋白质水平调控策略,通过在Erg7p的N端附加基于泛素的N-degron标签(Ubi-K15和Ubi-K315),从而通过蛋白酶体介导的N端规则途径加速其靶向降解,同时维持必需的生存功能。在该降解级联中,靶蛋白半衰期主要取决于N端延伸间隔区内作为泛素化受体的内部赖氨酸残基的空间排列和可用性。具体而言,Ubi-K15在第15位具有单个内部赖氨酸,提供中等的泛素化效率和相对延长的蛋白半衰期。相反,Ubi-K315在第3位引入额外的赖氨酸,将受体置于更靠近去稳定化N端残基的位置,从而显著加速多泛素化和蛋白酶体周转。评估这两种具有不同降解动力学的N-degron标签,使我们能够系统滴定Erg7p丰度,并在代谢瓶颈缓解和细胞活力之间建立最佳平衡。这种靶向翻译后削弱成功打破了零积累瓶颈,触发了两种中心中间体的即时且大量胞内积累(图1D和S1)。具体而言,菌株Squ10中降解更快的Ubi-K315构建体实现了OSQ产量443.7 mg/L和DOS产量349.7 mg/L,与基线对照菌株Squ07相比发生了显著转变。然而,生物量产量的伴随下降凸显了固有的代谢权衡:将Erg7p过度削弱至关键阈值以下会损害膜完整性和细胞适应性(图S2)。胞内甾醇水平的定量证实,菌株Squ09、Squ10和Squ11中的Erg7p削弱导致麦角甾醇含量中度、统计学显著的降低(从Squ07的11.3 mg/L下降10–15%至9.6 mg/L;图S2B)。这种下降表明,流向麦角甾醇的竞争性通量被有效削减以驱动前体积累,同时保留了防止完全途径阻断下所见的灾难性生长崩溃所必需的基础甾醇合成(图S2A)。尽管如此,这种扰动的稳态状态需要多维网络重构才能在高通量条件下完全恢复细胞生长。
【数据】菌株:Squ09、Squ10、Squ11;N-degron标签:Ubi-K15(第15位赖氨酸)、Ubi-K315(第3位赖氨酸);Squ10 OSQ产量:443.7 mg/L;Squ10 DOS产量:349.7 mg/L;麦角甾醇含量:从11.3 mg/L降至9.6 mg/L(下降10–15%)
为协调细胞生长缺陷并最大化总碳通量路由,在Squ10背景中执行了系统性、多维修饰方案(图1E)。首先,将特异性活性位点突变(ERG7Y707K)引入Erg7p,以结构性地降低其活性而不完全消除酶的存在,这使菌株Squ11中OSQ产量提高67%至741.0 mg/L。为扩展胞内储存池并将过氧化物酶体乙酰辅酶A重新导向细胞质,删除了过氧化物酶体转运蛋白基因PXA2,同时过表达了二酰甘油酰基转移酶DGA1。脂滴和储存扩展策略产生了菌株Squ12,实现了1.4 g/L OSQ和0.8 g/L DOS的产量。此外,过表达转录激活因子Upc2p(菌株Squ13)过度激活了上游Erg1p环氧化通量,使产物谱急剧转向DOS积累,产生3.44倍增长,达到2.6 g/L DOS。最后,为防止Erg1p通过内质网相关降解(ERAD)途径降解,删除了E3泛素连接酶基因SSM4。最终底盘菌株Squ14达到了前所未有的3.1 g/L DOS产量(表S4)。总体而言,这些结果表明,将靶向蛋白质水平调控与全局网络重构相结合,可以有效地将必需的初级途径分支转化为下游三萜生物合成的高效生产平台。具体而言,必需酶Erg7p的靶向削弱破坏了甾醇稳态(图S2),而疏水性OSQ和DOS中间体的过度积累进一步施加膜压力,共同损害细胞完整性。为抵消这些生理缺陷,代谢网络重构……
【数据】菌株:Squ11、Squ12、Squ13、Squ14;突变:ERG7Y707K;Squ11 OSQ产量:741.0 mg/L(提高67%);Squ12 OSQ产量:1.4 g/L、DOS产量:0.8 g/L;Squ13 DOS产量:2.6 g/L(增长3.44倍);Squ14 DOS产量:3.1 g/L;敲除基因:PXA2、SSM4;过表达基因:DGA1、Upc2p
讨论与解读
本研究通过在酿酒酵母中克服天然甾醇稳态,建立了稳健的前体驱动型细胞工厂平台。通过翻译后N-degron调控,实现了中心中间体OSQ(1.4 g/L)和DOS(3.1 g/L)的创纪录积累。该双前体底盘的能力和多功能性通过结构不同的三萜类化合物的高水平生物合成得到验证,表明下游途径架构决定了产物特异性的最优操作策略。对于五环BA生物合成,平衡酶化学计量比并采用延长的两阶段补料分批发酵,有效地最大化了向羽扇豆烷型三萜的累积碳路由,在7-L生物反应器中产生了创纪录的最终总产量8.5 g/L(包括693.5 mg/L BA)。关键的是,对于四环罗汉果醇生物合成,过程动力学优化揭示,在50-L中试规模从两阶段方案转变为简化的纯葡萄糖一步补料策略更为高效;这种单底物方案将罗汉果醇培养周期压缩了约46–50%,同时缓解了碳源转换压力,从而实现了创纪录的罗汉果醇产量124.5 mg/L,以及前所未有的体积生产率(Qp)1.6 mg/L/h。总体而言,中试规模下21.3 g/L DOS的大量残留积累凸显了该平台尚未充分释放的潜力……
编译者解读
该研究的核心创新在于用泛素N-degron标签在蛋白质层面“微调”Erg7p丰度,而非粗暴敲除必需基因——这解决了甾醇途径不可完全阻断与异源途径需要前体释放之间的根本矛盾。双前体底盘(OSQ 1.4 g/L、DOS 3.1 g/L)的通用性在BA和罗汉果醇两条结构迥异的途径中得到验证,尤其是50-L中试的纯葡萄糖一步补料策略将发酵周期压缩近半,展现了工业化潜力。局限在于罗汉果醇产量(124.5 mg/L)仍远低于BA,且21.3 g/L DOS残留说明下游P450催化效率是当前瓶颈。未来若能将蛋白质降解调控扩展至更多竞争分支节点,该平台有望推广至更广泛的三萜类天然产物。
参考来源
期刊:Bioresource Technology, 2026
DOI: 10.1016/j.biortech.2026.136033
DOI: 10.1016/j.biortech.2026.136033