来源:Biosynthesis of C-phycocyanin trimers(Biochimica et Biophysica Acta (BBA) - Bioenergetic)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
藻蓝蛋白是蓝细菌捕光复合体的核心组分,其功能依赖多个藻蓝胆素(PCB)发色团在α和β亚基上的精确共价连接。本研究利用T7与araBAD双启动子系统,在大肠杆菌中调控CpcT与CpcS的表达顺序,实现了β亚基上β82和β153位点两个PCB的顺序结合,获得具有能量传递功能的HT-PCB2-β。进一步将HT-PCB-α与PCB2-β体外组装,成功获得结构与天然CPC高度相似的三聚体,并建立了大肠杆菌中CPC三聚体的生物合成路径。
研究背景
光合作用是维持地球生命与生态平衡的基础过程,其高效的光捕获与转化机制为清洁能源和仿生材料开发提供了理想蓝本。蓝细菌的主要捕光天线是藻胆体(PBS),一种由藻胆蛋白和连接蛋白组成的大型捕光蛋白超复合体,位于类囊体膜的胞质侧。根据是否存在别藻蓝蛋白,PBS可分为CpcG-PBS和CpcL-PBS两类。PBS杆的主要组分是蓝细菌藻蓝蛋白(CPC),在捕光和能量传递中发挥核心作用。CPC由α(CpcA)和β(CpcB)亚基组成:α亚基在α84位点结合一个PCB,β亚基在β82和β153位点各结合一个PCB。α84、β82和β153位点的保守残基均为半胱氨酸,是PCB发色团的共价结合位点。能量从β153-PCB向β82-PCB的传递构成杆内能量传递的第一步。目前,功能性CPC的简便、大规模获取仍面临重大挑战,主要瓶颈在于多个PCB发色团需要精确、顺序地共价连接。
研究方法
4.1 质粒构建
所有基因操作均按标准方案进行。基因cpcB、cpcS、cpcT、ho1、pcyA、cpcA、cpcE和cpcF均来自念珠藻(Nostoc)。用于表达PCB的质粒pACYC-ho1-pcyA已有报道。基因cpcB和cpcT经PCR扩增后,通过限制性内切酶BamHI、SalI、NdeI和XhoI连接入含有两个多克隆位点的表达载体pCOLADuet-1(Novagen),获得pCOLA-cpcB N-his-cpcT;以相同方式获得pCOLA-cpcB N-his-cpcS。“N-his”下标表示所表达蛋白的N端融合了His标签。此外,还设计了在cpcB N端不含His标签的pCOLA-cpcB-cpcT和pCOLA-cpcB-cpcS。基因cpcS经PCR扩增后,通过限制性内切酶NcoI和EcoRI连接入载体pBAD(Novagen),获得pBAD-cpcS。基因cpcA经PCR扩增后,通过限制性内切酶BglII和XhoI连接入载体pET30-a(Novagen),获得pET-cpcA N-his。为构建pET-cpcA N-his-cpcE-cpcF,使用Gibson组装将cpcE-cpcF片段从先前报道的pCDF-cpcE-cpcF亚克隆入pET-cpcA N-his。此处,载体pET30-a和pCOLA Duet-1均携带卡那霉素抗性基因(KmR)。为实现大肠杆菌中CPC三聚体的生物合成,我们将载体pCDFDuet-1(Novagen)中的链霉素抗性基因(SmR)替换为来自pET30-a的KmR,生成质粒pET-cpcA N-his-cpcE-cpcF(SmR)。
【数据】菌株:大肠杆菌BL21(DE3);质粒:pCOLADuet-1、pBAD、pET30-a、pCDFDuet-1、pACYC-ho1-pcyA;限制性内切酶:BamHI、SalI、NdeI、XhoI、NcoI、EcoRI、BglII;抗性基因:KmR、SmR;基因来源:Nostoc;原文未详述PCR扩增条件
4.2 蛋白表达与纯化
将两个或多个质粒共转化入BL21(DE3)细胞,每个质粒用其对应的抗生素进行筛选(pCOLA衍生物用卡那霉素,pACYC-ho1-pcyA用氯霉素,pBAD-cpcS用氨苄青霉素,pET-cpcA N-his-cpcE-cpcF用卡那霉素,pET-cpcA N-his-cpcE-cpcF(SmR)用链霉素)。为生成HT-PCB2-β,将质粒pCOLA-cpcB N-his-cpcT、pACYC-ho1-pcyA和pBAD-cpcS共转化入BL21(DE3)细胞。为生成CPC三聚体,将上述质粒pCOLA-cpcB N-his-cpcT替换为不含His标签的pCOLA-cpcB-cpcT,并与pET-cpcA N-his-cpcE-cpcF(SmR)共转化。在两个对照实验中,省略pBAD-cpcS,或省略并替换为pCOLA-cpcB N-his-cpcS或pCOLA-cpcB-cpcS。大肠杆菌生物合成时,细胞在含适当抗生素的TB培养基中培养:氯霉素(40 μg/mL)、卡那霉素(30 μg/mL)、链霉素(50 μg/mL)或氨苄青霉素(50 μg/mL),具体取决于所用质粒。培养物在37 °C振荡培养至OD600达到0.8,此时用1 mM IPTG在16 °C诱导20 h。当质粒pBAD-cpcS存在时,IPTG诱导后需额外用0.2 mM L-阿拉伯糖在16 °C再诱导24 h。随后通过离心收集细胞。蛋白纯化时,将大肠杆菌细胞沉淀重悬于冰预冷的含0.3 M NaCl的20 mM磷酸钾缓冲液(KPB,pH 7.2)中,用French press裂解。裂解液在4 °C、12,000 ×g离心60 min,澄清上清液用螯合Sepharose(Amersham Biosciences)进行Ni2+亲和层析。结合蛋白用含0.3 M NaCl和0.5 M咪唑的20 mM KPB(pH 7.2)洗脱。洗脱样品对含150 mM NaCl的20 mM KPB(pH 7.2)透析。
【数据】菌株:BL21(DE3);培养基:TB;抗生素浓度:氯霉素40 μg/mL、卡那霉素30 μg/mL、链霉素50 μg/mL、氨苄青霉素50 μg/mL;诱导条件:OD600=0.8,1 mM IPTG,16°C,20 h;额外诱导:0.2 mM L-阿拉伯糖,16°C,24 h;裂解缓冲液:20 mM KPB,0.3 M NaCl,pH 7.2;离心条件:12,000 ×g,60 min,4°C;洗脱液:20 mM KPB,0.3 M NaCl,0.5 M咪唑,pH 7.2;透析液:20 mM KPB,150 mM NaCl,pH 7.2
4.3 HT-PCB-CpcA与PCB2-CpcB的组装
将HT-PCB-α(20 μM,溶于20 mM KPB、150 mM NaCl、pH 7.2)与不同浓度的PCB2-β混合。每种混合物随后在室温下对含4 M尿素的缓冲液透析1 h,使胆蛋白解聚为单体。然后将混合物对0.8 M KPB透析12 h,并离心(30 min,20,000 ×g,4 °C)去除沉淀。上清液用Ni2+亲和层析柱纯化,组装复合体用含500 mM咪唑的0.8 M KPB(pH 7.2)洗脱。
【数据】HT-PCB-α浓度:20 μM;缓冲液:20 mM KPB,150 mM NaCl,pH 7.2;解聚条件:4 M尿素,室温,1 h;复性透析:0.8 M KPB,12 h;离心条件:20,000 ×g,30 min,4°C;洗脱液:0.8 M KPB,500 mM咪唑,pH 7.2
4.4 蔗糖密度梯度离心
样品对0.8 M KPB(pH 7.2)透析并离心。然后将上清液加载到3%、5%、7.5%、10%和15%(w/v)的蔗糖阶梯梯度上,每个蔗糖浓度体积为2 mL。最后在Hitachi CP80-WX的P40ST转子中以200,000 ×g、16 °C离心10 h。
【数据】蔗糖梯度浓度:3%、5%、7.5%、10%、15%(w/v);每层体积:2 mL;离心条件:200,000 ×g,10 h,16°C;转子:P40ST(Hitachi CP80-WX)
4.5 蛋白寡聚化状态分析
为确定蛋白的寡聚状态,首先通过Ni2+亲和层析纯化,然后用20 mM KPB(50 mM NaCl,pH 7.2)进行尺寸排阻色谱(Superdex™ 200 10/300 GL)。分子量通过标记标准品(Sigma-Aldrich)的校准曲线确定。
【数据】色谱柱:Superdex™ 200 10/300 GL;缓冲液:20 mM KPB,50 mM NaCl,pH 7.2;分子量标准品:Sigma-Aldrich;原文未详述流速和上样量
4.6 SDS-PAGE分析
蛋白样品使用FastPAGE预制胶(Tsingke Biotechnology Co., Ltd)进行SDS-PAGE分析。样品在含β-巯基乙醇的还原性样品缓冲液中煮沸15 min变性。凝胶用考马斯亮蓝R-250染色以显示蛋白条带。为鉴定含胆素的蛋白,在紫外光照下对相关条带进行Zn2+诱导荧光检测。此外,使用ImageJ软件定量条带强度;具体评估蛋白条带的积分密度(IntDen)值。两种蛋白的摩尔比用以下公式计算:摩尔比 = IntDenA / IntDenB × MA / MB,其中IntDenA和IntDenB分别为蛋白A和B的IntDen值,MA和MB分别为蛋白A和B的分子量。
【数据】凝胶:FastPAGE预制胶;变性条件:含β-巯基乙醇的还原性缓冲液,煮沸15 min;染色:考马斯亮蓝R-250;荧光检测:Zn2+诱导荧光,紫外光照;定量软件:ImageJ;计算公式:摩尔比 = IntDenA / IntDenB × MA / MB
4.7 光谱分析
吸收光谱在1-cm比色皿中使用UV-9000S分光光度计记录。共价结合的发色团在酸性尿素(8 M,pH 1.5)变性后,通过其在662 nm处的吸收定量(PCB),使用消光系数35,500 M−1 cm−1。室温荧光光谱使用F-320荧光分光光度计记录。激发和发射带宽均为5 nm,所有发射光谱的激发波长为580 nm。Norm. Fluo.表示荧光光谱已归一化。CD光谱使用MOS-500 CD光谱仪(Bio-Logic, Claix)在可见光区域记录。
【数据】吸收光谱仪器:UV-9000S;比色皿光程:1 cm;变性条件:8 M酸性尿素,pH 1.5;PCB定量波长:662 nm;消光系数:35,500 M−1 cm−1;荧光仪器:F-320;带宽:5 nm;激发波长:580 nm;CD仪器:MOS-500(Bio-Logic, Claix)
4.8 结晶与数据收集
经尺寸排阻色谱纯化的组装CPC三聚体(HT-αβ)3在含50 mM NaCl的20 mM KPB(pH 7.2)中调整至617 nm处OD为25。使用96孔三坐滴板(TTP Lab Tech;目录号4150-05800)和商业筛选试剂盒(Hampton Research)对(HT-αβ)3进行结晶条件筛选。等体积(0.8 μL)的(HT-αβ)3和储液在289 K下充分混合。最终,(HT-αβ)3在由0.1 M柠檬酸三钠二水合物(pH 5.5)和18% w/v聚乙二醇3350组成的储液中结晶,3天内形成蓝色矩形晶体。所有晶体在液氮闪冷前用补充30%甘油(v/v)的母液进行冷冻保护。所有衍射数据在上海同步辐射设施BL20U1线站收集,并使用XIA2、DIALS和HKL2000处理。结构通过Phenix以分子置换法解析,以螺旋藻(Spirulina platensis)藻蓝蛋白链A和B(PDB ID 1GH0)为搜索模型。模型构建使用Coot,结构精修用Phenix完成。所有图片使用PyMOL生成。结构精修和模型统计汇总于表1。
【数据】蛋白浓度:617 nm处OD=25;缓冲液:20 mM KPB,50 mM NaCl,pH 7.2;结晶板:96孔三坐滴板(TTP Lab Tech,4150-05800);液滴体积:0.8 μL + 0.8 μL;温度:289 K;储液:0.1 M柠檬酸三钠二水合物,pH 5.5,18% w/v PEG 3350;结晶时间:3天;冷冻保护剂:30%甘油(v/v);线站:上海同步辐射BL20U1;处理软件:XIA2、DIALS、HKL2000;解析软件:Phenix;搜索模型:PDB ID 1GH0;模型构建:Coot;制图:PyMOL
研究结果
2.1 PCB2-CpcB的生物合成
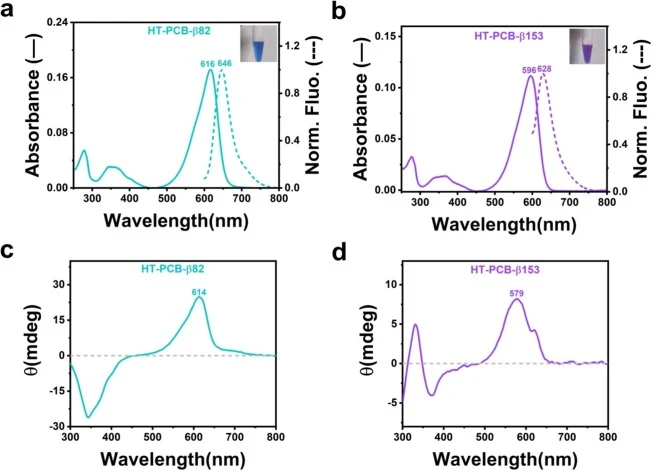
在念珠藻中,两个PCB发色团共价结合在CpcB的两个半胱氨酸残基上:β82和β153。β82位的结合由裂合酶CpcS催化,β153位的结合由CpcT催化。我们构建了质粒pCOLA-cpcB N-his-cpcS和pCOLA-cpcB N-his-cpcT(图S1),分别与pACYC-ho1-pcyA共转化入大肠杆菌,表达基因获得HT-PCB-β82(HT表示His标签)或HT-PCB-β153,各仅结合一个PCB。HT-PCB-β82在616 nm处显示吸收峰,在646 nm处显示荧光峰(图1a);HT-PCB-β153在596 nm处显示吸收峰,在628 nm处显示荧光峰(图1b)。HT-PCB-β82和HT-PCB-β153的圆二色(CD)光谱也分别在614 nm和579 nm处显示正峰(图1c、d)。结果与先前报道一致。HT-PCB-β153的CD峰与吸收峰之间的差异可能归因于结合PCB发色团的手性环境。此外,ODAλmax/OD280值可反映藻胆蛋白的色基化程度,HT-PCB-β82为3.20,HT-PCB-β153为3.53(表S1),表明它们的色基化程度较为接近。当CpcS和CpcT同时存在时,β82位的PCB色基化会抑制β153位的PCB色基化。
为在大肠杆菌中生物合成PCB2-β(两个PCB发色团分别结合在β82和β153位),我们构建了双启动子、多质粒表达系统以确保CpcT先于CpcS表达。我们构建了质粒pBAD-cpcS(图S1),与pCOLA-cpcB N-his-cpcT和pACYC-ho1-pcyA共转化入大肠杆菌。在该系统中,载体pCOLADuet-1和pACYCDuet-1携带T7启动子(IPTG可诱导T7 RNA聚合酶表达,从而驱动T7启动子转录),用于表达基因cpcB、cpcT、ho1和pcyA。另外,载体pBAD/HisA携带araBAD启动子(L-阿拉伯糖可结合调控蛋白AraC,从而激活araBAD启动子转录),用于表达基因cpcS。接下来,先通过IPTG诱导生成HT-PCB-β153,然后用L-阿拉伯糖诱导CpcS表达,使PCB结合到β82位,从而产生HT-PCB2-β。双启动子策略使得CpcS和CpcT的表达顺序得以调控,从而控制PCB与β82和β153的结合顺序。根据不同表达条件下获得的HT-PCB2-β特征峰变化,我们得出结论:当细胞OD600达到0.8时,先用IPTG诱导20 h,再用L-阿拉伯糖在16 °C诱导24 h来表达HT-PCB2-β是合适的(图S2)。HT-PCB2-β的吸收和荧光最大峰分别在605 nm和644 nm(图2a),与先前报道一致。光谱分析显示,HT-PCB2-β的荧光光谱相比HT-PCB-β153发生显著红移,表明能量从β153-PCB向β82-PCB传递。HT-PCB2-β的激发光谱显示一个宽峰,可能源于两个PCB发色团的存在。其在596 nm(对应β153-PCB发色团吸收最大)和616 nm(对应β82-PCB发色团吸收最大)处的荧光峰比值约为1:1(图2b),表明PCB在β82和β153位点的结合效率相当。HT-PCB2-β的CD光谱在576 nm处显示正峰(图2c),与HT-PCB-β153的CD光谱高度相似。这种相似性是因为其CD主要由β153-PCB发色团决定,且CD光谱最大值接近该发色团的吸收峰最大。在SDS-PAGE中,HT-PCB2-β迁移比HT-PCB-β82和HT-PCB-β153更慢(图2d),与其因含有两个PCB发色团而质量更大一致。此外,三个蛋白条带在Zn2+和紫外照射下均发出荧光,证实了胆素发色团的共价结合。尺寸排阻色谱进一步显示HT-PCB2-β的分子量约为43 kDa(图2e),表明其在溶液中主要以同源二聚体形式存在。
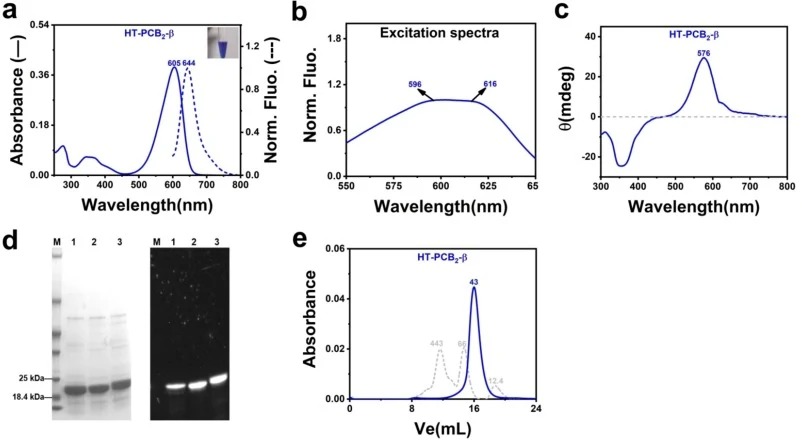
【数据】吸收峰:HT-PCB-β82=616 nm;HT-PCB-β153=596 nm;HT-PCB2-β=605 nm;荧光峰:HT-PCB-β82=646 nm;HT-PCB-β153=628 nm;HT-PCB2-β=644 nm;CD正峰:HT-PCB-β82=614 nm;HT-PCB-β153=579 nm;HT-PCB2-β=576 nm;ODAλmax/OD280:HT-PCB-β82=3.20;HT-PCB-β153=3.53;激发光谱峰比(596 nm:616 nm)≈1:1;HT-PCB2-β分子量≈43 kDa;诱导条件:OD600=0.8,1 mM IPTG,16°C,20 h + 0.2 mM L-阿拉伯糖,16°C,24 h
2.2 CPC三聚体的组装
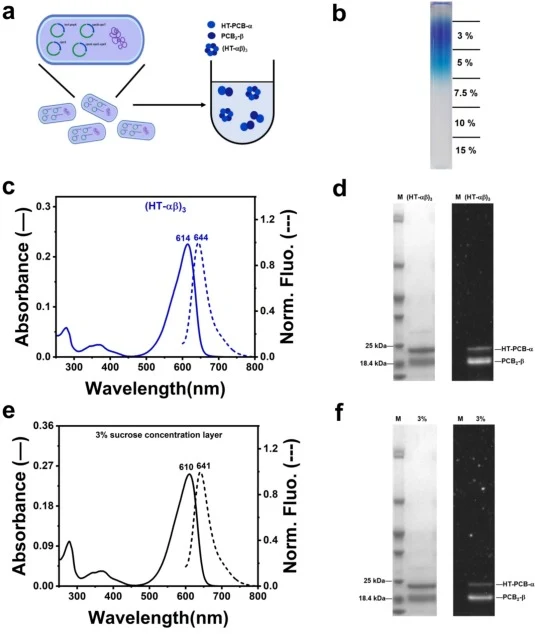
藻蓝蛋白CPC含有α和β亚基,可自发形成单体αβ,然后组装成三聚体(αβ)3。在大肠杆菌中生物合成PCB2-β后,下一步尝试通过体外组装获得CPC三聚体。构建了质粒pET-cpcA N-his-cpcE-cpcF用于表达基因cpcA、cpcE和cpcF(图S3a),随后与pACYC-ho1-pcyA共转化,以产生HT-PCB-α。HT-PCB-α在618 nm处有吸收峰,在642 nm处有荧光峰(图S3b),与先前报道基本一致,ODAλmax/OD280值为3.80(表S1)。SDS-PAGE显示HT-PCB-α的分子量为21 kDa,与CpcA加His标签一致,其在Zn2+和紫外照射下的荧光进一步证实了PCB的共价结合(图S3c)。此外,尺寸排阻色谱显示HT-PCB-α的分子量为37 kDa,表明其在溶液中同样以同源二聚体形式存在(图S3d)。通过体外组装构建藻胆蛋白复合体并不罕见。此处尝试用该方法将蛋白HT-PCB-α和PCB2-β(图S4)体外组装以获得CPC三聚体(图3a)。蔗糖密度梯度离心分析显示,HT-PCB-α和PCB2-β可在多种摩尔比(如1:1、1:2、1:3、1:4)下组装;其中1:2比例组装效果最佳,复合体主要迁移至5%(w/v)蔗糖层(图S5a),分子量约为118 kDa(图3c)。该复合体在617 nm处显示吸收峰,在646 nm处显示荧光峰(图3f),其CD光谱也在618 nm处显示正峰(图3i)。SDS-PAGE显示该复合体含有HT-PCB-α和PCB2-β(图S5b),ImageJ分析进一步确定其摩尔比接近1:1。总之,以上所有结果表明该蛋白是CPC三聚体(HT-αβ)3(由HT-PCB-α和PCB2-β组成),其光谱性质与先前报道相似。此外,用相同方法组装HT-PCB-α与PCB-β82或PCB-β153,两者均仅停留在3%蔗糖浓度层(图3b),其分子量分别为85 kDa和60 kDa(图3d、e)。HT-PCB-α加PCB-β82的吸收峰在620 nm,荧光峰在644 nm(图3g);HT-PCB-α加PCB-β153的吸收峰在608 nm,荧光峰在641 nm(图3h)。此外,它们的CD光谱分别在630 nm和611 nm处显示正峰(图3j、k)。结果表明,在相同条件下,HT-PCB-α与PCB-β82或PCB-β153均能相互作用并组装成复合体,但无法形成CPC三聚体。这也表明两个PCB发色团与β82和β153位点的共价结合对CPC三聚体的成功组装至关重要。
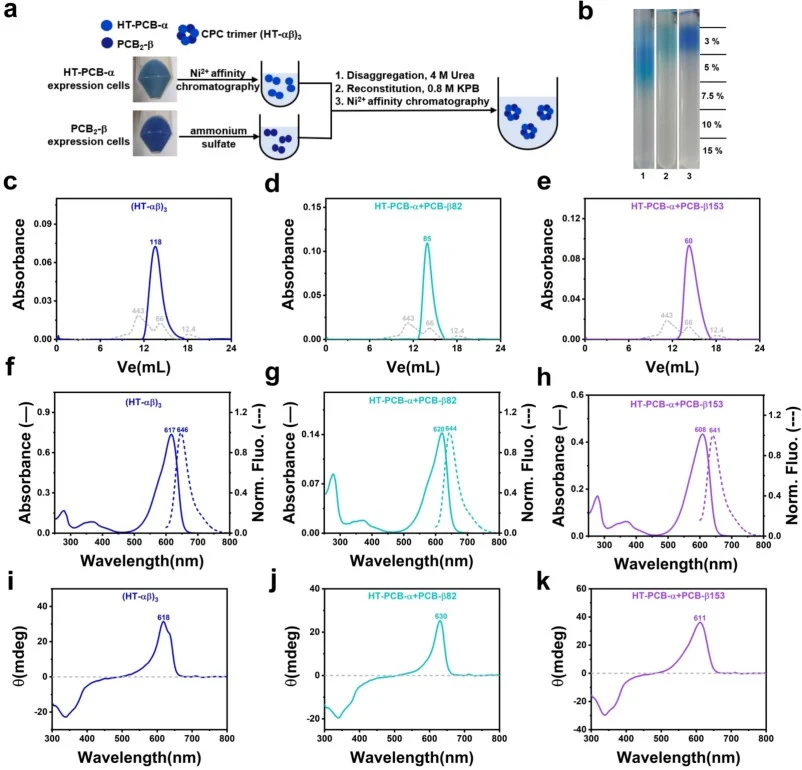
【数据】HT-PCB-α吸收峰:618 nm;荧光峰:642 nm;ODAλmax/OD280=3.80;分子量(SDS-PAGE):21 kDa;分子量(尺寸排阻):37 kDa;(HT-αβ)3最佳组装摩尔比:1:2;迁移层:5%(w/v)蔗糖;分子量:~118 kDa;吸收峰:617 nm;荧光峰:646 nm;CD正峰:618 nm;摩尔比(ImageJ):≈1:1;HT-PCB-α+PCB-β82:分子量85 kDa,吸收峰620 nm,荧光峰644 nm,CD正峰630 nm,迁移层3%蔗糖;HT-PCB-α+PCB-β153:分子量60 kDa,吸收峰608 nm,荧光峰641 nm,CD正峰611 nm,迁移层3%蔗糖
2.3 组装CPC三聚体的晶体结构
为进一步确认CPC三聚体(HT-αβ)3的身份,我们通过X射线晶体学表征其结构。(HT-αβ)3的晶体结构使用Phenix以分子置换法解析,以螺旋藻(Spirulina platensis)藻蓝蛋白链A和B(PDB ID 1GH0)为搜索模型。衍射数据使最终模型在2.5 Å分辨率下构建完成。
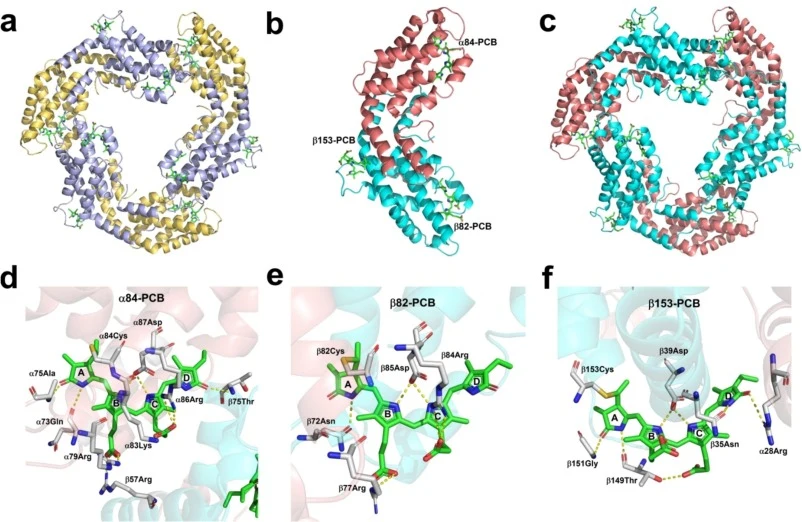
【数据】分辨率:2.5 Å;解析方法:分子置换法;软件:Phenix;搜索模型:PDB ID 1GH0(螺旋藻藻蓝蛋白链A和B);原文未详述R因子和CC值
2.4 CPC三聚体的生物合成
【数据】原文未详述该部分具体实验数据
讨论与解读
本研究通过双启动子(T7和araBAD)系统在大肠杆菌中实现了两个PCB发色团与CpcB的顺序结合。关键策略在于利用T7启动子先表达CpcT完成β153位色基化,再用L-阿拉伯糖诱导araBAD启动子表达CpcS完成β82位色基化,从而绕过β82色基化对β153的抑制效应。所获得的HT-PCB2-β在605 nm吸收、644 nm发射,且表现出从β153-PCB向β82-PCB的能量传递。体外组装实验证明,只有同时共价结合两个PCB的PCB2-β才能与HT-PCB-α组装成完整的CPC三聚体(617 nm吸收、646 nm发射),而仅结合单个PCB的PCB-β82或PCB-β153只能形成非三聚体复合物。晶体结构在2.5 Å分辨率下解析,显示组装三聚体采用典型藻胆蛋白折叠,多个发色团精确排布,与天然CPC高度相似。该研究还建立了大肠杆菌中CPC三聚体的生物合成路径。
编译者解读:该工作的核心亮点在于用双启动子时序控制解决了藻胆蛋白多发色团顺序结合的难题——这是一个在合成生物学中颇具代表性的"时序调控"策略。相比传统的体外酶催化或单一强启动子共表达,T7/araBAD分级诱导实现了对两种裂合酶表达顺序的精确控制,方法简洁且可推广至其他多亚基藻胆蛋白的异源合成。局限在于组装仍依赖体外透析复性,且晶体分辨率2.5 Å未达原子级细节,未来若能将组装步骤完全内化于细胞,将更接近真正意义上的"全生物合成"。
参考来源
期刊:Biochimica et Biophysica Acta (BBA) - Bioenergetics, 2026
DOI: 10.1016/j.bbabio.2026.149599
DOI: 10.1016/j.bbabio.2026.149599