来源:Structural and biochemical basis for the formation of α-(1→3)-linked mannose residue in O-glycans of Saccharomyces cerevisiae(Journal of Biological Chemistry)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
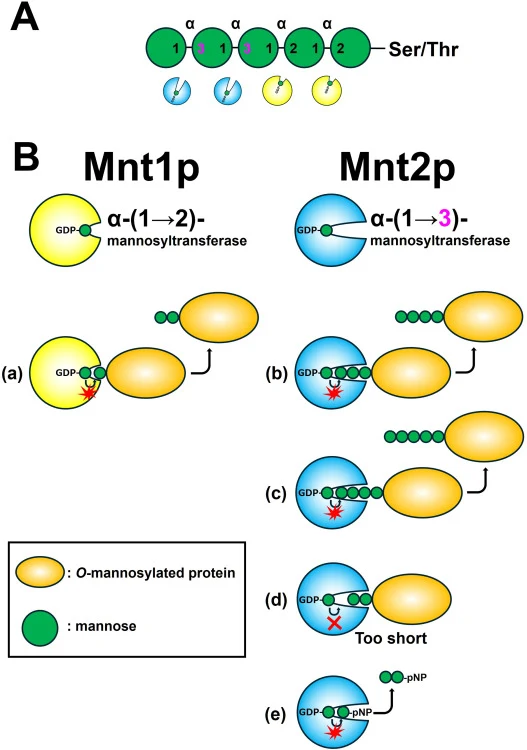
出芽酵母O-甘露糖型糖链的生物合成依赖多种甘露糖基转移酶的依次作用,但α-(1→3)-连接形成的分子机制长期不明。Mnt2p属于糖基转移酶家族71(GT71),催化O-糖链第四、第五个甘露糖残基以α-(1→3)-连接方式添加。本研究报道了Mnt2p 2.40 Å分辨率的晶体结构——这是GT71家族酶首个实验测定的结构,并通过体外酶学实验证实了其α-(1→3)-甘露糖基转移酶活性,结合分子对接与动力学模拟揭示了受体底物识别机制。
研究背景
真菌细胞壁不仅物理保护细胞、维持形态,还承担分子交换、信号感知和细胞间通讯功能。出芽酵母酿酒酵母(Saccharomyces cerevisiae)的细胞壁由β-(1→3)-和β-(1→6)-葡聚糖、少量几丁质以及众多可能携带N-糖链、O-糖链和糖脂锚的蛋白质通过复杂交联构建而成。甘露聚糖存在于酿酒酵母细胞壁中,其生物合成已被广泛研究。
O-甘露糖型糖链最早在酿酒酵母中被鉴定,常见于分泌蛋白和细胞壁蛋白的修饰。这些短寡甘露糖链通过α-异头构型的糖苷键连接到蛋白质丝氨酸或苏氨酸残基的羟基上。在内质网中,Dol-P-Man由膜蛋白复合物Dol-P-Man合酶(DPM)在内质网膜胞质面合成。还原端甘露糖残基的转移发生在内质网中。O-甘露糖基化由PMT家族催化,将Dol-P-Man中的甘露糖残基转移至翻译多肽的Ser和/或Thr残基上。第二及后续甘露糖残基在高尔基体中由KTR家族的α-(1→2)-甘露糖基转移酶(Kre2p、Ktr1p和Ktr3p)逐步延伸,形成α-(1→2)-连接的甘露二糖和甘露三糖。随后,MNN1家族……(原文此处截断)
研究方法
微生物与培养条件 本研究使用酿酒酵母W303-1A(MATa ade2-1 his3-11 leu2-3,-112 trp1-1 ura3-1 can1-100)。酵母细胞在30 °C下于YPAD培养基中培养,培养基含1% Bacto酵母提取物(Difco,Franklin Lakes,NJ,USA)、2% Bacto蛋白胨(Difco)和0.01%腺嘌呤半硫酸盐。质粒在大肠杆菌DH5α中扩增。蛋白质表达使用购自Merck Millipore(Darmstadt,Germany)的大肠杆菌菌株Rosetta-gami B(DE3)。细菌细胞在37 °C或16 °C下于Lysogeny broth(LB)中培养,LB含0.5% Bacto酵母提取物(Difco)、1% Bacto胰蛋白胨(Difco)和0.5%氯化钠。
【数据】菌株:酿酒酵母W303-1A、大肠杆菌DH5α、大肠杆菌Rosetta-gami B(DE3);培养基:YPAD(1%酵母提取物、2%蛋白胨、0.01%腺嘌呤半硫酸盐)、LB(0.5%酵母提取物、1%胰蛋白胨、0.5% NaCl);温度:30 °C(酵母)、37 °C或16 °C(细菌)
Mnt2表达载体的构建 MNT2表达质粒的构建如下。使用Dr. GenTLE (from Yeast) High Recovery(Takara,Shiga,Japan)按照供应商手册从在YPDA培养基中培养24 h的酿酒酵母W303-1A细胞中提取基因组DNA。以单链DNA为模板,使用引物pET15b-ScMNT2-IF-F [5'-ACAGCAGCGGCCATAGCAATTCGTTAGATTTGGTAGAACCA-3']和pET15b-ScMNT2-IF-R [5'-CACTCGAGTGCGGCCTCAAATATCTTTATTCCATATGTCGAC-3']通过PCR扩增MNT2基因。使用In-Fusion HD Cloning Kit(Takara)将MNT2片段克隆到pET15b-KAI的NdeI和NotI位点中,得到pET15b-MNT2,将其转化到Rosetta-gami B(DE3)细胞(Merck Millipore)中。使用ABI PRISM 3100 Genetic Analyzer(Applied Biosystems,Foster,CA,USA)进行序列分析以确认DNA序列。
【数据】培养时间:24 h(酵母基因组DNA提取);引物:pET15b-ScMNT2-IF-F和pET15b-ScMNT2-IF-R;载体:pET15b-KAI;限制性位点:NdeI、NotI;菌株:Rosetta-gami B(DE3)
Mnt2p在大肠杆菌中的表达及重组蛋白纯化 将编码Mnt2p可溶性催化结构域(残基26–C端)的基因克隆到pET15b-KAI载体中,带有N端6xHis标签,转化到大肠杆菌Rosetta-gami B(DE3)细胞中。用1 mM IPTG在16 °C下诱导蛋白表达65 h。使用BugBuster Protein Extraction Reagent(EMD Millipore)裂解细胞,上清液与His60 Ni Superflow Resin(TAKARA Bio)孵育1 h。用缓冲液A(50 mM HEPES-NaOH(pH 7.0)、30 mM KCl、100 mM NaCl、1 mM MnCl2、5%(w/v)甘油)洗涤树脂五次后,用含300 mM咪唑的缓冲液A洗脱蛋白。洗脱液对缓冲液A透析,后续实验前未切除N端6xHis标签;该标签及Mnt2p残基26–43在晶体结构电子密度图中不可见。重组Mnt2蛋白进一步使用Hiload 16/600 Superdex 75 pg凝胶过滤柱(GE Healthcare,Chicago,IL,USA)纯化,柱子用无甘油缓冲液A(50 mM HEPES-NaOH(pH 7.0)、30 mM KCl、100 mM NaCl、0.1 mM MnCl2)平衡。含Mnt2的组分使用Centriprep-YM10(Millipore)在无甘油缓冲液A中浓缩至约10 mg/mL,储存于深冷冰箱中。蛋白浓度使用Qubit Protein Assay Kit(Thermo Fisher Scientific,Waltham,MA,USA)测定,纯度通过SDS-PAGE评估。
【数据】IPTG浓度:1 mM;诱导温度:16 °C;诱导时间:65 h;缓冲液A:50 mM HEPES-NaOH(pH 7.0)、30 mM KCl、100 mM NaCl、1 mM MnCl2、5%甘油;洗脱:300 mM咪唑;凝胶过滤缓冲液:50 mM HEPES-NaOH(pH 7.0)、30 mM KCl、100 mM NaCl、0.1 mM MnCl2;浓缩至约10 mg/mL;洗涤次数:5次;孵育时间:1 h
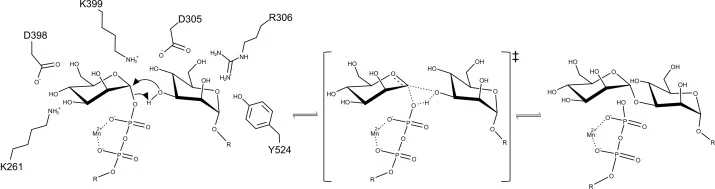
定点突变 使用QuikChange II Site-Directed Mutagenesis Kit(Agilent Technologies)按照制造商说明进行定点突变,以pET15b-MNT2质粒为模板。使用以下引物生成丙氨酸替换突变体:D305A [F: 5'-GCGCGGGTAATATCAGATGATC-3'; R: 5'-TGATATTACCCGCGCTTTAAAGAATAGAACTCCAG-3']、R306A [F: 5'-GCGGTAATATCAGATGATCTATTTG-3'; R: 5'-ATCTGATATTACCGCATCTTTAAAGAATAGAACTCC-3']、K399A [F: 5'-GCGGACTTTTTTTGGCTGGGCG-3'; R: 5'-CCAAAAAAAGTCCGCATCACCATGAAAATATTCTG-3']和Y524A [F: 5'-GCGTGCACATTATTCAAGGAAGG-3'; R: 5'-GAATAATGTGCACGCATTGAACAAAAAACACTCTC-3']。所有突变均通过DNA测序验证。突变体蛋白按照与野生型Mnt2p相同的方案表达和纯化。
【数据】突变位点:D305A、R306A、K399A、Y524A;模板质粒:pET15b-MNT2;验证方法:DNA测序
酶学实验 人工受体底物对硝基苯基α-D-吡喃甘露糖苷(α-Man-pNP)购自Tokyo Chemical Industry Co., Ltd.(Tokyo,Japan)。标准实验以α-Man-pNP(1.5 mM)为受体、GDP-Man(5 mM)为供体、纯化Mnt2p(0.1 μg/μL)在40 μL总反应体积中进行。混合物在30 °C孵育12 h,通过在99 °C加热5 min终止反应。对硝基苯酚衍生物通过UV300吸收检测,并使用Shodex Asahipak NH2P-50 4E氨基柱(250 × 4.6 mm;Showa Denko,Tokyo,Japan)按此前描述的方法通过HPLC分析。α-(1→2, 3)-甘露糖苷酶和α-(1→2)-甘露糖苷酶分别购自New England Biolabs(Ipswich,MA,USA)和ProZyme(Hayward,CA,USA),按制造商说明使用。为测定底物特异性,使用α-甘露二糖作为受体底物。α-(1→2)-甘露二糖、α-(1→3)-甘露二糖和α-(1→6)-甘露二糖购自Dextra Laboratories Ltd.(Reading,UK)。当以甘露二糖为受体底物时,反应产物用4-氨基苯甲酸乙酯(ABEE)标记后通过荧光检测器HPLC分析。α-(1→2)-甘露二糖或α-(1→6)-甘露二糖衍生物也按此前描述通过ABEE反应标记。
【数据】受体底物:α-Man-pNP(1.5 mM);供体:GDP-Man(5 mM);酶量:0.1 μg/μL;反应体积:40 μL;温度:30 °C;时间:12 h;终止条件:99 °C、5 min;检测:UV300、HPLC氨基柱(250 × 4.6 mm);甘露二糖底物:α-(1→2)、α-(1→3)、α-(1→6)
高分辨率ESI-MS分析 使用Orbitrap Exploris 120质谱仪(Thermo Fisher Scientific)测定分子量。仪器在负离子模式下运行,全MS扫描质量范围为m/z 100–1000。样品溶解在含0.1%甲酸的50%(v/v)甲醇中,以5.0 μL/min流速直接注入仪器。电喷雾电离(ESI)源参数设置如下:喷雾电压3.0 kV;离子传输管温度275 °C。数据采集和分析使用Xcalibur软件(Thermo Fisher Scientific)。
【数据】质谱仪:Orbitrap Exploris 120;离子模式:负离子;质量范围:m/z 100–1000;溶剂:50%甲醇+0.1%甲酸;流速:5.0 μL/min;喷雾电压:3.0 kV;离子传输管温度:275 °C
Mnt2的结晶、数据收集与结构解析 使用悬滴气相扩散法和Structure Screen及ProPlex试剂盒(Molecular Dimensions,Maumee,OH,USA)筛选结晶条件。每滴含0.8 μL Mnt2溶液和0.8 μL筛选溶液,对300 μL池液平衡。经过数轮优化后,Mnt2在含100 mM MOPS(pH 7.0)、8%(w/v)PEG 20000、1.0 mM MnCl2和5.0 mM GDP-Man的液滴中结晶。晶体在含100 mM MOPS(pH 7.0)、3% PEG 20000、1.0 mM MnCl2、5.0 mM GDP-Man和40%甘油(v/v)的溶液中平衡约3 h,冷冻后储存在液氮中。X射线数据收集在100 K、波长0.9000 Å条件下,使用SPring-8(Harima,Tokyo,Japan)的BL44XU光束线进行。衍射数据使用XDS积分和缩放。晶体结构通过分子置换法使用CCP4套件中的MOLREP解析。Mnt2p催化结构域(残基26至C端,排除含跨膜螺旋的N端区域)的三维结构使用AlphaFold2预测。在五个预测模型中,选择预测LDDT(pLDDT)评分最高的模型,使用CCP4i转换为聚丙氨酸模型,整个聚丙氨酸模型用作搜索模型。使用REFMAC5和Coot进行结构精修和数轮手动模型构建。在REFMAC5中对不对称单元中四个分子施加局部非晶体学对称(NCS)约束贯穿精修全程。Mn2+离子和GDP-Man的电子密度清晰可见,其原子模型使用Coot和REFMAC5构建和精修。Mn2+/GDP-Man Mnt2复合物最终模型的质量使用PROCHECK和MolProbity评估。原子坐标和结构因子已存入蛋白质数据库(http://www.rcsb.org/pdb),ID代码为45PL。
【数据】结晶条件:100 mM MOPS(pH 7.0)、8% PEG 20000、1.0 mM MnCl2、5.0 mM GDP-Man;液滴体积:0.8 μL + 0.8 μL;池液体积:300 μL;冷冻保护液:100 mM MOPS(pH 7.0)、3% PEG 20000、1.0 mM MnCl2、5.0 mM GDP-Man、40%甘油;平衡时间:约3 h;数据收集温度:100 K;波长:0.9000 Å;光束线:SPring-8 BL44XU;PDB ID:45PL
研究结果
Mnt2p在大肠杆菌中的表达与纯化 据我们所知,此前尚未使用任何表达系统(包括大肠杆菌和毕赤酵母)获得活性形式的重组Mnt2p。我们选择大肠杆菌表达系统而非酵母,以获得均一的、非糖基化的蛋白样品,因为酵母表达典型的异质性糖基修饰严重阻碍结晶。尽管糖基转移酶在大肠杆菌中可溶性表达的成功率普遍较低,我们成功优化了条件以获得优异的产量。为使用大肠杆菌表达系统获得重组Mnt2p蛋白,将编码缺少N端区域(氨基酸1–25,包括推定的信号序列和跨膜结构域)的可溶性Mnt2p的基因引入大肠杆菌表达载体,与N端6x组氨酸(6xHis)标签框内融合。通过在低温下培养细胞成功实现了蛋白表达。纯化的Mnt2p使用SDS-PAGE分析(图1A)。
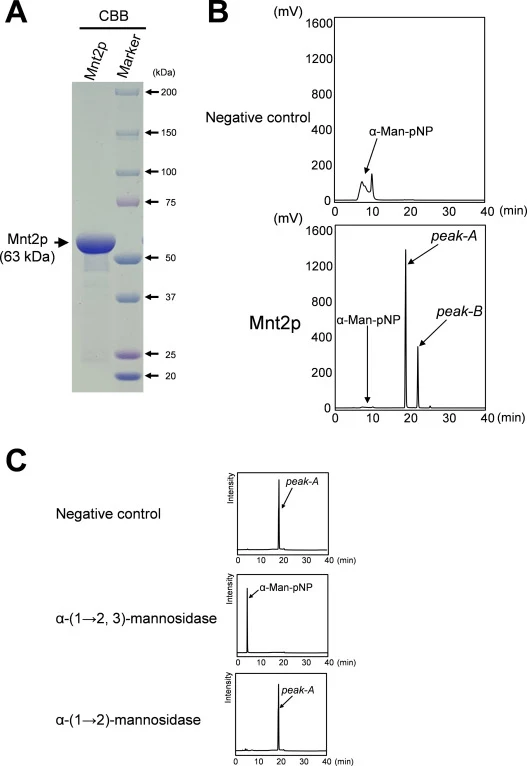
Mnt2p显示为约60 kDa的条带,与缺少N端区域的Mnt2p预期分子量63.5 kDa相似。
【数据】表达系统:大肠杆菌Rosetta-gami B(DE3);构建体:Mnt2p残基26–C端+ N端6xHis标签;培养温度:低温(16 °C);SDS-PAGE条带:约60 kDa;预期分子量:63.5 kDa
重组Mnt2p具有体外α-(1→3)-甘露糖基转移酶活性 Δmnt2菌株的遗传分析已证明,基于O-糖链结构的改变,Mnt2作为α-1,3-甘露糖基转移酶发挥作用。然而,据我们所知,尚无研究直接表明酶促反应产物含有α-1,3-甘露糖连接。因此,我们评估了Mnt2p是否具有α-1,3-甘露糖基转移酶活性。首先,我们在30 °C下使用化学合成的底物对硝基苯基α-D-吡喃甘露糖苷(α-Man-pNP,1.5 mM)作为糖受体、鸟苷二磷酸-α-D-甘露糖(GDP-Man,5 mM)作为糖供体、1 mM Mn2+作为辅因子,测定了甘露糖基转移酶活性(图1B)。反应混合物使用氨基柱HPLC分析,产物通过300 nm紫外吸收检测。不含Mnt2p孵育12 h的反应混合物在色谱图上未产生额外峰,尽管受体底物α-Man-pNP因氨基柱上已知的色谱现象而洗脱为两个不同的峰(约8和约10 min),ESI-MS分析确认其为对应α-Man-pNP的单一质量(图S4)。含Mnt2p的反应混合物显示这些底物峰降低,并在18.0和20.4 min处产生额外峰,称为峰-A和峰-B,表明酶促反应产物的形成(图1B)。为确定反应产物的化学结构,我们收集了这些组分并进行高分辨率ESI-MS分析。质谱清晰地产生了甲酸加合离子,恰好对应峰-A和峰-B依次添加甘露糖残基(图S4)。所得消化产物α-Man-pNP在约4 min处洗脱为单一尖锐峰。正如我们此前报道的,未纯化混合物中观察到的峰分裂和迁移延迟是由商业pNP-Man底物中存在的痕量杂质引起的。样品分级成功去除了这些杂质,从而解决了峰分裂并恢复了单一尖锐峰。我们还通过实验确认α-(1→2, 3)-特异性甘露糖苷酶不切割基础pNP连接的甘露糖残基,这与制造商(New England Biolabs)的规格一致。此外,峰-A被α-(1→2, 3)-特异性甘露糖苷酶消化,该酶去除通过α-(1→2)或α-(1→3)连接的末端甘露糖残基,但不被α-(1→2)-特异性甘露糖苷酶消化,后者仅去除α-(1→2)-连接的末端甘露糖残基(图1C)。这些直接质量测定和特异性甘露糖苷酶分析明确确认峰-A和峰-B分别为α-Man-(1→3)-α-Man-pNP和α-Man-(1→3)-α-Man-(1→3)-α-Man-pNP。
【数据】受体:α-Man-pNP(1.5 mM);供体:GDP-Man(5 mM);辅因子:Mn2+(1 mM);温度:30 °C;时间:12 h;产物峰:18.0 min(峰-A)和20.4 min(峰-B);底物峰:约8和约10 min;消化产物峰:约4 min;峰-A结构:α-Man-(1→3)-α-Man-pNP;峰-B结构:α-Man-(1→3)-α-Man-(1→3)-α-Man-pNP
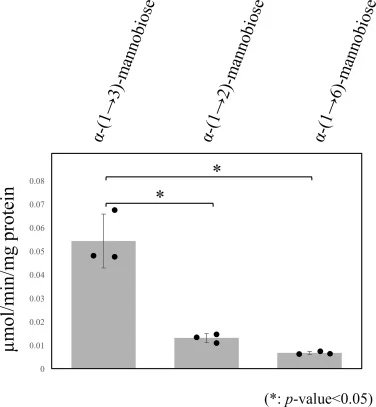
Mnt2p的底物特异性 为探索Mnt2p在甘露糖链延伸中的特性,我们测定了其对三种受体底物的活性:α-(1→2)-甘露二糖、α-(1→3)-甘露二糖和α-(1→6)-甘露二糖。当以α-(1→3)-甘露二糖为受体底物时,Mnt2p的甘露糖基转移酶活性最高(54.5 nmol/min/mg蛋白;图2)。Mnt2p对α-(1→2)-甘露二糖和α-(1→6)-甘露二糖的甘露糖基转移酶活性显著低于对α-(1→3)-甘露二糖的活性(分别为24.3%和12.7%)(p < 0.05,图2)。该底物特异性与Romero等人报道的一致,支持Mnt2p在转移酿酒酵母O-糖链第四和第五个α-(1→3)-连接甘露糖残基中的作用。
【数据】最高活性底物:α-(1→3)-甘露二糖(54.5 nmol/min/mg蛋白);α-(1→2)-甘露二糖相对活性:24.3%;α-(1→6)-甘露二糖相对活性:12.7%;显著性:p < 0.05
Mn2+/GDP-Man Mnt2p复合物的结构解析 适合X射线数据收集的Mnt2p蛋白晶体在4 °C下从含Mn2+作为金属离子和GDP-Man作为供体底物的溶液中一周后出现。晶体衍射X射线至2.40 Å分辨率,空间群为P212121,晶胞参数a = 130.9 Å、b = 131.2 Å、c = 169.6 Å。使用AlphaFold2预测结构生成的聚丙氨酸结构模型进行分子置换,成功放置了四个Mnt2p单体,Matthews系数为2.87,溶剂含量为57%。在结构精修过程中,在与Asp-277、Asp-279和Asn-459侧链接触的区域鉴定到归属于Mn2+的电子密度,附近也存在归属于GDP-Man的电子密度。最终,我们获得了由四个Mnt2p分子组成的精修结构,每个分子结合一个活性中心Mn2+离子和一个供体底物GDP-Man。最终R和R free值分别为0.206和0.233,键长和键角相对于理想值的均方根偏差(RMSD)分别为0.006 Å和1.33°(表S1)。
【数据】结晶温度:4 °C;结晶时间:一周;分辨率:2.40 Å;空间群:P212121;晶胞参数:a = 130.9 Å、b = 131.2 Å、c = 169.6 Å;Matthews系数:2.87;溶剂含量:57%;R值:0.206;R free:0.233;键长RMSD:0.006 Å;键角RMSD:1.33°;金属配位残基:Asp-277、Asp-279、Asn-459
Mnt2p的整体结构 Mnt2p的晶体结构在不对称单元中包含四个单体,在电子密度图中定义良好。除残基89–94外,蛋白质被连续建模。这些残基形成连接α-2和α-3螺旋的环。叠加共同Cα原子后,晶体不对称单元中蛋白质分子对之间的Cα原子位置RMSD为0.24–0.46 Å,除分子表面上残基60–67和429–437构成的两个温度因子略高的环区域外,所有单体分子具有相同的结构。Mnt2p单体包含一个N端结构域,具有糖基转移酶家族A(GT-A)常见的混合α/β结构,拥有DXD基序,以及一个Mnt2p样蛋白特有的C端结构域。这些结构域相互面对,在其界面处形成活性位点,如图3A所示。使用DSSP确定,Mnt2p的N端结构域由包含十六个α螺旋、四个310螺旋和十个β链的混合α/β折叠组成。核心结构由一个β折叠组成,八个β链按β-2、β-1、β-7、β-6、β-5、β-8、β-10和β-9的顺序排列,其中β-1和β-10为反平行。该β折叠被螺旋和一个反平行β折叠(β-3和β-4)包围。使用DALI将Mnt2p的N端结构域结构与蛋白质数据库中已知的实验测定蛋白质结构进行比较。Z评分高的蛋白质为来自嗜热毛壳菌(Chaetomium thermophilum)的UDP-葡萄糖:糖蛋白葡萄糖基转移酶(UGGT;GT24)催化结构域(Z-score = 12.4,189个对齐Cα原子的RMSD = 3.1 Å,PDB代码7ZLE,链A),双功能O-抗原聚合酶WbbM(Z-score = 11.7,204个对齐Cα原子的RMSD = 4.4 Å,PDB代码6U4B,链A),其中对齐残基主要位于C端GT8半乳吡喃糖基转移酶……(原文此处截断)
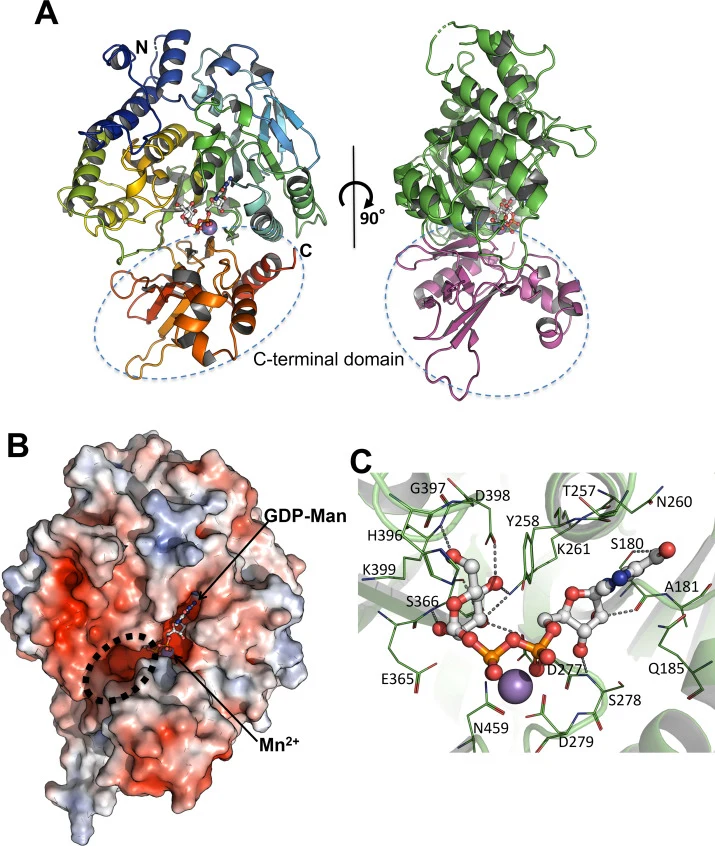
【数据】不对称单元单体数:4;未建模残基:89–94;Cα RMSD:0.24–0.46 Å;高温度因子环:残基60–67、429–437;N端结构域组成:16个α螺旋、4个310螺旋、10个β链;β链顺序:β-2、β-1、β-7、β-6、β-5、β-8、β-10、β-9;DALI最高评分:UGGT GT24(Z-score = 12.4,RMSD = 3.1 Å,PDB 7ZLE);第二:WbbM(Z-score = 11.7,RMSD = 4.4 Å,PDB 6U4B)
讨论与解读
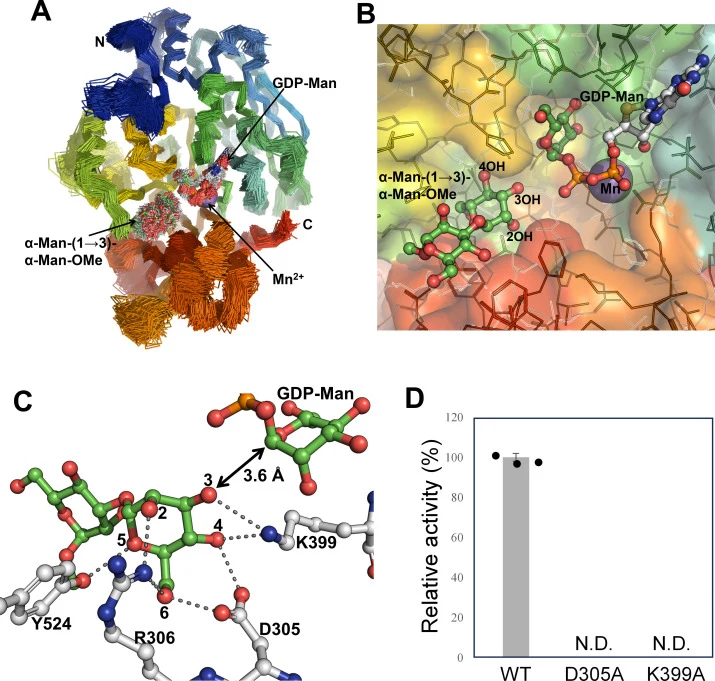
本研究获得了GT71家族糖基转移酶Mnt2p首个实验测定的三维结构。利用重组Mnt2p,研究在生化层面证实了其α-(1→3)-甘露糖基转移酶活性,并鉴定α-(1→3)-甘露二糖为其偏好受体底物。晶体结构结合分子对接和MD模拟确立了GT71特有的C端结构域在受体底物识别中的核心作用,为理解O-糖链生物合成中α-(1→3)-连接如何被选择性形成提供了结构基础。
Mnt2p的整体架构与其他已表征的真菌甘露糖基转移酶共享基本特征,同时展现出反映糖基转移酶多样性的独特特征。N端结构域采用GT-A折叠,与α-(1→2)-甘露糖基转移酶Kre2p/Mnt1p(GT15)中观察到的一致,并含有DXD基序(Asp-277-Ser-278-Asp-279)配位必需的Mn2+离子。这一保守的GT-A核心与模块化进化模型一致,其中疏水核心和磷酸结合盒为功能多样化提供结构支架。与该模型一致,Mnt2p的N端结构域与DALI最高评分的UGGT催化GT24结构域共享折叠,后者利用UDP-Glc作为供体底物;然而,识别GDP-鸟嘌呤碱基的残基……(原文此处截断)
编译者解读
该研究填补了GT71家族结构生物学的空白——Mnt2p的2.40 Å晶体结构是该家族首个实验结构。方法上,作者选择大肠杆菌表达去糖基化蛋白以克服结晶障碍,这一策略对膜结合糖基转移酶的可溶结构域研究具有借鉴意义。研究将结构解析与定点突变、酶学动力学和MD模拟整合,形成了从结构到功能的完整证据链。局限在于:C端结构域介导受体识别的精确残基互作网络尚未通过共结晶直接验证,且体外酶学使用人工底物,与体内O-糖链延伸的生理语境存在差距。未来若能将Mnt2p结构信息用于工程化改造,或可实现对酵母O-糖链长度的精准调控。
参考来源
期刊:Journal of Biological Chemistry, 2026
DOI: 10.1016/j.jbc.2026.113626
DOI: 10.1016/j.jbc.2026.113626