来源:Bidirectional regulation of saponin biosynthesis by EsWRKY36 and EsWRKY41 via divergent crosstalk with DNA methylation in Eleutherococcus senticosus(Industrial Crops and Products)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
刺五加(Eleutherococcus senticosus)是重要药用植物,其三萜皂苷具有免疫调节、抗氧化和神经保护活性。本研究从刺五加中鉴定出两个同源WRKY转录因子EsWRKY36和EsWRKY41,二者均定位于细胞核、结合皂苷合成关键基因EsFPS、EsSS和EsSE启动子的W-box基序,瞬时过表达分别使皂苷含量提高17.60%和19.19%。然而,这对同源因子在表观遗传调控上走向分化:EsWRKY36激活甲基转移酶基因EsCMT3b并升高整体5-甲基胞嘧啶水平,EsWRKY41则抑制EsCMT3b并降低甲基化水平;启动子甲基化严重削弱EsWRKY36的结合与激活能力,而EsWRKY41基本不受影响。该研究揭示了转录因子与DNA甲基化之间的双向调控回路,为药用植物次生代谢的代谢工程提供了候选靶点。
研究背景
刺五加在中国广泛用于传统药物和保健产品。其药理活性归因于多类代谢物,其中三萜皂苷因免疫调节、抗氧化和神经保护作用而尤为重要。植物化学与分子研究表明,该物种的主要皂苷以齐墩果烷型为主。皂苷生物合成需要协调的代谢序列:前体供应、2,3-氧化角鲨烯生成、三萜骨架环化、下游氧化及糖基化。法尼基焦磷酸合酶(FPS)、角鲨烯合酶(SS)和角鲨烯环氧化酶(SE)在该途径上游步骤中发挥关键作用。在刺五加中,EsFPS、EsSS和EsSE被认为是贡献于氧化角鲨烯衍生三萜形成的核心结构基因。此外,氧化角鲨烯环化酶(包括EsbAS1和EsCAS1)将代谢流导向三萜皂苷和甾醇前体。阐明这些结构基因的上游调控,是理解皂苷积累变异调控基础的关键。
在植物中,转录因子和DNA甲基化共同调控三萜皂苷的生物合成。DNA甲基化作为一种表观遗传修饰,改变染色质可及性并调节转录因子与DNA的相互作用。然而,转录因子与DNA甲基化是否形成相互调控回路,以及密切相关的同源因子是否在该回路中采取分化的调控角色,仍不清楚。
研究方法
2.1 候选EsWRKY基因鉴定与系统发育分析
以先前报道的刺五加EsWRKY家族数据作为候选基因筛选基础(Ma et al., 2026)。使用基于隐马尔可夫模型的保守结构域搜索进一步确认候选WRKY蛋白的保守结构域。使用MEGA X构建邻接法系统发育树,评估EsWRKY成员之间的系统发育关系。随后,从先前报道的转录组数据中检索皂苷生物合成基因和相关EsWRKY基因的表达谱用于相关性分析(Wang et al., 2024; NCBI SRA: SRX13417593–SRX13417601)。这些数据来源于发育成熟、生长旺盛的8–10周龄刺五加植株叶片,具有不同的DNA甲基化水平。数据在Illumina HiSeq平台上生成,使用DESeq2(版本1.22.2)进行差异表达分析,P值使用Benjamini-Hochberg方法校正多重检验。使用∣log₂FC∣ > 1和错误发现率(FDR)< 0.05的阈值鉴定差异表达的EsWRKY和皂苷相关基因(Li et al., 2024)。使用Metware Cloud平台进行表达相关性分析(Jiao et al., 2026),以鉴定与关键皂苷生物合成基因表现出强相关性的WRKY基因。在此基础上,我们检查了系统发育定义的同源成员与皂苷生物合成基因的表达相关性,旨在筛选具有正相关性的候选因子。候选基因随后根据其相关值的强度进行选择。
【数据】植株年龄:8–10周龄;测序平台:Illumina HiSeq;差异表达分析软件:DESeq2 v1.22.2;筛选阈值:∣log₂FC∣ > 1,FDR < 0.05;转录组数据编号:NCBI SRA: SRX13417593–SRX13417601
2.2 EsWRKY36和EsWRKY41启动子活性分析
扩增EsWRKY36和EsWRKY41的启动子片段并插入pCAMBIA1304-GUS载体(表S1)。转化前使用CpG甲基转移酶M.MpeI(碧云天生物技术公司,中国)对质粒进行体外甲基化。反应在20 µL混合物中进行,含1 µg DNA底物、1 × 反应缓冲液、0.16 mM S-腺苷甲硫氨酸和4 U M.MpeI。加入超纯水至终体积20 µL。混合物随后在37℃孵育过夜。进一步细节参见制造商说明书。使用农杆菌GV3101介导的本氏烟草叶片瞬时表达进行启动子活性分析。侵染后,叶片在红光、白光、蓝光或绿光下孵育三天(Jiao et al., 2026),随后进行GUS组织化学染色以评估光质和甲基化状态对启动子活性的影响(Luo et al., 2022)。GUS染色每个处理至少检查三片叶。
【数据】试剂:CpG甲基转移酶M.MpeI;DNA底物:1 µg;反应缓冲液:1 ×;S-腺苷甲硫氨酸:0.16 mM;酶量:4 U M.MpeI;反应体积:20 µL;孵育温度:37℃;孵育时间:过夜;农杆菌菌株:GV3101;光照处理时间:3天;GUS染色叶片数:每个处理至少3片
2.3 亚细胞定位
将EsWRKY36和EsWRKY41的全长编码序列克隆到pHG衍生载体中(表S1)。将所得构建体导入洋葱表皮细胞,观察荧光信号进行亚细胞定位,方法参照Wang et al. (2023)。亚细胞定位分析每个构建体至少检查10个转化细胞。
【数据】载体:pHG衍生载体;宿主细胞:洋葱表皮细胞;每个构建体检查细胞数:至少10个
2.4 酵母自激活分析
将pGBKT7-EsWRKY36、pGBKT7-EsWRKY41和空pGBKT7载体分别转化到酿酒酵母菌株AH109中(表S1)。使用SD/-Trp培养基筛选阳性转化子。随后将稀释的培养物点样到SD/-Trp和SD/-Trp/-His/-Ade培养基平板上进行筛选。利用选择性培养基上的生长评估重组蛋白的自主转录活性(Jiao et al., 2026; Zhao et al., 2025)。进行自主激活分析以确认后续双荧光素酶报告(DLR)分析中观察到的启动子活性变化归因于EsWRKY36/41与靶启动子之间的特异性调控相互作用,而非非特异性转录激活。酵母自主激活分析每个构建体至少测试三个独立转化子。
【数据】酵母菌株:AH109;载体:pGBKT7;筛选培养基:SD/-Trp、SD/-Trp/-His/-Ade;每个构建体测试转化子数:至少3个
2.5 电泳迁移率变动分析(EMSA)
将EsWRKY36和EsWRKY41的编码区克隆到pGEX-4T-3中(表S1),并在大肠杆菌BL21(DE3)中表达以进行重组蛋白表达和纯化(Jiao et al., 2026)。分析皂苷生物合成酶基因和DNA甲基化相关酶基因的启动子序列,以鉴定含有W-box基序(TTGACC/T)的候选靶基因。扩增来自EsFPS、EsSS、EsSE、EsCMT3b和EsROS1a的含W-box位点的启动子片段并用作探针(Zhao et al., 2024b)(表S1)。使用EMSA探针生物素标记试剂盒(碧云天,中国)对探针进行生物素化,并按上述方法进行甲基化处理。纯化的蛋白与标记探针孵育,DNA-蛋白相互作用分析如前所述(Cui et al., 2025; Jiao et al., 2026; Zhang et al., 2024; Zhao et al., 2025)。EMSA使用至少两份独立制备的重组蛋白进行。
【数据】表达载体:pGEX-4T-3;表达菌株:大肠杆菌BL21(DE3);W-box基序:TTGACC/T;靶基因:EsFPS、EsSS、EsSE、EsCMT3b、EsROS1a;探针标记试剂盒:EMSA探针生物素标记试剂盒(碧云天);独立蛋白制备批次:至少2份
2.6 DLR分析
将去除终止密码子的EsWRKY36和EsWRKY41编码序列插入pGreenII 62-SK作为效应构建体。将EsFPS、EsSS、EsSE、EsCMT3b和EsROS1a的启动子序列分别克隆到pGreenII 0800-LUC报告构建体中(Jiao et al., 2026; Zhao et al., 2024b)(表S1)。农杆菌介导的本氏烟草叶片共侵染如前所述(Dong et al., 2024),并测定DLR活性(Dong et al., 2024; Li et al., 2024)。DLR分析使用三个生物学重复。
【数据】效应载体:pGreenII 62-SK;报告载体:pGreenII 0800-LUC;靶启动子:EsFPS、EsSS、EsSE、EsCMT3b、EsROS1a;生物学重复:3个
2.7 瞬时过表达及下游分析
使用无缝克隆将EsWRKY36和EsWRKY41的开放阅读框分别克隆到pCAMBIA1300中(表S1),生成pCAMBIA1300-EsWRKY36和pCAMBIA1300-EsWRKY41载体。将重组质粒导入农杆菌菌株GV3101并在刺五加叶片中瞬时表达,方法如前所述(Jiao et al., 2026; Wang et al., 2024)。侵染叶片在23℃维持三天。收集瞬时表达EsWRKY36和EsWRKY41的叶片样品。使用Illumina Stranded mRNA Prep Ligation试剂盒(Illumina,美国)按照Conesa et al. (2016)描述的流程制备RNA-seq文库,随后在DNBSEQ平台上测序。使用HISAT2将清洁读段比对到刺五加参考基因组(Yang et al., 2021)。使用DESeq2(版本1.42.0)鉴定差异表达基因(DEGs),P值使用Benjamini-Hochberg方法校正多重比较。∣log₂FC∣ > 1且FDR < 0.05的基因被认为是显著差异表达(Li et al., 2024)。使用clusterProfiler进行基因本体富集分析,以FDR < 0.05为显著性阈值(Chicco and Agapito, 2022; Xu et al., 2024)。靶基因表达值使用Z-score标准化并可视化为热图(Li et al., 2024)。EsFPS、EsSS、EsSE、EsCMT3b和EsROS1a的表达水平进一步使用qRT-PCR验证(Jiao et al., 2026; Li et al., 2024; Wang et al., 2024; Zhao et al., 2025)(表S1)。以GAPDH为参考基因,使用2−ΔΔCt方法计算相对表达水平,每组至少三个生物学重复。数据以mean ± SD表示,使用双尾非配对Student's t检验评估统计学显著性,P < 0.05认为具有统计学意义。瞬时过表达分析每个处理组至少包含三个生物学重复。
【数据】载体:pCAMBIA1300;农杆菌菌株:GV3101;侵染后温度:23℃;侵染后时间:3天;RNA-seq建库试剂盒:Illumina Stranded mRNA Prep Ligation;测序平台:DNBSEQ;比对工具:HISAT2;差异表达软件:DESeq2 v1.42.0;筛选阈值:∣log₂FC∣ > 1,FDR < 0.05;富集分析工具:clusterProfiler,FDR < 0.05;参考基因:GAPDH;表达计算方法:2−ΔΔCt;生物学重复:至少3个;显著性检验:双尾非配对Student's t检验,P < 0.05
2.8 皂苷含量和整体DNA甲基化测定
总皂苷水平使用高效液相[原文节选至此结束]
【数据】原文未详述
研究结果
3.1 EsWRKY36和EsWRKY41作为皂苷生物合成的候选调控因子
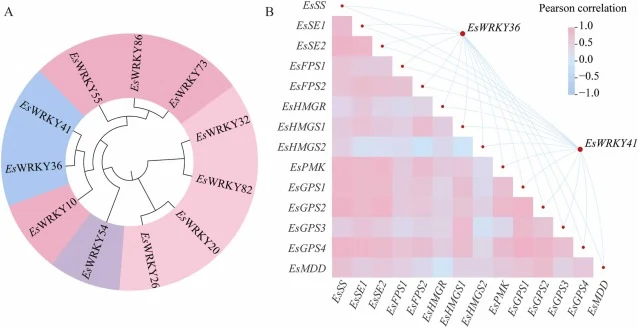
初步筛选鉴定了11个具有保守结构域的EsWRKY蛋白。系统发育分析将EsWRKY36和EsWRKY41置于同一分支(图1A),表明二者亲缘关系密切,为研究这对同源因子之间潜在的功能分化提供了基础。为鉴定与皂苷生物合成功能相关的同源对,使用来自皂苷含量不同的刺五加叶片转录组数据进行了相关性分析。在所有检测的EsWRKY基因中,EsWRKY36和EsWRKY41与关键皂苷生物合成基因EsFPS、EsSS和EsSE的表达表现出最强且最显著的正相关(图1B;所有候选基因的完整相关性数据见表S2和图S1)。相比之下,同一系统发育分支的其他成员与途径基因的相关性较弱或不显著。因此,基于它们与关键途径基因的强共表达模式,选择EsWRKY36和EsWRKY41作为候选调控因子进行功能表征。
【数据】鉴定EsWRKY蛋白数:11个;候选基因:EsWRKY36、EsWRKY41;关键靶基因:EsFPS、EsSS、EsSE;相关性:最强且最显著正相关
3.2 EsWRKY36和EsWRKY41的启动子活性受光质和DNA甲基化调控
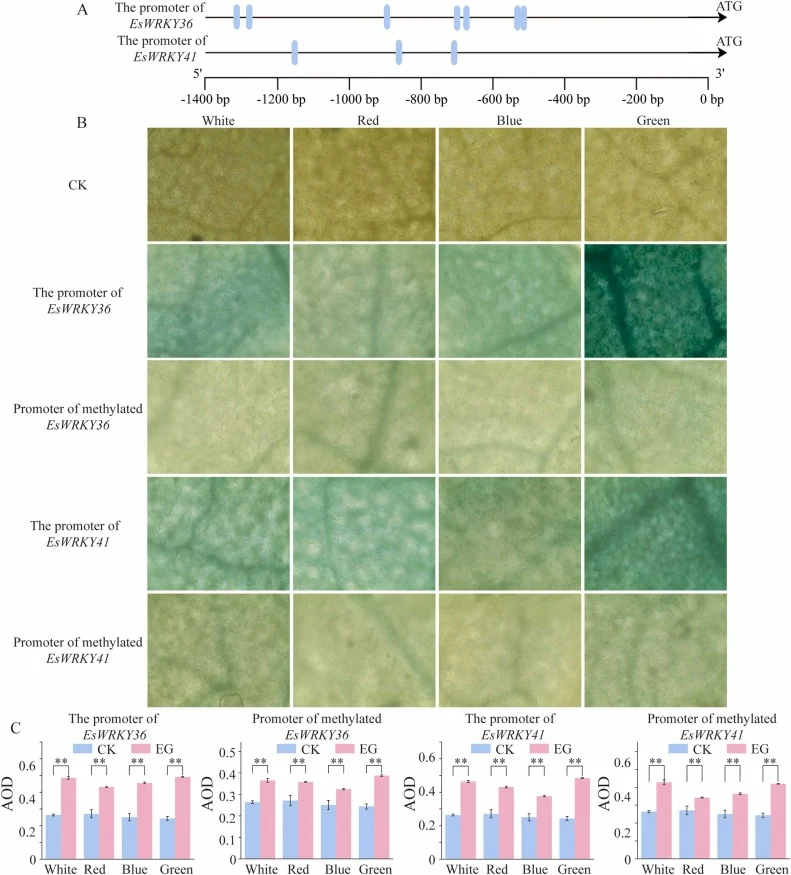
为阐明控制EsWRKY36和EsWRKY41表达的调控机制,我们首先分析了其启动子区域内的顺式作用元件。随后评估了启动子活性对光质和DNA甲基化的响应性,以鉴定潜在的上游调控线索。分析揭示EsWRKY36和EsWRKY41的启动子区域含有多个与光照、激素和胁迫响应相关的元件,其中光响应元件尤为丰富(图2A)。这些发现表明EsWRKY36和EsWRKY41的表达可能受光信号以及其他环境和内源信号的共同调控。GUS组织化学染色显示,除野生型阴性对照外,携带EsWRKY36或EsWRKY41启动子的瞬时转化本氏烟草叶片表现出明显的蓝色染色,表明两个启动子均具有转录活性并能驱动报告基因表达(图2B)。进一步的定量分析揭示启动子活性受光质显著影响。绿光显著增强EsWRKY36和EsWRKY41的启动子活性(P < 0.01),而体外甲基化显著降低其启动子活性(图2C)。这些结果表明EsWRKY36和EsWRKY41对光质和DNA甲基化均有响应,提示这些因子可能在皂苷代谢调控中整合环境和表观遗传信号。
【数据】光响应元件:丰富;绿光效应:显著增强启动子活性,P < 0.01;甲基化效应:显著降低启动子活性;GUS染色:阳性蓝色染色
3.3 EsWRKY36和EsWRKY41定位于细胞核
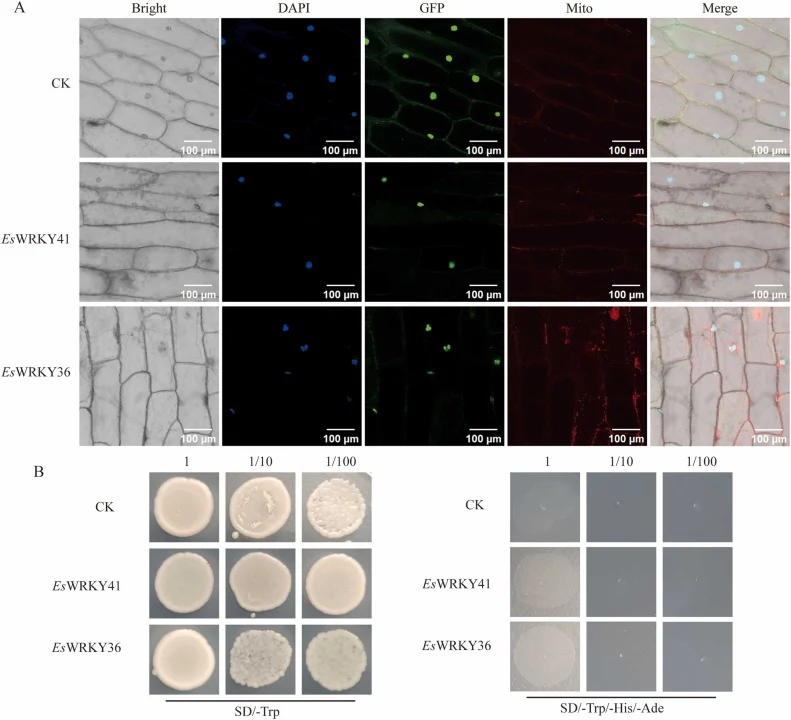
亚细胞定位分析显示,EsWRKY36/41-绿色荧光蛋白融合蛋白的荧光信号主要定位于细胞核,而对照绿色荧光蛋白信号在细胞中分布更广泛(图3A)。这一发现与WRKY转录因子作为核转录调控因子的已知功能特征一致,支持EsWRKY36和EsWRKY41通过调控核靶基因参与皂苷生物合成的潜在作用。
【数据】EsWRKY36/41-GFP定位:细胞核;对照GFP定位:全细胞广泛分布
3.4 EsWRKY36和EsWRKY41在酵母中未表现出显著自激活
转录自激活分析表明,转化空载体或pGBKT7-EsWRKY36/41的酵母细胞在SD/-Trp培养基上正常生长,但在更严格的SD/-Trp/-His/-Ade选择性培养基上未能生长(图3B)。这些结果表明EsWRKY36和EsWRKY41均未表现出可检测的转录自激活。因此,后续DLR分析中观察到的启动子活性变化更可能归因于与特定启动子序列和/或植物细胞中调控组分的相互作用。
【数据】培养基:SD/-Trp(正常生长)、SD/-Trp/-His/-Ade(未生长);自激活活性:未检测到
3.5 EsWRKY36和EsWRKY41直接结合并差异调控靶基因启动子
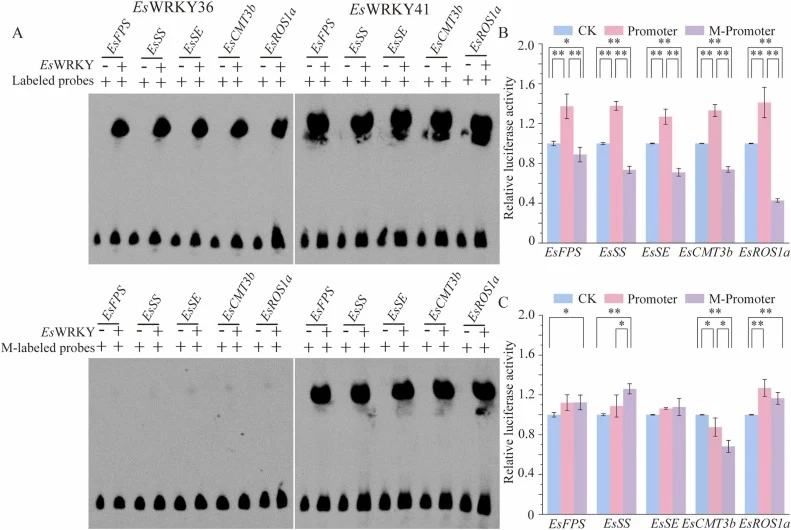
为确定EsWRKY36和EsWRKY41是否直接识别靶启动子序列,进行了EMSA。结果显示EsWRKY36和EsWRKY41均与来自EsFPS、EsSS、EsSE、EsROS1a和EsCMT3b的启动子探针形成明显的DNA-蛋白复合物,表明两个蛋白在体外均直接结合这些启动子片段(图4A)。为进一步评估DNA甲基化对DNA结合能力的影响,对启动子探针进行了体外甲基化。甲基化显著降低了EsWRKY36与所有靶启动子探针的结合,表现为迁移条带强度的明显降低。相比之下,EsWRKY41与甲基化探针的结合能力受影响较小(图4A)。这些发现表明,尽管EsWRKY36和EsWRKY41高度同源,但它们在DNA甲基化敏感性方面存在显著差异。为进一步确认EsWRKY36和EsWRKY41对靶启动子的转录调控效应,进行了DLR分析。在非甲基化条件下,EsWRKY36和EsWRKY41均显著提高EsFPS、EsSS和EsSE启动子的活性(P < 0.01),表明这些因子正向调控参与皂苷生物合成的关键酶基因的表达(图4B, C)。对于DNA甲基化相关基因,EsWRKY36显著增强EsCMT3b和EsROS1a的启动子活性,而EsWRKY41增强EsROS1a启动子活性但显著抑制EsCMT3b启动子活性(P < 0.01)(图4B, C)。这些结果表明EsWRKY36和EsWRKY41对皂苷生物合成基因发挥相似的正面调控效应,但对DNA甲基化相关基因表现出不同的调控模式。报告载体中启动子序列甲基化后,EsWRKY36对多个靶启动子的调控效应发生显著改变。具体而言,甲基化显著减弱EsWRKY36介导的转录激活,并伴随对某些靶启动子的抑制(P < 0.01)(图4B)。相比之下,EsWRKY41对甲基化启动子的调控效应基本不变,仅在少数靶启动子中观察到显著变化(图4C)。这一观察与EMSA中观察到的EsWRKY36更高的甲基化敏感性一致,表明DNA甲基化选择性影响EsWRKY36介导的启动子调控,而EsWRKY41对启动子甲基化相对耐受。
【数据】EMSA靶启动子:EsFPS、EsSS、EsSE、EsROS1a、EsCMT3b;EsWRKY36甲基化后结合:显著降低;EsWRKY41甲基化后结合:受影响较小;DLR非甲基化条件:EsWRKY36/41均显著激活EsFPS、EsSS、EsSE启动子,P < 0.01;EsWRKY36对EsCMT3b和EsROS1a:显著增强;EsWRKY41对EsCMT3b:显著抑制,P < 0.01;EsWRKY41对EsROS1a:增强;甲基化后EsWRKY36调控:显著减弱并抑制部分靶启动子,P < 0.01;甲基化后EsWRKY41调控:基本不变
3.6 EsWRKY36和EsWRKY41过表达增加皂苷含量但引起DNA甲基化的相反变化
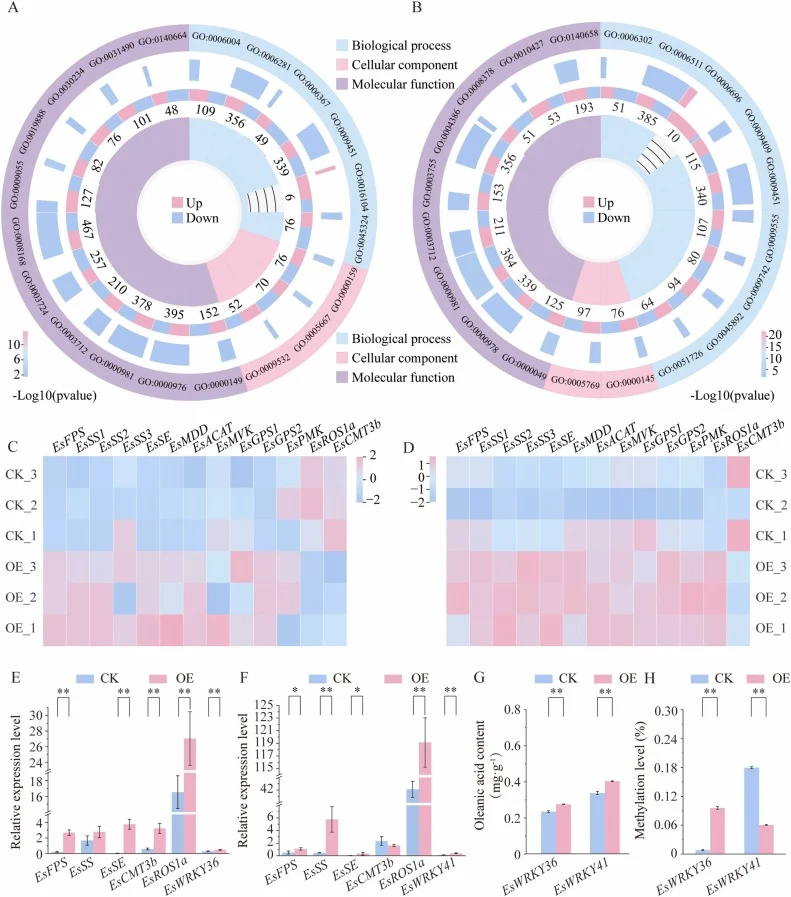
为阐明EsWRKY36和EsWRKY41在植物体内的生物学功能,将这些基因分别在刺五加叶片中过表达,随后进行转录组和代谢分析。RNA-seq分析显示,EsWRKY36和EsWRKY41过表达分别产生8469和8505个DEGs,表明两个转录因子均诱导了广泛的转录重编程。基因本体富集分析显示DEGs涉及多种代谢和调控过程,其中与萜类骨架生物合成相关的功能类别受到显著影响(图5A, B)。这一发现与皂苷作为萜类衍生次生代谢物的生物合成来源一致。对关键皂苷生物合成基因和DNA甲基化相关基因的进一步分析显示,EsWRKY36或EsWRKY41过表达均显著上调参与皂苷生物合成的关键基因,包括EsFPS、EsSS和EsSE(图5C, D)。定量逆转录PCR分析进一步验证了RNA-seq结果,确认了[原文节选至此结束]
【数据】EsWRKY36过表达DEGs:8469个;EsWRKY41过表达DEGs:8505个;富集通路:萜类骨架生物合成显著受影响;上调基因:EsFPS、EsSS、EsSE
讨论与解读
本研究从刺五加中鉴定出两个同源WRKY转录因子EsWRKY36和EsWRKY41,二者均为皂苷生物合成的正调控因子。两个蛋白主要定位于细胞核,直接结合EsFPS、EsSS和EsSE启动子中含W-box的区域,在瞬时分析中激活这些启动子,提高相应基因的内源表达,最终增加皂苷含量。这些发现与WRKY转录因子的经典特性一致——WRKY因子通常通过保守的WRKY结构域识别靶DNA。II组WRKY蛋白通常含有一个WRKY结构域和一个C2H2型锌指基序。WRKY结构域(包括WRKYGQK基序)通常比该结构域之外的区域更保守。EsWRKY36和EsWRKY41结合并激活关键皂苷生物合成基因启动子的能力,与WRKY因子在次生代谢转录调控中的既定角色一致。这些发现进一步扩展了刺五加皂苷生物合成的调控框架。先前研究已证明转录因子EsbZIP、EsERF、EsMYB和EsNAC参与该过程。通过将EsWRKY36和EsWRKY41纳入该网络,本研究[原文节选至此结束]
编译者解读
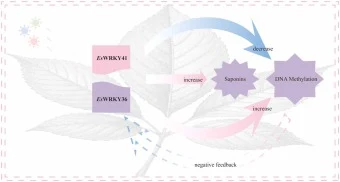
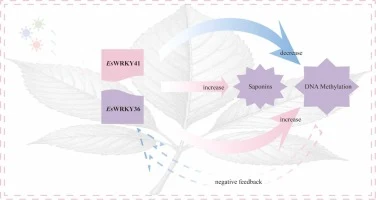
该研究的核心价值在于揭示了一对高度同源转录因子在次生代谢调控中的功能分化——EsWRKY36作为甲基化敏感模块,其活性可能受自我限制反馈回路的约束;EsWRKY41则作为甲基化耐受模块,可维持稳定的途径输出。这种"双向整合"模型为理解药用植物中转录调控与表观遗传修饰的互作提供了新范式。从合成生物学应用角度看,EsWRKY41因其对启动子甲基化不敏感的特性,更适合作为代谢工程中稳定增强皂苷产量的候选靶点;而EsWRKY36则可用于需要动态调控的场景。不过,该研究目前主要基于瞬时过表达和体外实验,稳定的遗传转化验证及田间条件下的皂苷产量评估仍是后续工作重点。
参考来源
期刊:Industrial Crops and Products, 2026
DOI: 10.1016/j.indcrop.2026.124542
DOI: 10.1016/j.indcrop.2026.124542