来源:Development and activity evaluation of a highly efficient CRISPR-Cas genome editing system in larch(Horticultural Plant Journal)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
落叶松是我国重要的造林与用材树种,但其生命周期长、遗传背景复杂、稳定转化困难,基因组编辑研究长期滞后。本研究在日本落叶松中建立了一套基于内源启动子的高效CRISPR/Cas基因组编辑系统。研究者优化了原生质体制备与转化参数,获得超过90%活性细胞和40%的瞬时转化效率;通过基因组与转录组联合分析筛选出41个候选启动子,鉴定出高活性内源启动子LarPE004,并证明LarPE004驱动的STU-Cas9系统在单基因和多基因编辑中均优于CaMV 35S和ZmUbi1驱动的系统,为落叶松功能基因组学与分子育种提供了高效工具。
研究背景
日本落叶松[Larix kaempferi (Lamb.) Carr.]是我国重要的造林和木材生产树种,以优异的材性、较强的抗病性和广泛的用途著称。然而,落叶松生命周期长、遗传背景复杂、无性繁殖困难,传统育种方法在培育优良品种方面面临巨大挑战。早期落叶松研究集中在遗传变异、种源选择、木材性状、种子园建立和光合特性等方面。随着日本落叶松基因组完成测序,系统分析落叶松基因功能、推进遗传转化技术、综合应用现代育种技术以实现优良品种的快速选育成为主要目标。
目前,CRISPR-Cas9系统已广泛应用于多种植物的基因组编辑,包括拟南芥、烟草、水稻、玉米等。但在许多非模式林草植物中,由于基础研究相对滞后、遗传操作困难(如基因转化),基因组编辑的应用仍然受限。植物的稳定遗传转化因再生耗时且困难而面临重大挑战,对落叶松等非模式物种尤为如此。原生质体瞬时表达系统因流程简单快速,已被广泛用于植物基因组编辑。本研究旨在建立落叶松高效的CRISPR/Cas基因组编辑系统,利用内源启动子驱动,为落叶松功能基因组学研究和分子育种奠定基础。
研究方法
2.1 植物材料与生长条件
日本落叶松种子(Larix kaempferi)采自中国东北辽宁省大孤家种子园(42°22′N,124°51′E)的树木。水稻(Oryza sativa L. japonica)品种日本晴和欧美杨(Populus deltoids × P. euramericana)品种南林895分别用作野生型(WT)对照和转化宿主。水稻植株在长日照条件下生长(16 h光照、30 °C,8 h黑暗、24 °C,光照强度3000 lx,相对湿度70%)。南林895在温室中生长,光暗周期为16 h光照和8 h黑暗,温度23 °C(光照强度3000 lx,相对湿度70%)。
【数据】树种:日本落叶松;种子来源:辽宁大孤家种子园(42°22′N,124°51′E);水稻品种:日本晴;杨树品种:南林895;水稻光照:16h光/30°C,8h暗/24°C;光照强度:3000 lx;相对湿度:70%;杨树温度:23°C
2.2 落叶松和水稻原生质体分离与转化
水稻原生质体瞬时转化方案参照已发表方法(Hiei et al., 1994; Tang et al., 2017; Ren et al., 2021; Zhong et al., 2023)。消毒后的水稻种子在固体1/2浓度Murashige and Skoog(1/2 MS)培养基上、28 °C黑暗条件下萌发10天。健康叶片切成0.5–1.0 mm的细条,浸入酶解液中,真空渗透30 min。消毒后的落叶松种子纵向切开,在MS培养基上、26 °C黑暗条件下培养14天以诱导愈伤组织形成。收集60–100粒种子的愈伤组织(约1 g),转移至含1.5%纤维素酶R-10和0.4%离析酶R-10的酶解液中,水解6 h以分离原生质体。酶解液经筛网过滤后转移至空离心管中,用W5缓冲液(0.43 g·L⁻¹ MES,0.37 g·L⁻¹ KCl,8.99 g·L⁻¹ NaCl,18.38 g·L⁻¹ CaCl₂·H₂O,0.90 g·L⁻¹ D-葡萄糖,pH 5.8)洗涤,60×g离心5 min。吸去上清液,重复上述步骤。随后加入5 mL W5缓冲液进行细胞计数,在5 mL W5缓冲液中获得约1×10⁶个细胞。最终原生质体密度调整为1×10⁶个原生质体·mL⁻¹。原生质体转化过程中使用40% PEG4000,30 μg质粒DNA转化200 μL原生质体(每反应200 μL原生质体,细胞数为2×10⁵),体积为30 μL。一个反应完成后,均匀铺在12孔板上,密封,25 °C黑暗孵育48 h,用荧光显微镜检查。
【数据】水稻萌发:1/2 MS培养基、28°C、黑暗、10天;叶片切片:0.5–1.0 mm;真空渗透:30 min;落叶松愈伤诱导:MS培养基、26°C、黑暗、14天;愈伤组织量:约1 g(60–100粒种子);酶解液:1.5%纤维素酶R-10 + 0.4%离析酶R-10;水解时间:6 h;W5缓冲液配方:0.43 g·L⁻¹ MES、0.37 g·L⁻¹ KCl、8.99 g·L⁻¹ NaCl、18.38 g·L⁻¹ CaCl₂·H₂O、0.90 g·L⁻¹ D-葡萄糖、pH 5.8;离心力:60×g;离心时间:5 min;原生质体密度:1×10⁶个·mL⁻¹;PEG4000浓度:40%;质粒DNA量:30 μg;原生质体体积:200 μL;细胞数:2×10⁵/反应;孵育条件:25°C、黑暗、48 h
2.3 落叶松内源启动子的预测与挖掘
研究者此前在日本落叶松中进行了基因组和转录组测序(未发表数据)。转录组和基因组测序分别使用14天诱导的落叶松种子愈伤组织6 g和42天龄落叶松幼苗针叶6 g(n = 3)。测序由北京百迈客生物科技有限公司完成。使用Wtdbg2软件(v2.4)组装落叶松基因组深度测序结果,获得基因组序列信息(Ruan and Li, 2020)。基于RNA测序(RNA-seq)结果,使用Trinity(v2.6.6)进行转录组分析,获得转录本及其表达量(Grabherr et al., 2011)。将组装后的转录本与SwissProt数据库比对,获得相应的蛋白编码基因信息。基于转录本所在染色体、转录本完整性、针叶和愈伤组织中的基因表达水平、基因与蛋白质起始和终止位点的比对以及蛋白质功能信息,共获得819个转录本。筛选出在愈伤组织和针叶组织中基因表达量高的转录本(表S1)。提取这些转录本转录起始位点上游2000 bp序列作为候选内源启动子,并使用PlantCARE预测这些候选启动子的顺式作用元件(Rombauts et al., 1999)(https://bioinformatics.psb.ugent.be/webtools/plantcare/html/)。
【数据】愈伤组织量:6 g(14天诱导种子);针叶量:6 g(42天龄幼苗);生物学重复:n = 3;组装软件:Wtdbg2 v2.4;转录组软件:Trinity v2.6.6;获得转录本数:819个;启动子序列长度:2000 bp;顺式元件预测工具:PlantCARE
2.4 载体构建
使用特异性引物(表S2)扩增约2000 bp的候选启动子片段,引物带有与pGEL100骨架连接的同源臂,pGEL100是一种由ZmUbi启动子驱动GFP::GUS::Hyg盒的报道载体。PCR产物通过Gibson Assembly克隆到经AvrII和PstI酶切的pGEL100骨架中。序列正确的载体根据启动子编号命名为pLarPE001、pLarPE002、pLarPE003等。为分析启动子调控元件并优化启动子活性,克隆了LarPE004启动子的两个5′截短片段,命名为LarPE004-1和LarPE004-2,分别缩短了510 bp和1160 bp。目标片段PCR扩增引物见表S2。CaMV35S启动子和ZmUbi1启动子作为阳性对照,以相同方式克隆到pGEL100骨架中。基于转录单元类型、启动子元件和Cas9蛋白,设计了五类CRISPR/Cas9系统载体用于落叶松基因组编辑(表S3–S6)。LarPE004::TTU-Cas9载体基于CRISPR-Cas9双转录单元(TTU-Cas9,pGEL026)构建(Tang et al., 2016)。CaMV 35S::STU-Cas9(pGEL1032)、ZmUbi1::STU-Cas9(pGEL031)(Tang et al., 2019)、LarPE004::STU-Cas9(pGEL1031)和LarPE004::STU-SpRY(pGEL126)载体(Ren et al., 2021)基于CRISPR-Cas9单转录单元(STU-Cas9,pGEL031)构建。对不同单基因编辑sgRNA进行引物退火,ccdB元件用BsaI进一步酶切,靶向特定基因位点的sgRNA序列用T4 DNA连接酶克隆到骨架中。采用Golden Gate组装策略构建多基因编辑载体。使用特异性引物扩增不同sgRNA片段。纯化产物后,采用Golden Gate策略将其与相应骨架组装,完成多基因编辑载体的构建。不同CRISPR/Cas9载体使用的所有特异性引物见表S7。
【数据】启动子片段长度:约2000 bp;载体骨架:pGEL100;酶切位点:AvrII和PstI;克隆方法:Gibson Assembly;截短片段:LarPE004-1(缩短510 bp)、LarPE004-2(缩短1160 bp);TTU-Cas9载体:pGEL026;STU-Cas9载体:pGEL031;CaMV 35S::STU-Cas9:pGEL1032;LarPE004::STU-Cas9:pGEL1031;LarPE004::STU-SpRY:pGEL126;sgRNA克隆:BsaI酶切 + T4 DNA连接酶;多基因组装:Golden Gate策略
2.5 水稻稳定转化与转基因植株检测
pLarPE004、pLarPE004-1和pLarPE004-2构建体通过冻融法导入农杆菌EHA105。农杆菌介导的水稻转化参照已发表方案(Hiei et al., 1994)。pLarPE004构建体转化到农杆菌GV3101中。随后,农杆菌介导的杨树转化参照此前描述的方法(Jia et al., 2010)。使用CTAB法提取水稻或杨树叶片的总基因组DNA。设计特异性引物鉴定转基因阳性植株,引物列于表S8。
【数据】农杆菌菌株:EHA105(水稻)、GV3101(杨树);转化方法:冻融法(农杆菌)、农杆菌介导转化;DNA提取方法:CTAB法
2.6 实时定量PCR(qRT-PCR)
使用EasyPure植物RNA试剂盒(南京诺唯赞生物科技股份有限公司)提取转基因水稻植株的总RNA。使用HiScript III RT SuperMix for qPCR试剂盒(南京诺唯赞生物科技股份有限公司)反转录cDNA,进行两步法实时定量PCR。qPCR使用ChamQ Universal SYBR qPCR Master Mix(南京诺唯赞生物科技股份有限公司)。所有样品以参考基因OsActin归一化,最终相对表达量使用公式F = 2−ΔΔCt计算。qPCR特异性引物列于表S8。
【数据】RNA提取试剂盒:EasyPure植物RNA试剂盒(诺唯赞);反转录试剂盒:HiScript III RT SuperMix for qPCR(诺唯赞);qPCR试剂:ChamQ Universal SYBR qPCR Master Mix(诺唯赞);内参基因:OsActin;计算方法:F = 2−ΔΔCt
2.7 GUS染色
GUS染色使用北京索莱宝GUS染色液。将适量X-Gluc Solution(50×)与GUS Buffer按1:50比例混合配制X-Gluc染色液。随后,将足量GUS染色液施加于组织上,确保完全浸没。样品在37 °C孵育1–24 h。为去除叶绿素,样品经[原文此处截断]
【数据】染色液:北京索莱宝GUS染色液;X-Gluc Solution(50×)与GUS Buffer比例:1:50;孵育温度:37°C;孵育时间:1–24 h
研究结果
3.1 建立落叶松高效原生质体瞬时表达系统
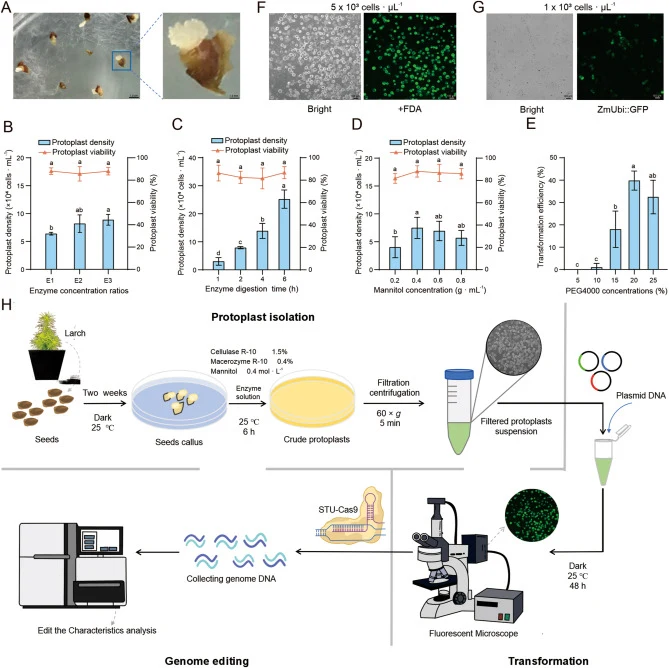
本研究使用落叶松愈伤组织进行原生质体分离(图1,A)。为建立稳定高效的落叶松原生质体分离和瞬时表达系统,对酶浓度比例、酶解时间、甘露醇浓度、离心速度和PEG4000浓度等重要参数进行了优化和确定。当酶解液中纤维素酶R-10浓度从1.5%增加到3.0%、离析酶R-10从0.4%增加到0.8%时,原生质体密度显著增加,但原生质体活性保持不变(图1,B)。当纤维素酶和离析酶浓度比分别为1.5%和0.4%时,制备的原生质体数量满足实验需求。出于经济考虑,确定该浓度为适宜酶浓度。随着酶解时间从1 h增加到6 h,原生质体密度逐渐增加,而原生质体活性保持在80%–90%之间(图1,C)。基于这些结果,确定分离落叶松原生质体的最佳酶解时间为6 h。为确定原生质体释放情况,在酶解液中评估了四种甘露醇浓度,0.4 mol·L⁻¹甘露醇产生最高的原生质体密度和活性(图1,D)。当使用60×g离心力收集原生质体时,显微镜观察显示上清液中残留的原生质体数量与90×g离心后几乎相同,而更高的离心力导致静止收集。在原生质体质量方面,60×g优于90×g离心,且不弱于静止沉淀收集的原生质体(图S1)。因此,收集落叶松原生质体时使用60×g的离心转速。转化效率随PEG4000浓度(5%–25%)增加先升高后降低。当PEG4000浓度为20%时,转化效率最高,约为40%(图1,E)。总之,20%为最佳PEG4000浓度。通过优化落叶松原生质体的分离和瞬时表达条件,原生质体瞬时转化后近90%的原生质体具有良好的活性(图1,F),转化效率达到40%(图1,G)。这些实验结果表明,落叶松原生质体的瞬时表达系统得到了有效优化。优化后的落叶松原生质体制备使用愈伤组织,酶解6 h。含0.4 mol·L⁻¹甘露醇、1.5%纤维素酶和0.4%离析酶的酶混合物可获得足够的原生质体且具有成本效益,以60×g收集。转化时,20% PEG4000可实现40%的效率。近90%的原生质体保持活性,为落叶松瞬时转化和基因编辑奠定了基础(图1,H)。
【数据】纤维素酶R-10浓度范围:1.5%–3.0%;离析酶R-10浓度范围:0.4%–0.8%;最佳酶浓度:1.5%纤维素酶 + 0.4%离析酶;酶解时间范围:1–6 h;最佳酶解时间:6 h;原生质体活性:80%–90%;甘露醇最佳浓度:0.4 mol·L⁻¹;离心力:60×g(优于90×g);PEG4000浓度范围:5%–25%;最佳PEG4000浓度:20%;转化效率:约40%;转化后原生质体活性:近90%
3.2 落叶松高活性内源启动子的挖掘与鉴定
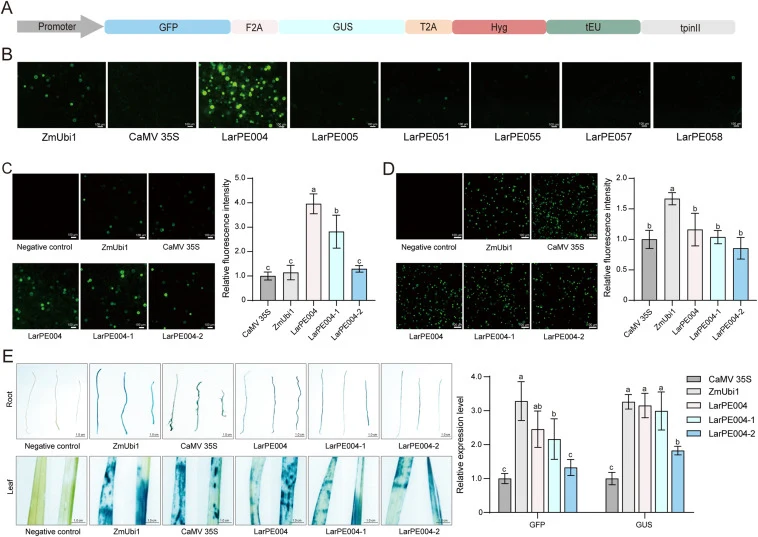
基因组-转录组测序的初步比较分析(未发表数据)共鉴定出819个在愈伤组织和针叶中均高表达的转录本。进一步筛选出41个含有转录起始位点(TSS)上游完整序列信息的转录本(图S2,A;表S1)。每个转录本TSS上游2000 bp序列被分离为候选启动子元件(LarPE)。启动子调控元件分析显示,41个候选启动子含有大量参与转录调控的顺式作用元件(图S2,B)。这些结果为落叶松内源启动子特定功能的研究提供了重要参考。为验证候选启动子的转录活性,构建了不同候选启动子同时驱动绿色荧光蛋白(GFP)、β-葡萄糖苷酸酶(GUS)和潮霉素(Hyg)表达的载体(图2,A)。经克隆、组装和测序后,获得41个载体(以ZmUbi1和CaMV 35S启动子作为阳性对照)。使用已建立的瞬时原生质体表达系统检测41个候选启动子的转录活性。6个候选启动子成功驱动落叶松原生质体中GFP表达:LarPE004、LarPE005、LarPE051、LarPE055、LarPE057和LarPE058(图2,B)。LarPE004转录活性最高,显著高于ZmUbi1和CaMV35S启动子。LarPE051转录活性中等,在落叶松细胞中略低于ZmUbi1启动子(图2,B)。进一步研究了全长LarPE004启动子及其两个截短片段LarPE004-1和LarPE004-2在落叶松原生质体、水稻原生质体和植株中的表达模式。阳性对照(ZmUbi1和CaMV35S启动子)和阴性对照(未转化原生质体或植株)用于研究原生质体和稳定转化。在原生质体细胞中,LarPE004、LarPE004-1和LarPE004-2成功驱动GFP蛋白在落叶松和水稻中的转录表达。LarPE004和LarPE004-1在落叶松细胞中表现出高于两个阳性对照的表达活性(图2,C)。在水稻细胞中,LarPE004启动子活性显著低于ZmUbi1启动子活性,与CaMV35S启动子活性相似(图2,D)。在水稻植株中,LarPE004、LarPE004-1和LarPE004-2启动子片段驱动GFP和GUS在水稻根和叶中表达,LarPE004和LarPE004-1的表达活性显著高于CaMV35S启动子(图2,E)。研究者还检测了LarPE004启动子在杨树中的表达活性。LarPE004启动子驱动GUS基因在杨树根、茎和叶中高水平表达(图S3)。这些结果进一步表明,LarPE004启动子是一个物种通用的高活性组成型启动子,在植物基因组工程中具有巨大的应用潜力。
【数据】高表达转录本数:819个;筛选候选启动子数:41个;启动子序列长度:2000 bp;成功驱动GFP表达的候选启动子:6个(LarPE004、LarPE005、LarPE051、LarPE055、LarPE057、LarPE058);LarPE004活性:显著高于ZmUbi1和CaMV35S;截短片段:LarPE004-1(缩短510 bp)、LarPE004-2(缩短1160 bp);水稻中LarPE004活性:低于ZmUbi1、与CaMV35S相似;水稻植株中LarPE004和LarPE004-1活性:显著高于CaMV35S;杨树中LarPE004:驱动GUS在根、茎、叶高水平表达
3.3 不同表达系统基因编辑效率比较
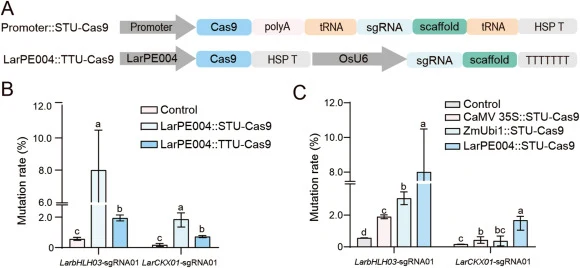
研究者利用LarPE004启动子驱动的STU-Cas9(pGEL1031)和TTU-Cas9(pGEL1033)在落叶松中开发了基因组编辑骨架LarPE004::STU-Cas9和LarPE004::TTU-Cas9(图3,A)。为验证CRISPR/Cas基因编辑系统的效果,选择蛋白编码基因和非编码miRNA基因(表S3)作为靶标,在落叶松原生质体中评价基因编辑效率。构建了基于LarPE004::STU-Cas9和LarPE004::TTU-Cas9的若干载体用于单基因敲除。此前报道的CaMV35S和ZmUbi1启动子驱动的STU-Cas9系统用作阳性对照(Tang et al., 2016, 2017),未转化原生质体用作阴性对照。落叶松原生质体中扩增子的高通量测序显示,对于LarPE004::STU-Cas9和LarPE004::TTU-Cas9系统,LarbHLH03-sgRNA01位点的基因编辑效率分别为8%和1.9%,LarCKX01-sgRNA01位点分别为1.5%和0.7%(图3,B;表S4)。两个阳性对照系统在不同位点的基因编辑效率显著低于LarPE004::STU-Cas9系统(图3,C)。LarPE004::STU-Cas9系统在这两个位点的基因组编辑效率优于LarPE004::TTU-Cas9、CaMV 35S::STU-Cas9和ZmUbi1::STU-Cas9在落叶松细胞中的表现。因此,LarPE004驱动的STU-Cas9系统应用于落叶松靶基因编辑。
【数据】编辑系统:LarPE004::STU-Cas9(pGEL1031)、LarPE004::TTU-Cas9(pGEL1033);靶基因:LarbHLH03、LarCKX01;LarbHLH03-sgRNA01位点编辑效率:STU-Cas9为8%,TTU-Cas9为1.9%;LarCKX01-sgRNA01位点编辑效率:STU-Cas9为1.5%,TTU-Cas9为0.7%;阳性对照(CaMV35S::STU-Cas9、ZmUbi1::STU-Cas9):显著低于LarPE004::STU-Cas9
3.4 基于不同启动子的STU-Cas9系统多基因编辑比较
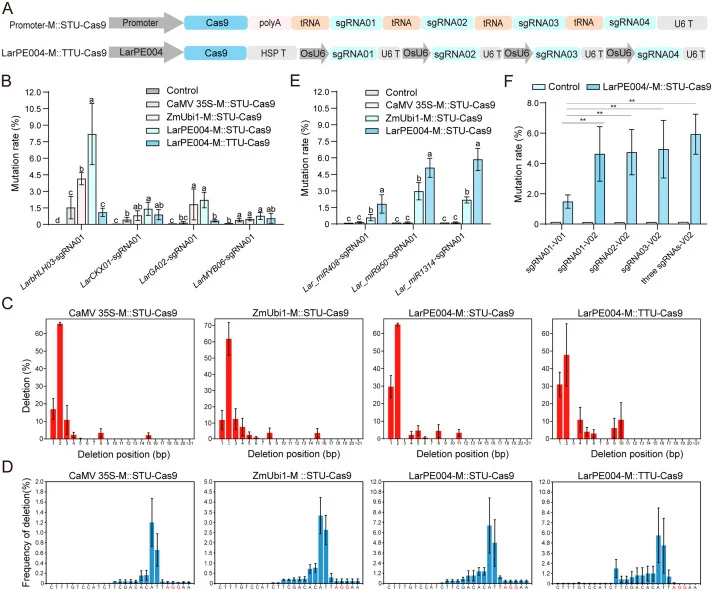
为确定STU-Cas9系统在落叶松中是否具有多基因编辑活性,选取四个靶位点,即LarbHLH03[原文此处截断]
【数据】靶位点数:4个;靶基因:LarbHLH03(原文截断,其余靶位点原文未详述)
3.5 基于不同Cas9核酸酶的STU-Cas9系统基因编辑
[原文此处截断]
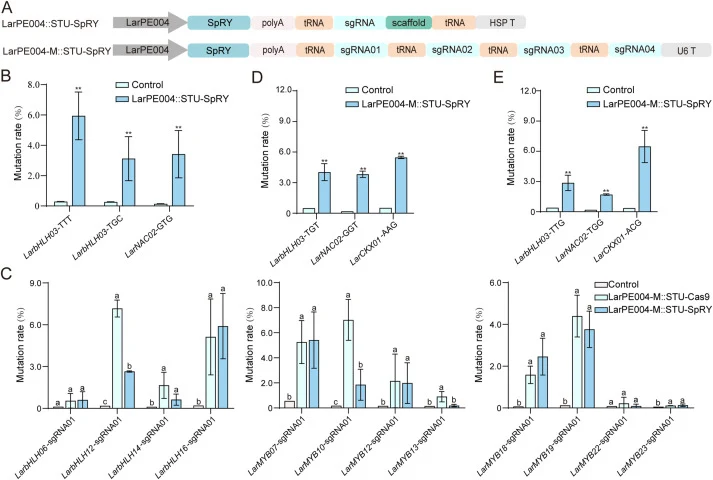
【数据】原文未详述
讨论与解读
过去十年,基于CRISPR/Cas的基因组编辑已广泛用于多种植物的基因功能研究和分子育种,在其切割特性、编辑效率、物种特异性、遗传稳定性和应用范围等方面开展了全面深入的研究(Tang and Zhang, 2023)。然而,由于基础研究相对滞后和遗传操作(如基因转化)困难,基因组编辑在许多非模式林草植物中的应用仍然有限,如花卉、果树、蔬菜、林木、牧草和药用植物。植物的稳定遗传转化因再生耗时且困难而面临重大挑战,对落叶松等非模式物种尤为如此。因此,原生质体瞬时表达系统因其流程简单快速,已被广泛用于植物基因组编辑。本研究在日本落叶松中建立了高效的基于原生质体的瞬时表达系统,实现了高原生质体产量,活力超过90%,转染效率达40%。结合PCR扩增子的高通量测序,该系统成功检测了内源蛋白编码基因和非编码基因的基因编辑,并在落叶松多基因编辑评价中表现良好。制备和收集的原生质体的条件受多种因素影响,这些因素随后影响了[原文此处截断]。
编译者解读:该研究的核心策略是以原生质体瞬时体系替代稳定转化,绕开落叶松再生困难的瓶颈,这一思路对多数难转化的木本植物具有借鉴意义。LarPE004的筛选基于基因组-转录组联合分析,从819个高表达转录本中锁定41个候选启动子,再经功能验证缩小到1个,路径清晰但通量有限。STU-Cas9在编辑效率上优于TTU-Cas9和常规强启动子,提示转录单元结构对编辑活性的影响可能不亚于启动子强度本身。局限在于编辑效率绝对值仍偏低(最高8%),且多基因编辑数据在节选中不完整,SpRY变体的PAM兼容性优势有待全文数据支撑。
参考来源
期刊:Horticultural Plant Journal, 2026
DOI: 10.1016/j.hpj.2025.02.020
DOI: 10.1016/j.hpj.2025.02.020