来源:Heterologous expression of a thermostable laccase from Chrysoporthe cubensis in Komagataella phaffii improves thermal stability and dye decolorization(Protein Expression and Purification)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
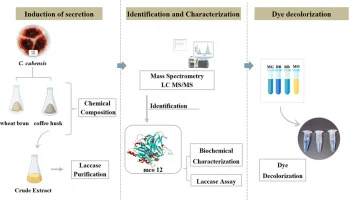
漆酶是一类含铜多酚氧化酶,广泛用于染料脱色、木质素降解与环境污染物去除。本研究从植物病原真菌 Chrysoporthe cubensis 中鉴定出漆酶 MCO12,以咖啡果壳为诱导基质进行固态发酵生产,并对其进行纯化与酶学表征。为突破天然产量瓶颈,研究者将 MCO12 基因经密码子优化后在 Komagataella phaffii GS115 中异源表达,重组酶产量达 246 U/L,热稳定性大幅提升,50 °C 半衰期延长至 142 h,并在无介体条件下 72 h 脱色 99% 孔雀石绿与 71% 刚果红。
研究背景
漆酶(EC 1.10.3.2)属于多铜氧化酶(MCOs)中的辅助活性家族 1(AA1),存在于真菌、细菌和植物中。这类酶能催化多种酚类与非酚类底物氧化,包括染料、木质素衍生化合物及其他环境污染物,因而在染料脱色、木质素降解与增值、生物质转化制取生物燃料、酚类及外源污染物去除等领域受到广泛关注。漆酶仅需分子氧、副产物仅为水,被称为“绿色催化剂”。
结构上,漆酶具有三个保守的铜氧还蛋白结构域(D1、D2、D3)和四个铜离子组成的催化核心:一个 T1 铜离子从还原性底物接受电子,一个 T2 铜离子与两个 T3 铜离子构成三核簇,负责将四个电子传递给 O₂ 使其还原为 H₂O。这一保守结构使其能够氧化广泛的底物谱。本研究以咖啡果壳这一富含木质素的农工业残渣为诱导基质,从 C. cubensis 中挖掘漆酶资源,并通过异源表达改善其产量与热稳定性,评估其在染料废水生物修复中的应用潜力。
研究方法
2.1 *Chrysoporthe cubensis* 漆酶的诱导、纯化与鉴定
#### 2.1.1 微生物培养
真菌 Chrysoporthe cubensis(LPF 2470)(分类学 ID:305400)获自巴西维索萨联邦大学森林病理学实验室真菌保藏中心。该真菌保存于马铃薯葡萄糖琼脂(PDA)培养基平板上,28 °C 培养,并定期继代。C. cubensis 接种物的制备方法为:取 10 个含 5 日龄 PDA 平板菌落的菌饼,加入装有 100 mL 已灭菌培养基的 250 mL 锥形瓶中,培养基组成(g/L)为:葡萄糖 10.0;NH₄NO₃ 1.0;KH₂PO₄ 1.0;MgSO₄ 0.5;酵母提取物 2.0。随后,液体培养物在自动摇床中于 150 rpm、28 °C 维持 5 天。所得培养物无菌匀浆后接种至半固态培养基中。
在半固态发酵(SSF)条件下培养 C. cubensis 生产酶时,使用咖啡果壳与麦麸。在 250 mL 锥形瓶中加入 12.5 g 生物质与 18.75 mL 培养基,pH 5.0(最终含水量 60%)。培养基含(g/L):NH₄NO₃ 1.0;KH₂PO₄ 1.5;MgSO₄ 0.5;CuSO₄ 0.25;酵母提取物 2.0。培养基中添加微量元素(mg/L):MnCl₂ 0.1;H₃BO₃ 0.075;Na₂MoO₄ 0.02;FeCl₃ 1.0;ZnSO₄ 3.5。锥形瓶于 121 °C 灭菌 20 min,随后接种约 10 mL 先前制备的接种物。锥形瓶置于温控培养箱中 28 °C 培养 7 天。SSF 期间分泌的酶用 50 mM、pH 5 的乙酸钠缓冲液以 10:1 比例(缓冲液:干基质)提取,150 rpm 室温振荡 60 min。随后通过尼龙膜过滤将固体与菌丝体从上清液中分离,再于 4 °C、15000 × g 离心 10 min。
【数据】菌株:Chrysoporthe cubensis(LPF 2470,Taxonomy ID: 305400);培养基:PDA、半固态培养基(咖啡果壳+麦麸);温度:28 °C(培养)、121 °C(灭菌20 min)、4 °C(离心);时间:5天(种子液)、7天(SSF)、60 min(提取)、10 min(离心);转速:150 rpm、15000 × g;pH:5.0;含水量:60%;接种量:10个菌饼/10 mL;碳源:葡萄糖 10.0 g/L;氮源:NH₄NO₃ 1.0 g/L
#### 2.1.2 咖啡果壳与麦麸的化学组成
咖啡果壳与麦麸的纤维素、半纤维素、木质素、灰分和提取物含量按美国国家可再生能源实验室(NREL)方法定量。糖单体采用配备 RID-20A 示差折光检测器的 CBM-20A/20Alite(Shimadzu)高效液相色谱定量。蛋白质测定采用凯氏定氮法,蛋白质含量以氮因子(NF)6.25 估算。
【数据】检测指标:纤维素、半纤维素、木质素、灰分、提取物、糖单体、蛋白质;仪器:HPLC(Shimadzu CBM-20A/20Alite + RID-20A);方法:NREL法、凯氏定氮法;氮因子:6.25;原文未详述具体色谱条件
#### 2.1.3 漆酶活性测定与总蛋白定量
为定量 C. cubensis 漆酶活性,标准酶促反应在 100 mM、pH 4.0 乙酸钠缓冲液中、55 °C 进行。漆酶活性通过监测底物 2,2′-联氮-双(3-乙基苯并噻唑啉-6-磺酸)(ABTS)的氧化来测定。反应体系由 50 μL 酶提取液、850 μL 缓冲液和 100 μL 10 mM ABTS 组成。混合物孵育 15 min,于 420 nm 测定吸光度。漆酶活性按朗伯-比尔定律计算,摩尔消光系数为 3.6 × 10⁴ M⁻¹cm⁻¹。一个酶活单位定义为每分钟产生 1 μmol 氧化 ABTS 所需的酶量。蛋白质浓度采用 Bradford 比色法测定,使用牛血清白蛋白标准曲线。
【数据】缓冲液:100 mM 乙酸钠,pH 4.0;温度:55 °C;时间:15 min;波长:420 nm;反应体系:50 μL 酶液 + 850 μL 缓冲液 + 100 μL 10 mM ABTS;消光系数:3.6 × 10⁴ M⁻¹cm⁻¹;单位定义:1 U = 1 μmol 氧化ABTS/min;蛋白定量:Bradford法,BSA标准曲线
#### 2.1.4 漆酶纯化
首先,将 1.5 mL 含天然或重组漆酶的粗提液上样至 Sephadex G-25 HiTrap Desalting 凝胶过滤柱,在 ÄKTA 系统的快速蛋白液相色谱(FPLC)上进行,使用 50 mM、pH 6.0 磷酸钾缓冲液。以 2.5 mL/min 流速收集 1.0 mL 组分。按 2.1.3 项所述测定各组分漆酶活性与蛋白浓度。合并活性组分(5 mL),上样至预先用 50 mM、pH 6 磷酸钾缓冲液平衡的 HiTrap DEAE Fast Flow 柱。用 25 mL 相同缓冲液洗脱蛋白,随后用 50 mM、pH 6.0 磷酸钾缓冲液中 0–1 M NaCl 线性梯度洗脱。以 2.5 mL/min 流速收集 1 mL 组分,按 2.1.3 项所述分析漆酶活性与蛋白浓度。
【数据】上样量:1.5 mL 粗提液;层析柱:Sephadex G-25 HiTrap Desalting、HiTrap DEAE Fast Flow;缓冲液:50 mM 磷酸钾,pH 6.0;流速:2.5 mL/min;组分体积:1.0 mL(脱盐)、1 mL(离子交换);合并体积:5 mL;洗脱梯度:0–1 M NaCl;洗脱体积:25 mL;原文未详述温度
#### 2.1.5 一维电泳(SDS-PAGE)
SDS-PAGE 在 Mini-Protean II System Cell(BioRad)中进行,浓缩胶与分离胶浓度分别为 5%(m/v)和 12%(m/v),按 Laemmli 方案操作。蛋白条带用考马斯亮蓝 G-250 或硝酸银染色。
【数据】仪器:Mini-Protean II System Cell(BioRad);浓缩胶:5%(m/v);分离胶:12%(m/v);染色:考马斯亮蓝 G-250 或硝酸银;原文未详述电压与时间
#### 2.1.6 胰蛋白酶消化、液相色谱与质谱(LC-MS/MS)
从 SDS-PAGE 上切下蛋白条带,粉碎后进行酶解消化。胰蛋白酶肽段分析在 LC-MS/MS 系统上进行,该系统由 nanoAcquity UPLC(Waters,美国)和 Amazon Ion Trap® 型质谱仪(Bruker Daltonics,德国)组成。离子以正离子模式扫描,MS1 谱质量范围 300–1500 m/z,MS2 范围 70–3000 m/z。将生成的峰列表与 C. cubensis 数据库中的蛋白序列比对以鉴定漆酶。比对使用 PEAKS 软件 7.0 版(Bioinformatics Solutions Inc.,加拿大)完成。
【数据】仪器:nanoAcquity UPLC(Waters)+ Amazon Ion Trap® 质谱仪(Bruker Daltonics);扫描模式:正离子;MS1范围:300–1500 m/z;MS2范围:70–3000 m/z;软件:PEAKS 7.0;原文未详述酶解时间与温度
2.2 *C. cubensis* 漆酶的异源表达
#### 2.2.1 菌株与载体
含所选 C. cubensis 漆酶基因的 pPICZαB 载体由 GenScript(Piscataway,NJ,美国)合成。感受态 Escherichia coli DH5α 细胞(Stratagene,La Jolla,CA,美国)用于载体扩增与操作。Komagataella phaffii GS115 菌株(Invitrogen,Carlsbad,CA,美国)用于异源表达。限制性内切酶与 DNA 连接酶购自 Thermo Fisher(Waltham,MA,美国)。
【数据】载体:pPICZαB;克隆菌株:E. coli DH5α;表达菌株:K. phaffii GS115;试剂来源:GenScript、Stratagene、Invitrogen、Thermo Fisher;原文未详述酶切条件
#### 2.2.2 C. cubensis 漆酶在 K. phaffii GS115 中异源表达的密码子优化
使用 TargetP 2.0 预测工具从所选 C. cubensis 漆酶的原始编码序列中去除真菌分泌信号肽序列,以获得仅在 K. phaffii 中表达的编码序列。将 K. phaffii α-交配因子的分泌信号肽编码序列加入 pPICZαB 表达载体,以确保基因在亚克隆入 pPICZαB 载体后保持阅读框正确。去除信号肽后,使用 OPTIMIZER 在线软件对所选漆酶序列进行 K. phaffii 表达优化。优化后的核苷酸序列使用 Translate 工具翻译为相应氨基酸序列,含优化密码子的蛋白序列与原始序列使用 Mafft 7 版程序比对。使用 Gene Designer 软件(DNA 2.0)更改部分密码子,以降低富含 AT 或 CG 的长序列及重复密码子含量,这些序列可能导致表达过程中的错误。在基因序列末端插入两个终止密码子,并分别在 5′ 和 3′ 端添加 PstI 和 NotI 限制性位点,以便将目标编码序列以正确阅读框克隆入 pPICZαB 载体,与信号肽编码序列融合。最终漆酶编码序列由 Genscript(Piscataway,NJ,美国)合成并克隆入 pPICZαBTEV 载体。
【数据】信号肽预测工具:TargetP 2.0;密码子优化软件:OPTIMIZER;序列比对工具:Mafft 7;密码子调整软件:Gene Designer(DNA 2.0);限制性位点:PstI(5′)、NotI(3′);终止密码子:2个;表达载体:pPICZαBTEV;分泌信号肽:K. phaffii α-交配因子;原文未详述优化具体参数
#### 2.2.3 转化入 E. coli DH5α 及质粒 DNA 提取
感受态 E. coli DH5α 细胞通过热激法转化,导入含优化漆酶基因的 pPICZαB 载体。
【数据】菌株:E. coli DH5α;方法:热激转化;载体:pPICZαB(含优化漆酶基因);原文未详述热激温度与时间
研究结果
3.1 *C. cubensis* 漆酶生产的诱导
在诱导 C. cubensis 产漆酶方面,咖啡果壳比麦麸更有效(表 S1)。在含咖啡果壳的培养基中检测到的漆酶比活性为 0.235 U/mg,比该真菌在麦麸中生长的粗提液检测到的比活性 0.028 U/mg 高 8.4 倍(表 S1)。麦麸是一种标准生物质,广泛用于真菌酶诱导,先前工作已显示在含麦麸培养基中生长的 C. cubensis 粗提液具有漆酶活性。另一方面,选择咖啡果壳诱导漆酶生产是因为其被描述为含有高木质素含量。由于木质素是漆酶的天然底物,预期木质素含量较高的植物生物质能更有效地诱导真菌产漆酶。此外,咖啡果壳是一种低成本残余生物质,其使用可降低酶生产成本。咖啡果壳与麦麸的生化组成(表 1)显示,咖啡果壳(包括外皮、果肉和羊皮纸)的木质素含量为 31.57%,而麦麸含 16.24% 木质素。在咖啡果壳上生长的 C. cubensis 提取液中检测到显著漆酶活性,表明该残渣用于漆酶生产的潜力,且其用于此目的的研究较少。
【数据】比活性:咖啡果壳 0.235 U/mg vs 麦麸 0.028 U/mg;倍数差异:8.4倍;木质素含量:咖啡果壳 31.57% vs 麦麸 16.24%;原文未详述其他组分含量
3.2 *C. cubensis* 分泌漆酶的部分纯化与鉴定
在咖啡果壳上生长的 C. cubensis 产生的漆酶被纯化了 12 倍,产率为 95.42%(表 2)。C. cubensis 漆酶部分纯化后,SDS-PAGE 中可见四条主要蛋白条带(图 1A)。从凝胶上切下条带并用质谱(LC-MS/MS)分析,结果表明仅有一条蛋白条带与漆酶相关,由图 1B 所示的 2 个独特肽段的覆盖度确认。
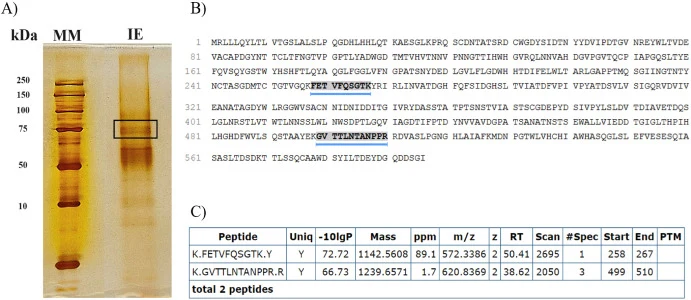
当前研究越来越多地将 SDS-PAGE 或 native PAGE 与活性酶谱和质谱结合,以鉴定和表征天然真菌漆酶。NanoLC-MS/MS 肽段图谱确认酶的身份,而序列与进化分析为同工酶多样性、结构和功能提供补充信息。该蛋白被鉴定为多铜氧化酶(MCO),由 Tavares 等人称为 MCO12。其他蛋白条带鉴定出的肽段与 C. cubensis MCOs 的任何其他预测序列不匹配(表 S2)。C. cubensis MCOs 的计算机模拟研究在该真菌基因组中鉴定出 13 个预测属于 AA1 家族的酶(MCOs 1-13)。在这些 MCOs 中,MCO12 是含有保守漆酶特征序列的酶,包括 Asp-Ser-Gly-Leu(DSGL)共有序列,将其归类为 class 2 MCO。此外,在 MCO12 中,辅助子囊菌漆酶质子转移的 SDS-gate 表现出替换,第一个丝氨酸被苏氨酸取代。由于 SDS-gate 参与催化过程中从 T1 位点向三核中心的质子转移,推测丝氨酸被苏氨酸取代可能通过促进质子流而赋予优势。此外,这些预测研究表明 MCO12 漆酶的分子量为 64.640 kDa,并含有信号肽序列,表明该酶是一种高效的严格意义漆酶(laccase sensu stricto),可由 C. cubensis 分泌。事实上,我们的结果表明,在咖啡果壳上生长的 C. cubensis 能够产生并分泌这种活性 MCO12 漆酶(图 1B 和 C)。该漆酶的分子量(图 1A)与 MCO12 预测分子量 64.640 kDa 一致。
【数据】纯化倍数:12倍;产率:95.42%;SDS-PAGE条带:4条主要条带;鉴定肽段:2个独特肽段;预测分子量:64.640 kDa;MCO家族成员:13个(MCOs 1-13);保守序列:DSGL;SDS-gate替换:丝氨酸→苏氨酸;原文未详述纯化表中具体活性数值
3.3 *C. cubensis* 漆酶 MCO12 在 *K. phaffii* 中的异源表达
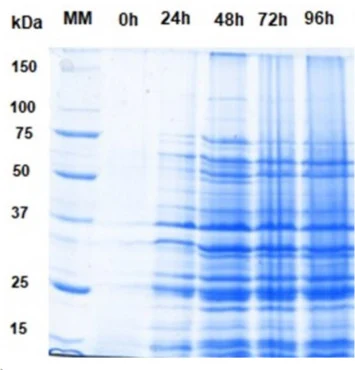
近期研究采用不同策略生产和表征真菌漆酶。Liu 等人(2026)在 K. phaffii 中异源表达了 Trametes hirsuta 漆酶同工型,并通过离子交换色谱纯化重组酶,实现了详细的生化表征及对其不同木质素氧化偏好的评估。C. cubensis 漆酶基因(称为 MCO12)被克隆入 K. phaffii GS115,转化子通过博来霉素(250 μg/mL)抗性筛选。为表达重组漆酶,K. phaffii 细胞在补充 0.25 mM CuSO₄ 的复合培养基(BMGY)中生长。甲醇诱导 24、48、72 和 96 h 时检测到的漆酶活性分别为 2.870 × 10⁻⁴、1.040 × 10⁻³、1.180 × 10⁻¹ 和 2.460 × 10⁻¹ U/mL。由于漆酶是多铜酶,其正确结构构象和活性依赖铜,与在无 CuSO₄ 培养基中生长的 K. phaffii 细胞检测到的漆酶活性(96 h 时为 3.460 × 10⁻⁵ U/mL)相比,培养基补充 CuSO₄ 对提高漆酶表达和活性至关重要。与此一致,铜的存在也被证明负责调控真菌漆酶的生产。对每个 K. phaffii 漆酶诱导时间(0–96 h)获得的粗提液进行 SDS-PAGE 分析,随后通过离子交换色谱(IE)纯化重组漆酶(图 S1),显示约 65 kDa 的蛋白条带,与 MCO12 漆酶预测分子量 64.640 kDa 匹配。这些结果证实 C. cubensis 的 MCO12 漆酶已成功克隆并在 K. phaffii 中表达。
【数据】筛选抗生素:博来霉素 250 μg/mL;培养基:BMGY + 0.25 mM CuSO₄;诱导剂:甲醇;活性(24h):2.870 × 10⁻⁴ U/mL;(48h):1.040 × 10⁻³ U/mL;(72h):1.180 × 10⁻¹ U/mL;(96h):2.460 × 10⁻¹ U/mL;无CuSO₄对照(96h):3.460 × 10⁻⁵ U/mL;蛋白条带:约65 kDa;预测分子量:64.640 kDa
#### 3.3.1 天然与重组漆酶的表征
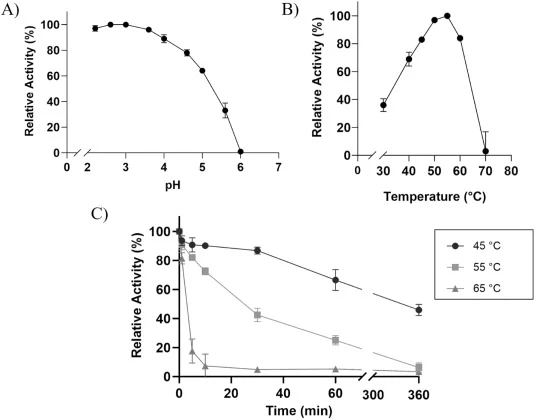
天然 C. cubensis 漆酶在 pH 2.5–3.0 范围内活性最高(图 2A)。然而,其在 pH 2.0–5.0 范围内保留了超过 60% 的活性,表明该酶的酸性性质。在 pH 6.0 时,漆酶活性为零(图 2A)。另一方面,重组漆酶在 pH 4.0–5.0 范围内活性最高,保留超过 80% 的活性,在 pH 低于 3.0 和高于 6.5 时活性几乎为零(图 3A)。pH 稳定性分析表明,该重组酶在 pH 2.0–3.0 和 6.5–8.0 范围内具有相当活性,表明该漆酶在这些 pH 值下预孵育 1 h 后仍能复性并恢复活性(图 3A)。
天然漆酶在 55 °C 时活性最高,在 45–60 °C 之间保持超过 80% 的活性(图 2B)。尽管真菌在 28 °C 生长,天然漆酶的最高活性温度为 55 °C,反映了该酶的功能适应性。重组漆酶在 55–70 °C 温度范围内保持超过 80% 的活性,在 60 °C 时活性最高(图 3B)。此外,热稳定性实验表明,天然漆酶在 45、55 和 65 °C 的半衰期分别为 290、22 和 3 min(图 2C)。
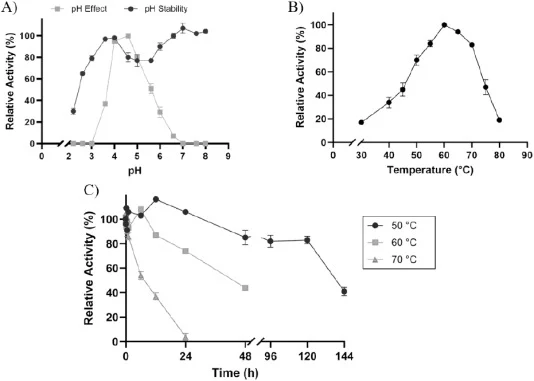
热稳定性是工业应用角度下酶的关键特性。C. cubensis 漆酶表现出的性质表明其生物技术应用潜力,特别是由于其在 45 °C 的热稳定性。约 45–50 °C 的温度常用于纺织染料生物修复、木质纤维素材料糖化,以及食品工业中果汁澄清和去除可能影响食品颜色和风味的不良酚类化合物。有趣的是,重组漆酶比天然酶显著更热稳定,在 50 °C、60 °C 和 70 °C 的半衰期分别为 142 h、45 h 和 11 h。
【数据】天然漆酶最适pH:2.5–3.0;pH 2.0–5.0保留>60%活性;pH 6.0活性为零;重组漆酶最适pH:4.0–5.0(保留>80%);pH<3.0和>6.5活性几乎为零;重组酶pH稳定性:2.0–3.0和6.5–8.0(预孵育1h后复性);天然漆酶最适温度:55 °C;45–60 °C保留>80%;重组漆酶最适温度:60 °C;55–70 °C保留>80%;天然酶半衰期:45 °C 290 min、55 °C 22 min、65 °C 3 min;重组酶半衰期:50 °C 142 h、60 °C 45 h、70 °C 11 h
讨论与解读
4 结论
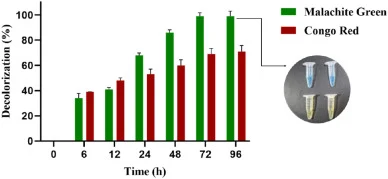
来自 Chrysoporthe cubensis 的 MCO12 漆酶,无论是生长在咖啡果壳上分泌的天然形式,还是在 Komagataella phaffii 中表达的重组酶,均表现出显著的生化与催化特性,凸显其工业和环境应用的强大潜力。天然酶在 45–55 °C 范围内表现出相关的热稳定性——该条件常用于生物修复,并能以低酶负荷、无化学介体高效脱色代表性纺织染料,使过程更安全、更简单且成本效益更高。在 K. phaffii 中重组表达不仅克服了天然产量低的限制,达到 246 U/L 的活性,还赋予了改善的热性能:60 °C 最适活性、55–70 °C 间保留 80% 活性、50 °C 半衰期延长至 142 h。此外,重组漆酶表现出增强的底物亲和力和显著改善的染料脱色能力,在 50 °C、72 h 后实现 99% 孔雀石绿和 71% 刚果红去除。总体而言,这些结果将 MCO12 漆酶定位为一种稳健且多功能的生物催化剂,结合了热稳定性、催化效率和可持续生产,与废水处理、顽固化合物生物降解及环境友好型工业应用开发等生物技术过程明确相关。
编译者解读
本研究展示了从农工业残渣诱导天然酶、到密码子优化异源表达提升性能的完整路径。选择咖啡果壳作为诱导基质兼具成本与木质素含量优势,而 K. phaffii 表达系统成功将半衰期从分钟级提升至小时级,说明宿主分泌环境对多铜酶折叠与铜整合有实质影响。局限在于重组酶产量 246 U/L 仍偏低,分子对接结果尚需晶体结构验证,染料脱色也仅停留在摇瓶水平。后续可尝试信号肽工程或高密度发酵进一步提产。
参考来源
期刊:Protein Expression and Purification, 2027
DOI:10.1016/j.pep.2026.107019
DOI: 10.1016/j.pep.2026.107019