来源:Metabolic rewiring of Synechococcus elongatus PCC 7942 enhances astaxanthin production from CO2(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
光合蓝细菌能将CO₂转化为高附加值产物,但细胞生长与生物合成之间的竞争常制约产量。本研究以高固碳、适应性进化获得的聚球藻PCC 7942菌株S20为底盘,通过前体供应、途径拓扑与辅因子工程的协同调控生产虾青素。异源表达β-胡萝卜素酮化酶和羟化酶获得菌株S20-5,虾青素积累达7.04 mg/g DCW;重排合成操纵子获得S20-6,产量提升至11.04 mg/g DCW,为目前该菌株最高报道值。异源表达硫辛酸蛋白连接酶A的菌株S20-53在10% CO₂下OD750较S20-5提高81%,兼具高细胞密度与持续虾青素积累能力。
研究背景
全球能源消费增长与化石燃料依赖推高了人为CO₂排放,加剧气候变化。微藻固碳因光合效率高、不占用耕地、培养周期短,成为气候缓解与可持续生物制造的重要方向。微藻生物精炼概念强调将光合固定的碳转化为高价值化学品,以改善生物碳利用系统的经济与环境表现。虾青素是一种高价值酮基类胡萝卜素,抗氧化活性强,在食品、营养品、化妆品和水产养殖中应用广泛。目前商业化虾青素主要来自化学合成与生物提取:合成虾青素价格低廉但为立体异构体混合物,主要用于动物与水产饲料;天然虾青素来自甲壳类、红酵母和微藻,其中雨生红球藻是主要商业来源。蓝细菌作为光合底盘具有直接利用CO₂的优势,但生长与产物合成之间的碳竞争限制了产量,如何在维持宿主代谢稳态的同时提高目标产物滴度,是光合细胞工厂构建的核心问题。
研究方法
2.1 菌株与培养
本研究使用的野生型(WT)聚球藻PCC 7942购自中国科学院水生生物研究所淡水藻种库(FACHB,中国武汉)。高CO₂适应菌株S20此前通过7阶段适应性实验室进化从WT菌株获得,期间CO₂浓度从5%逐步提高至20%(Ma et al., 2025b)。WT菌株、S20及其工程衍生菌株在BG11培养基(青岛海博生物技术有限公司,中国)中培养,按厂家说明配制,初始pH为7.1。培养条件为30 ± 2 °C、连续光照100 μmol photons m–2 s–1。根据需要添加抗生素以维持工程菌株的选择压力。
【数据】菌株:WT聚球藻PCC 7942、S20及其衍生菌株;培养基:BG11;初始pH:7.1;温度:30 ± 2 °C;光照:100 μmol photons m–2 s–1;CO₂适应浓度范围:5%–20%;进化阶段:7阶段
2.2 质粒与聚球藻突变体构建
大肠杆菌DH5α用于质粒构建与扩增,质粒pUC19作为克隆骨架。密码子优化的目标基因由商业合成(北京擎科生物科技有限公司,中国),并使用ClonExpress Ultra One Step Cloning Kit V3(南京诺唯赞生物科技股份有限公司,中国)组装入pUC19。所有构建的质粒列于表S1。构建中使用了启动子Pcpc560和PpsbA。
【数据】菌株:大肠杆菌DH5α;质粒骨架:pUC19;组装试剂盒:ClonExpress Ultra One Step Cloning Kit V3;启动子:Pcpc560、PpsbA;基因合成公司:擎科生物;原文未详述基因合成具体序列
2.3 异源基因的自然转化
聚球藻PCC 7942的转化:取指数生长期细胞,离心收集(5000 rpm,5 min),调整至OD750为0.50。细胞沉淀重悬于1% NaCl中,再次离心去除上清。随后将细胞重悬于200 μL BG11培养基中。加入10 μg携带目标基因的质粒DNA并轻柔混匀。混合物在黑暗、无振荡条件下孵育12 h。孵育后,将细胞涂布于补充相应抗生素的BG11琼脂平板,培养至单菌落出现。
【数据】转化细胞状态:指数生长期;离心条件:5000 rpm、5 min;OD750:0.50;重悬液:1% NaCl;BG11体积:200 μL;质粒DNA用量:10 μg;孵育条件:黑暗、无振荡、12 h;筛选:BG11琼脂平板+相应抗生素
2.4 基因组DNA提取与工程菌株验证
从液体BG11培养基中生长的S20及其衍生菌株指数期培养物中提取基因组DNA。简要流程:取10 mL培养物离心收集细胞(5,000 rpm,10 min),用新鲜BG11洗涤,按厂家方案使用FastPure Microbiome DNA Isolation Kit(诺唯赞,中国)处理。DNA浓度与纯度用NanoDrop 2000分光光度计(Thermo Fisher Scientific,美国)定量。以分离的DNA为模板,确认异源基因整合至S20的指定中性位点。菌株基因型与引物序列分别见表1和表S2。
【数据】培养物体积:10 mL;离心条件:5,000 rpm、10 min;DNA提取试剂盒:FastPure Microbiome DNA Isolation Kit;DNA定量仪器:NanoDrop 2000;原文未详述PCR验证的具体条件
2.5 色素提取与分析
S20及其工程衍生菌株培养7天。取5 mL培养物离心(6,000 × g,10 min,4 °C),细胞沉淀用超纯水洗涤两次。细胞在丙酮中超声破碎,含色素的上海经离心收集(12,000 × g,5 min,4 °C)。重复提取直至细胞沉淀完全脱色。为减少类胡萝卜素降解,提取过程中样品避光。合并的提取液经0.22-μm膜过滤,转入棕色高效液相色谱(HPLC)样品瓶,及时分析。类胡萝卜素使用Thermo Scientific Dionex UltiMate 3000 HPLC系统分析,配备二极管阵列检测器和Acclaim 120 C18反相柱(4.6 × 250 mm,5 μm;Thermo Fisher Scientific,美国)。流动相A为甲醇与乙酸乙酯(17:8,v/v),流动相B为乙腈、甲醇与0.1 M Tris-HCl(42:1:7,v/v/v)。梯度程序:0–15 min,B相从100%线性降至0%;15–37 min,0% B;37–38 min,B相从0%线性升至100%;38–48 min,100% B。柱温、流速、进样量和检测波长分别为25 °C、1.0 mL/min、20 μL和476 nm。虾青素、β-胡萝卜素、玉米黄质、角黄素和海胆酮通过保留时间与商业标准品(Sigma-Aldrich,美国)比对鉴定。类胡萝卜素含量用相应标准品构建的外标曲线定量,并以细胞干重(DCW)归一化。标准储备液用丙酮配制,转入密封避光容器,−80 °C保存。工作标准液在HPLC分析前新鲜配制。虾青素立体异构体按此前描述的方法使用手性柱进一步分离(Lin et al., 2019)。
【数据】培养时间:7天;培养物体积:5 mL;离心条件:6,000 × g、10 min、4 °C;破碎方式:丙酮中超声;二次离心:12,000 × g、5 min、4 °C;滤膜孔径:0.22 μm;色谱柱:Acclaim 120 C18(4.6 × 250 mm,5 μm);流动相A:甲醇:乙酸乙酯=17:8(v/v);流动相B:乙腈:甲醇:0.1 M Tris-HCl=42:1:7(v/v/v);梯度:0–15 min 100%→0% B,15–37 min 0% B,37–38 min 0%→100% B,38–48 min 100% B;柱温:25 °C;流速:1.0 mL/min;进样量:20 μL;检测波长:476 nm;标准品来源:Sigma-Aldrich;储备液保存:−80 °C
2.6 靶向¹³C同位素示踪
为比较底盘S20与产虾青素菌株的光合碳标记模式,并鉴定后续代谢工程的候选靶点,在S20和S20-5中进行靶向¹³C同位素示踪。在光自养条件下以NaH¹³CO₃作为标记的无机碳(Ci)源。指数期细胞接种至¹³C标记培养基,在指定采样点离心收集(5,000 × g,10 min;每样品约10⁷细胞)。收集的细胞立即在液氮中淬灭,−80 °C保存至分析。分析三个独立生物学重复。代谢物提取、质量同位素分布及标记分数计算的详细流程见补充材料。
【数据】菌株:S20、S20-5;标记碳源:NaH¹³CO₃;细胞状态:指数期;离心条件:5,000 × g、10 min;每样品细胞数:约10⁷;淬灭方式:液氮;保存温度:−80 °C;生物学重复:3个
2.7 异戊烯醇利用途径的功能验证
为验证S20底盘中构建的异源IUP途径的功能,将所得工程菌株在补充不同浓度异戊烯醇的BG11培养基中进行光自养培养。每48 h用酶标仪(Beckman,美国)测定OD750监测细胞生长,构建生长曲线。同时,按厂家说明使用商业检测试剂盒(上海恒远生物科技有限公司,中国)定量细胞内异戊烯基二磷酸(IPP)和二甲基烯丙基二磷酸(DMAPP)浓度。整合生长表型与前体水平,系统评价IUP代谢性能。
【数据】菌株:含异源IUP途径的工程菌株;培养基:BG11+不同浓度异戊烯醇;培养方式:光自养;生长监测:每48 h测OD750;仪器:Beckman酶标仪;检测指标:IPP、DMAPP浓度;试剂盒来源:上海恒远生物;原文未详述异戊烯醇具体浓度梯度
2.8 异源基因转录的实时定量PCR分析
异源基因转录通过实时定量PCR(qPCR)定量。用RNA-easy Isolation Reagent(诺唯赞,中国)从指数期细胞提取总RNA,用HiScript Q RT SuperMix(诺唯赞,中国)合成cDNA作为qPCR模板。以rnpB基因作为内参(Peng and Miao, 2020)。引物序列见补充材料(表S3),扩增程序与数据分析遵循此前报道的方法(Zhang et al., 2023)。
【数据】细胞状态:指数期;RNA提取试剂:RNA-easy Isolation Reagent;反转录试剂盒:HiScript Q RT SuperMix;内参基因:rnpB;引物:表S3;原文未详述qPCR扩增程序具体参数
2.9 数据分析
所有实验均进行三个独立生物学重复以确保可重复性。数据以三个重复的均值±标准差(SD)表示。图表使用Origin软件生成。统计显著性用单因素方差分析(ANOVA)结合最小显著差异(LSD)检验,使用SPSS 26评估。不同上标字母表示显著差异(P < 0.05)。
【数据】生物学重复:3个;数据表示:均值±SD;作图软件:Origin;统计方法:单因素ANOVA+LSD检验;统计软件:SPSS 26;显著性阈值:P < 0.05
研究结果
3.1 虾青素生物合成途径的构建与优化
在聚球藻PCC 7942中检测到玉米黄质,表明内源β-胡萝卜素羟化酶(CrtR)具有生理活性(图1A)。此前研究表明,在莱茵衣藻中表达单一异源酮化酶即可驱动β-胡萝卜素和玉米黄质向虾青素转化(Amendola et al., 2023)。基于此,我们首先将异源酮化酶引入底盘菌株S20,考察其内源羟化系统能否支持虾青素生物合成。由于不同来源的β-胡萝卜素酮化酶底物偏好不同,选择了来自雨生红球藻的BKT和来自短波单胞菌sp. SD212的CrtW(Menin et al., 2019; Shao et al., 2025)。这些基因在强组成型启动子Pcpc560控制下异源表达,分别获得菌株S20-1和S20-2(图1B)。
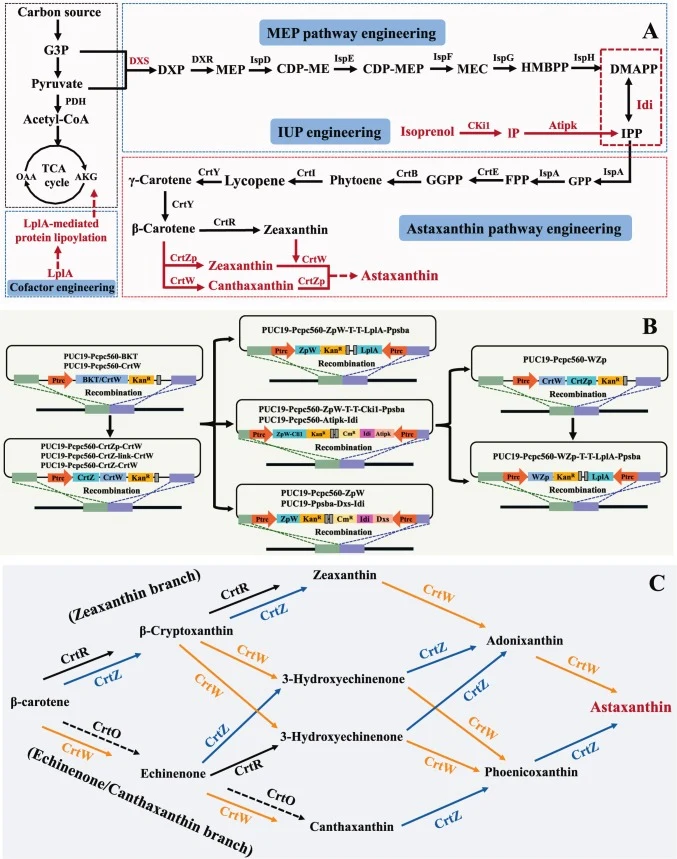
色素定量显示,单独表达BKT或CrtW均未导致可检测的虾青素积累(图2B)。在表达CrtW的菌株S20-2中,聚球藻PCC 7942中原本不存在的角黄素积累至7.58 mg/g DCW,而玉米黄质和β-胡萝卜素降至检测限以下。该表型与此前在集胞藻PCC 6803中的观察一致(Menin et al., 2019)。角黄素的大量积累表明,在测试条件下内源CrtR介导的羟化不足以有效将酮化中间体转化为虾青素。据报道,工程集胞藻PCC 6803中虾青素生物合成主要经由"先酮化"路线,即β-胡萝卜素先转化为角黄素,再羟化为虾青素(Diao et al., 2020)。据此,我们在底盘菌株S20中共表达来自短波单胞菌sp. SD-212的CrtW和β-胡萝卜素羟化酶(CrtZ)(图2A)。为进一步研究空间酶组织对类胡萝卜素积累的影响,设计了两种表达策略(Zhao et al., 2022)。两种构建均组装在同一表达盒内,由同一启动子控制。第一种构型中,crtZ和crtW作为独立开放阅读框表达,获得菌株S20-3。第二种中,crtZ和crtW用刚性(EAAAK)3 linker融合,以约束其相对空间排布,获得菌株S20-4。
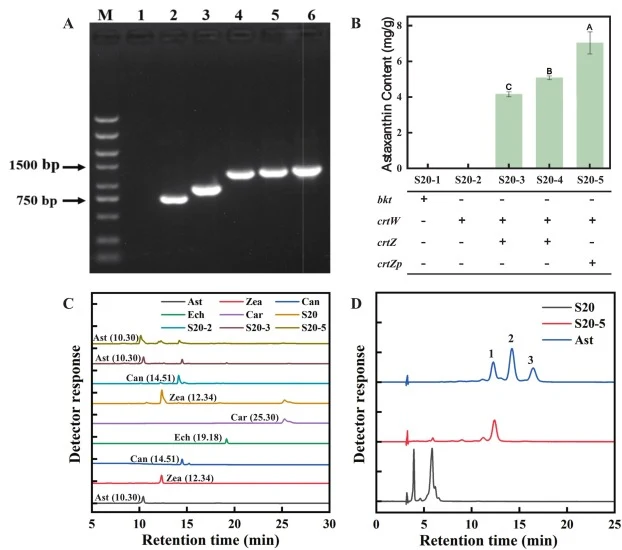
菌株S20-3和S20-4分别积累4.16和5.08 mg/g DCW虾青素(图2B)。角黄素在S20-3中积累至1.03 mg/g DCW,在S20-4中为5.18 mg/g DCW,同时伴随痕量海胆酮,而β-胡萝卜素和玉米黄质几乎检测不到。这些类胡萝卜素谱支持工程聚球藻PCC 7942中走"先酮化"路线,与集胞藻PCC 6803中的报道相似(Diao et al., 2020)。S20-3与S20-4在虾青素和中间体含量上的差异进一步表明,酶组织方式可影响类胡萝卜素转化与产物分布。
【数据】菌株:S20-2角黄素7.58 mg/g DCW;S20-3虾青素4.16 mg/g DCW、角黄素1.03 mg/g DCW;S20-4虾青素5.08 mg/g DCW、角黄素5.18 mg/g DCW;S20-1与S20-2虾青素未检出;玉米黄质与β-胡萝卜素降至检测限以下或几乎检测不到
为提高积累的酮化中间体的羟化效率并拓宽底物利用,随后将来自成团泛菌的β-胡萝卜素羟化酶(CrtZp)与CrtW共表达,获得菌株S20-5。虾青素含量提高至7.04 mg/g DCW,同时伴随8.44 mg/g DCW玉米黄质,而角黄素和β-胡萝卜素未检测到(图2B、C)。进一步分析了工程菌株中虾青素的立体异构体组成(图2D)。S20-5提取物中的虾青素峰与(3S,3′S)-虾青素标准品保留时间一致,而未检测到(3R,3′R)-和(3R,3′S)-异构体对应峰。这些结果表明工程途径具有高立体选择性,专一性产生(3S,3′S)-虾青素。
【数据】菌株:S20-5;虾青素:7.04 mg/g DCW;玉米黄质:8.44 mg/g DCW;角黄素:未检测到;β-胡萝卜素:未检测到;虾青素立体异构体:(3S,3′S)专一性;未检出(3R,3′R)和(3R,3′S)
3.2 异源虾青素生物合成的靶向¹³C同位素示踪
为确定异源虾青素生物合成如何影响光合碳掺入与分配,并鉴定后续代谢工程的候选靶点,在S20和S20-5中用NaH¹³CO₃进行靶向¹³C同位素示踪。比较分析了中心代谢物、能量与氧化还原相关代谢物、类异戊二烯前体及类胡萝卜素的质量同位素分布与标记分数。图3A总结了中心碳、MEP和类胡萝卜素生物合成途径,并展示了S20和S20-5中检测到的类胡萝卜素相关代谢物的标记分数。卡尔文循环和糖酵解中间体在两株菌中均表现出广泛的¹³C掺入(表S4)。核酮糖5-磷酸(Ru5P)、葡萄糖6-磷酸(G6P)、磷酸烯醇式丙酮酸(PEP)和3-磷酸甘油酸(3-PGA)以高标记同位素体为主,总标记分数普遍超过98%(图3B、C)。ATP和NADP在S20-5中也主要保留高标记同位素体,标记模式与S20中观察到的 broadly 相当(图3D、E)。这些结果表明,引入异源虾青素途径未破坏光合碳向中心、能量相关或氧化还原相关代谢物池的掺入。结合S20-5的生长曲线(图4B),¹³C标记模式表明S20底盘对异源虾青素生物合成具有良好代谢耐受性。
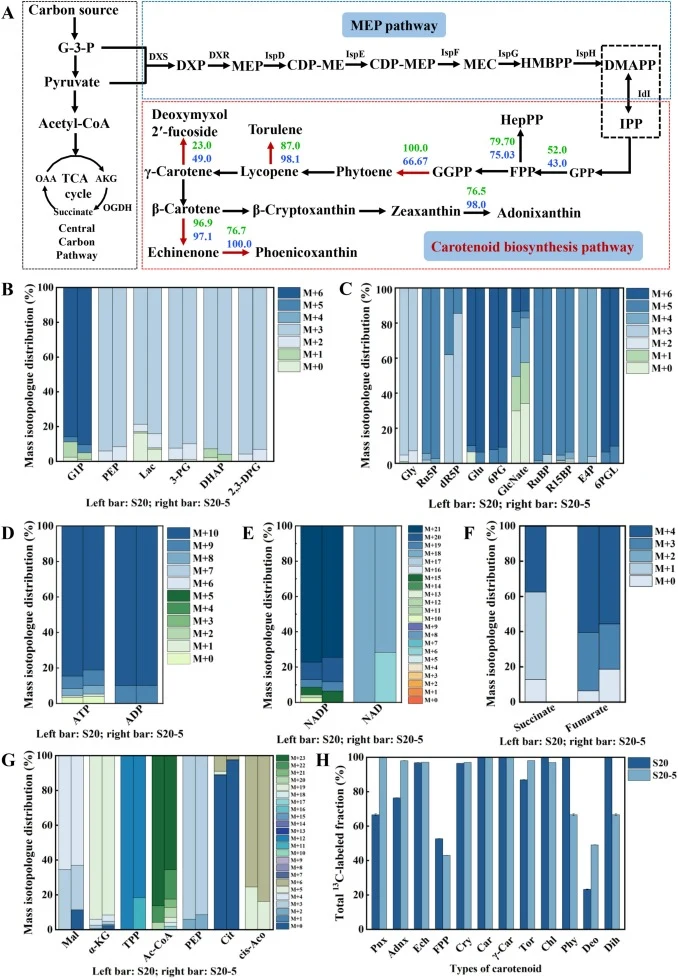
尽管中心代谢物保持了广泛标记,S20-5在若干下游代谢物的质量同位素分布上表现出明显变化(表S5)。特别是乙酰辅酶A的M + 23分数从S20中的约86.18%降至S20-5中的65.50%,同时部分标记的M + 17–M + 22同位素体贡献增加(图3G)。延胡索酸的标记分数从93.60%降至81.41%,而苹果酸的标记降低较为温和(图3F、G)。柠檬酸在S20-5中也表现出更大的M + 0分数(图3G)。这些代谢物特异性变化表明下游碳池标记的选择性重塑,而非光合碳同化的普遍下降,可能反映了细胞资源在生长、维持和异源产物形成之间的补偿性再分配。
在中心碳代谢与类异戊二烯前体池之间观察到更明显的标记不连续。卡尔文循环和糖酵解中间体几乎完全标记,而法尼基二磷酸(FPP)的标记分数从S20中的52.73%降至S20-5中的43.00%,对应其M + 0分数从47.27%升至57.00%(图3A、H)。FPP的高标记M + 12–M + 15同位素体贡献在S20-5中也较低(表S5)。中心代谢物的广泛标记与FPP显著较低的标记之间的对比表明,光合碳同化与MEP来源的类异戊二烯前体形成之间耦合不完全。因此,类异戊二烯前体供应被认为是后续代谢工程的潜在靶点。比较¹³C标记分析还揭示了新固定碳在类胡萝卜素途径内的再分配。与S20相比,S20-5中八氢番茄红素和其他上游类胡萝卜素中间体的¹³C富集较低,而若干番茄红素衍生的下游产物富集增加(图3A、H)。结合S20-5中检测到的虾青素积累,这些结果证实了由CrtW和CrtZp构建的异源虾青素生物合成途径的功能性,表明该途径重定向了类胡萝卜素代谢流。
【数据】菌株:S20、S20-5;标记碳源:NaH¹³CO₃;Ru5P/G6P/PEP/3-PGA总标记分数:>98%;乙酰辅酶A M+23:S20约86.18%→S20-5 65.50%;延胡索酸标记分数:93.60%→81.41%;FPP标记分数:52.73%→43.00%;FPP M+0分数:47.27%→57.00%;生物学重复:3个
3.3 通过前体供应强化提高虾青素产量
基于¹³C示踪结果,类异戊二烯前体供应不足是限制虾青素进一步积累的因素之一。采用两种策略强化前体供应:增强内源甲基赤藓醇磷酸(MEP)途径,或引入异源异戊烯醇利用途径(IUP)。图4A显示了菌株S20中异源基因基因组整合的PCR验证。泳道1为S20对照;泳道2为菌株S20-51中的Dxs-idi基因;泳道3为菌株S20-53中的crtZp-crtW-lplA基因。
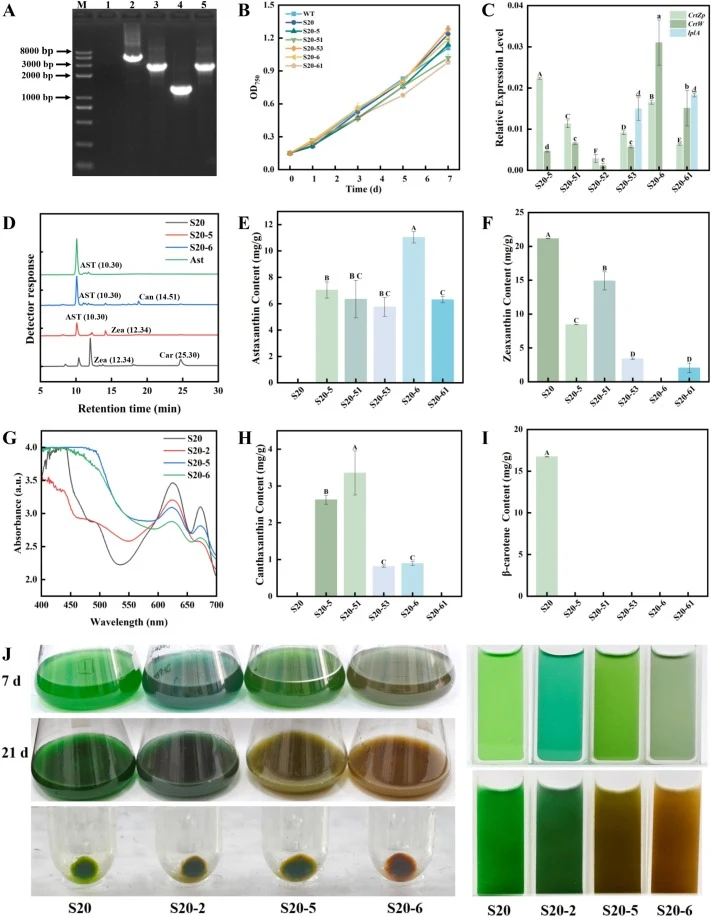
在增强内源MEP途径方面,过表达1-脱氧-D-木酮糖5-磷酸合酶(Dxs)和异戊烯基二磷酸异构酶(Idi),获得菌株S20-51。在引入异源IUP途径方面,表达来自枯草芽孢杆菌的异戊烯醇激酶(IPK)和来自大肠杆菌的异戊烯基二磷酸异构酶,获得菌株S20-52。图5A显示了菌株S20-52的PCR验证:泳道1为S20-52菌株中的atipk-idi基因;泳道2为S20-52菌株中的cki1-crtZp-crtW基因。图5B显示了S20-52的生长曲线。
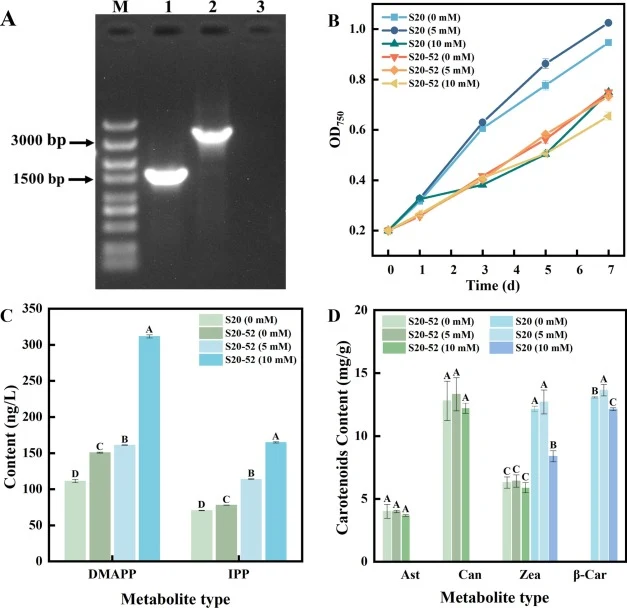
结果表明,增强内源MEP途径或引入异源IUP途径均促进了玉米黄质和角黄素的积累,但未进一步提高虾青素含量。这说明仅靠前体供应不足以提升虾青素产量,途径性能还受下游转化能力、中心碳代谢及细胞能量与氧化还原稳态的共同影响。
【数据】菌株:S20-51(过表达Dxs-idi)、S20-52(表达atipk-idi和cki1-crtZp-crtW);S20-51整合基因:Dxs-idi;S20-52整合基因:atipk-idi、cki1-crtZp-crtW;结果:玉米黄质和角黄素积累增加,虾青素含量未进一步提高;原文未详述S20-51和S20-52的具体虾青素、玉米黄质、角黄素数值
3.4 合成操纵子重排提高虾青素产量
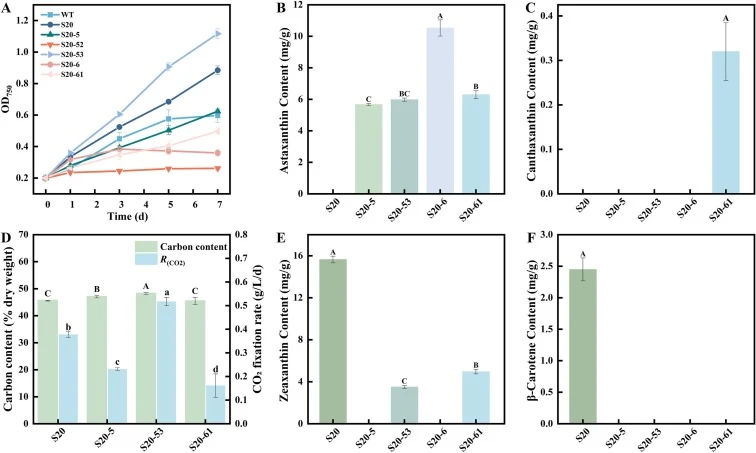
由于仅增强前体供应未能提高虾青素含量,我们推测下游转化能力或基因转录模式可能是限制因素。据此,对合成操纵子进行重排,改变酮化酶和羟化酶基因的转录模式,获得菌株S20-6。S20-6积累11.04 mg/g DCW虾青素,为目前聚球藻PCC 7942中报道的最高含量,且虾青素成为主要的类胡萝卜素产物。
图6显示了不同菌株在10% CO₂条件下的生长性能、固碳能力和类胡萝卜素积累谱。图6A为生长曲线;图6B为虾青素含量;图6C为角黄素含量;图6D为碳含量与固碳速率;图6E为玉米黄质含量;图6F为β-胡萝卜素含量。
【数据】菌株:S20-6;虾青素:11.04 mg/g DCW;培养条件:10% CO₂;虾青素为主要类胡萝卜素产物;原文未详述S20-6的角黄素、玉米黄质、β-胡萝卜素具体数值
3.5 辅因子工程改善高CO₂下的生长与产量
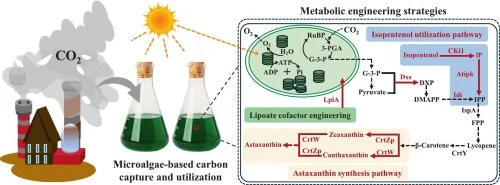
第二种策略是异源表达硫辛酸蛋白连接酶A(LplA),作为辅因子工程策略,旨在强化硫辛酸依赖的中心代谢功能,获得菌株S20-53和S20-61。在10% CO₂下,S20-53和S20-61的OD750值分别较S20-5和S20-6提高81%和39%。这些表型使S20-6成为产物导向型虾青素生产的候选菌株,S20-53成为利用高浓度CO₂进行增值生物制造的平台。
【数据】菌株:S20-53、S20-61;工程策略:异源表达LplA;培养条件:10% CO₂;OD750提升:S20-53较S20-5提高81%,S20-61较S20-6提高39%;原文未详述S20-53和S20-61的虾青素具体产量
讨论与解读
本研究以高固碳适应性进化菌株S20为底盘,通过前体供应、宿主代谢与途径拓扑的协同调控实现了异源虾青素生物合成。增强内源MEP途径或引入异源IUP途径均促进了玉米黄质和角黄素积累,但未进一步提高虾青素含量,说明仅靠前体供应不足,途径性能受下游转化能力、中心碳代谢及细胞能量与氧化还原稳态的共同影响。合成操纵子重排改变了酮化酶和羟化酶基因的转录模式,使S20-6积累11.04 mg/g DCW虾青素,为聚球藻PCC 7942中目前最高报道值,其虾青素主导的类胡萝卜素谱可能简化下游分离。在10% CO₂下,表达lplA的菌株S20-53和S20-61的OD750分别较S20-5和S20-6提高81%和39%。S20-53兼具高细胞密度、固碳速率与持续虾青素积累,凸显了其耦合高CO₂利用与增值生物质生产的潜力。S20-6和S20-53因此代表了面向不同应用的互补平台。总体而言,高效虾青素生产需要前体供应、下游转化与宿主代谢稳态之间的协调。
编译者解读:该研究的方法学价值在于用¹³C同位素示踪精准定位了FPP节点作为代谢瓶颈,而非盲目强化MEP途径——这种"先诊断后改造"的策略值得借鉴。操纵子重排提升虾青素57%的幅度说明,在蓝细菌中基因排列对转录后调控的影响可能被长期低估。局限在于虾青素产量距商业化仍有数量级差距,且S20-53的高密度表型是否以牺牲产物选择性为代价,原文未提供该菌株的完整类胡萝卜素谱。LplA辅因子工程与产物合成的解耦现象也提示,生长强化与产量提升在光合底盘上未必同步。
参考来源
期刊:Bioresource Technology, 2027
DOI: 10.1016/j.biortech.2026.136006
DOI: 10.1016/j.biortech.2026.136006