来源:Chaperone protein DnaK-mediated regulation of spore coat assembly in Bacillus subtilis(iScience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
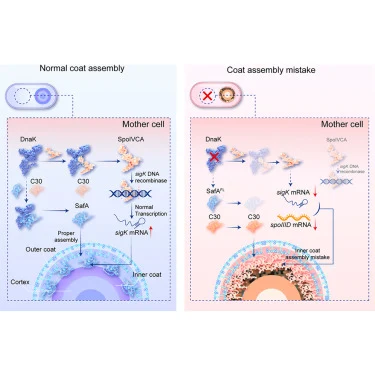
细菌芽孢对食品工业构成重大威胁,其极强抗性主要源于多层蛋白质组成的芽孢衣结构。以往研究多聚焦于芽孢衣蛋白间的相互作用,而对更广泛的蛋白质质量控制系统如何参与芽孢衣组装知之甚少。本研究以枯草芽孢杆菌为模型,揭示了分子伴侣DnaK通过转录调控与翻译后机制双重途径促进内层芽孢衣正确组装的关键作用,为芽孢形成机制提供了新的调控层面认识。
研究背景
芽孢杆菌属和梭菌属细菌形成的芽孢是食品腐败和食源性疾病的主要来源,对食品工业构成严峻挑战。这主要归因于芽孢对多种灭活处理具有极强的抗性,且一旦条件适宜便能迅速萌发为营养细胞。芽孢的抗性源于其复杂的多层结构:脱水的核心含有保护DNA的小酸溶性蛋白(SASPs),外围依次为内膜(IM)、类肽聚糖皮层和多层蛋白质芽孢衣。核心的低含水量是决定抗性的关键因素,皮层膨胀对抗刚性芽孢衣被认为是挤出核心水分的重要机制。芽孢内膜维持相对稳定 rigid 的状态,其低通透性和降低的流动性在萌发和抗性中均发挥重要作用。在枯草芽孢杆菌中,最外层结构为芽孢衣,主要由芽孢特异性蛋白组成,许多蛋白通过交联形成相对刚性的结构,作为关键保护屏障赋予芽孢抗性。然而,此前关于芽孢衣组装的研究主要集中于芽孢衣蛋白之间的相互作用,更广泛的蛋白质质量控制系统(如分子伴侣)是否参与其中尚不清楚。
研究方法
菌株与一般方法
本研究所用枯草芽孢杆菌菌株均为野生型菌株PY79的衍生株。引物序列列于表S1。菌株和质粒构建方法见补充材料。用于核苷酸测序的质粒扩增、亚克隆实验和感受态细胞转化均使用大肠杆菌菌株DH5α(Vazyme,北京,中国)进行。枯草芽孢杆菌使用Luria-Bertani培养基培养。在Schaeffer芽孢形成培养基中诱导芽孢形成24小时。使用非连续Histodenz梯度纯化芽孢。芽孢形成效率通过比较热处理(60°C处理20分钟以杀灭营养细胞)前后的菌落形成单位(CFUs)来确定,随后涂布于LB琼脂平板并在37°C培养12小时。
菌株与质粒构建
所有突变菌株均通过同源重组等位基因替换构建,方法如前所述。简要而言,从PY79基因组DNA中PCR扩增目标基因上下游各1 kb侧翼区域,同时从质粒pJOE8999中扩增含启动子的抗生素抗性盒。三个片段通过重叠延伸PCR组装为单一线性构建体。纯化的全长构建体转化至野生型菌株,通过诊断PCR确认基因缺失成功。为将dnaK基因置于木糖诱导型启动子下整合至lacA位点,PCR扩增dnaK编码序列,通过Gibson组装插入经酶切线性化的pAX01载体(实验室保存),获得质粒pAX-dnaK(lacA::xylR-dnaK EmR)。引物设计时引入与质粒末端同源的20 bp重叠序列以促进无缝组装。将菌株KYS1101(ΔdnaK)转化获得菌株KYS1102(lacA::Pxyl-dnaK)。为构建表达GFP融合蛋白的菌株,通过引物设计在目标基因3′端附加柔性GGGS linker序列进行扩增,以确保正确折叠。基因-linker片段插入质粒pAR100的gfp编码区上游,获得pAR-dnaK、pAR-cotZ、pAR-cotE、pAR-spoVID、pAR-safA和pAR-cotD,该质粒赋予壮观霉素抗性。所得基因-gfp-spc盒通过单交叉同源重组引入枯草芽孢杆菌染色体相应天然位点,从而在自身调控元件下实现GFP融合蛋白的原位表达。为构建携带lacZ转录融合的菌株,获得质粒pBS1ClacZ用于进一步改造。使用特异性引物对(PsigE-F/PsigE-R、PspoIIID-F/PspoIIID-R、PsigK-F/PsigK-R、PgerE-F/PgerE-R)从枯草芽孢杆菌基因组DNA中扩增目标启动子区域。PCR产物克隆至pBS1C-lacZ以替换原始rfp盒。所得重组质粒首先导入大肠杆菌DH5α扩增,通过红色荧光丢失鉴定阳性克隆。验证正确的构建体随后转化至枯草芽孢杆菌,通过双交叉同源重组整合至非必需amyE位点。所有转化均使用MC培养基制备的感受态细胞进行。抗生素筛选浓度如下:卡那霉素(25 μg/mL)、壮观霉素(50 μg/mL)、氯霉素(10 μg/mL)和红霉素(10 μg/mL)。双抗生素筛选时,每种抗生素使用标准浓度的一半。
【数据】菌株:PY79(野生型)、DH5α、ΔdnaK、ΔhrcA、ΔspoVID、ΔcotE等;培养基:LB、Schaeffer芽孢形成培养基、MC培养基;温度:37°C(培养)、60°C(热处理)、4°C(固定);时间:24h(芽孢形成)、12h(平板培养)、20min(热处理);抗生素浓度:卡那霉素25 μg/mL、壮观霉素50 μg/mL、氯霉素10 μg/mL、红霉素10 μg/mL;其他:Histodenz梯度纯化
芽孢抗性分析
溶菌酶抗性和次氯酸钠抗性
纯化芽孢在60°C热处理30分钟,然后悬浮于含1 mg/mL溶菌酶的10 mM Tris–HCl缓冲液(pH 7.0)中,37°C孵育3小时。芽孢对次氯酸钠的抗性通过将芽孢(调整至OD600为1)在25°C下于50 mM KPO4缓冲液(pH 7.0)中孵育来评估,缓冲液中补充1/100稀释的次氯酸钠。在指定时间点,取等分试样在1%硫代硫酸钠中淬灭至少10分钟,用水进一步稀释后涂布LB琼脂平板。平板在37°C过夜培养进行CFU计数。
【数据】溶菌酶浓度:1 mg/mL;缓冲液:10 mM Tris–HCl,pH 7.0;温度:60°C(热处理)、37°C(孵育)、25°C(次氯酸钠处理);时间:30min(热处理)、3h(溶菌酶孵育);次氯酸钠稀释:1/100;缓冲液:50 mM KPO4,pH 7.0;淬灭剂:1%硫代硫酸钠;淬灭时间:≥10min;OD600:1
湿热抗性
芽孢悬浮液调整至OD600为1.0,在80°C、85°C和90°C下进行热处理。
【数据】OD600:1.0;温度:80°C、85°C、90°C;原文其余参数未详述
研究结果
dnaK缺失增加对溶菌酶和次氯酸盐胁迫的敏感性
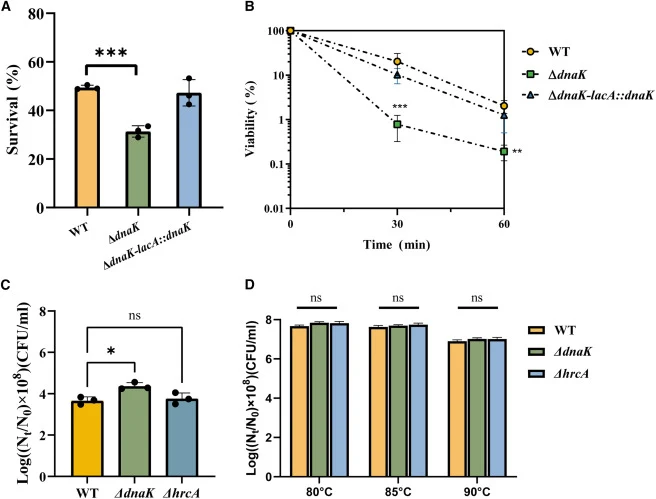
为探究DnaK对芽孢抗性的贡献,首先构建了dnaK突变菌株并检测其在不同处理条件下的存活情况。在化学试剂抗性筛选中,dnaK突变芽孢对溶菌酶和次氯酸钠的敏感性显著增加。该表型在互补菌株ΔdnaK-lacA::dnaK中完全恢复,抗性恢复至野生型水平(图1A和1B)。有趣的是,与化学试剂敏感性增加相反,dnaK突变芽孢在高压热(HPT)条件(200 MPa/80°C)下表现出增强的抗性,该条件对芽孢灭活非常有效。重要的是,组成型过表达DnaK的hrcA突变菌株芽孢在HPT处理下与野生型相比无显著差异(图1C)。这表明dnaK突变体中增强的HPT抗性并非仅仅由于DnaK蛋白本身的缺失,而可能源于其缺失的下游后果。相比之下,dnaK缺失对湿热抗性无影响,hrcA突变体同样无显著变化,与先前发现一致(图1D)。芽孢衣作为保护屏障,阻止酶和氧化剂(如溶菌酶和次氯酸钠)接触皮层。这些发现表明DnaK的缺失特异性损害了芽孢对溶菌酶和次氯酸盐的抗性,提示芽孢衣保护屏障功能存在缺陷。然而,突变体中湿热抗性无显著变化表明核心性质和相对刚性的内膜未受实质性影响。
【数据】HPT条件:200 MPa/80°C;溶菌酶敏感性:dnaK突变体显著增加;次氯酸钠敏感性:dnaK突变体显著增加;互补菌株:抗性恢复至野生型水平;hrcA突变体HPT:与野生型无显著差异;湿热抗性:dnaK和hrcA突变体均无显著变化
DnaK影响芽孢生理功能
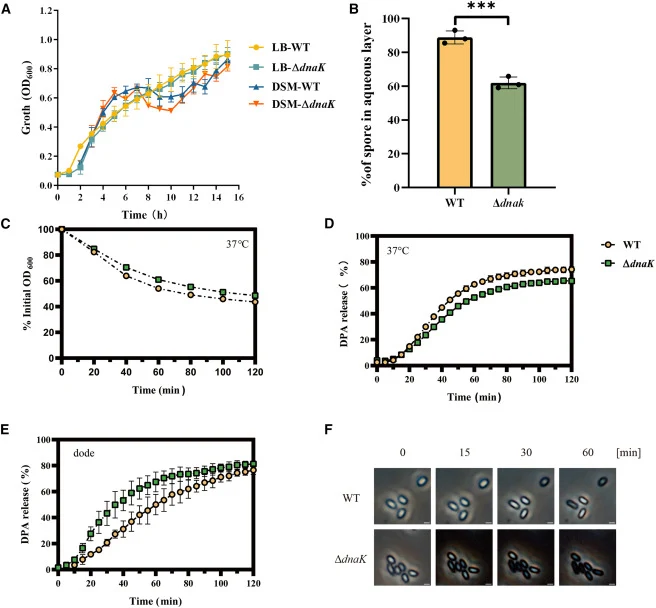
评估了dnaK缺失对芽孢形成的影响。先前研究关于dnaK缺失对芽孢形成效率的影响报道不一,可能归因于芽孢形成条件的差异。数据显示芽孢形成曲线转变时间无偏移,但菌株间芽孢形成效率存在差异,表明对芽孢形成过程无影响但可能影响芽孢形成效率(图2A)。设计了两种不同氧含量的芽孢形成条件。dnaK突变体在富氧条件下芽孢形成效率较野生型略有降低,但仍产生大量芽孢(图S1)。使用BATH(细菌对烃的粘附)实验评估芽孢表面疏水性,该指标反映外部结构层的功能。结果显示约40%的dnaK芽孢分配至十六烷相,而野生型芽孢仅10%(图2B)。正如预期,dnaK芽孢的表面性质发生显著改变。分子伴侣蛋白参与早期萌发事件,Tig已被证明调节芽孢翻译活性从而影响萌发。由于十二胺(DDA)必须穿过芽孢外层才能激活内膜通道,这种更快的响应可能反映通透性增加(图2E和2F)。进一步测试了不同温度条件下dnaK芽孢的萌发。有趣的是,在37°C下,野生型和dnaK突变芽孢之间仅观察到轻微差异(图2C和2D)。然而,在较高温度下,dnaK芽孢萌发效率显著降低且无法有效萌发(图S2)。在60°C下,AGFK无法触发萌发,表明萌发受体如GerK或GerB可能对热更敏感(图S2C)。这些萌发结果与芽孢衣缺陷芽孢的表型一致。总之,这些结果表明DnaK的缺失可影响芽孢衣的特性。
【数据】芽孢形成效率:dnaK突变体在富氧条件下略低于野生型;表面疏水性:dnaK芽孢约40%分配至十六烷相,野生型仅10%;萌发温度:37°C(轻微差异)、高温(显著降低)、60°C(AGFK无法触发萌发);DDA:激活内膜通道
DnaK缺失导致芽孢衣结构缺陷
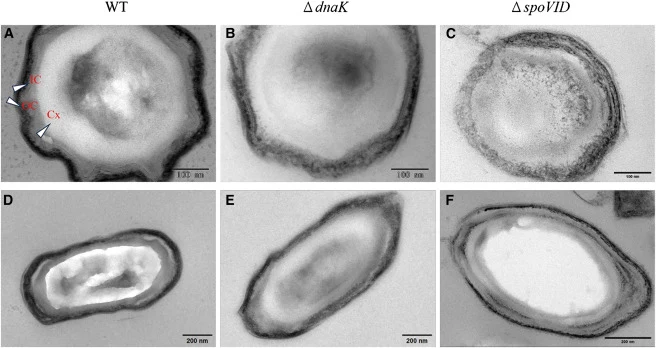
为直接检测芽孢衣结构变化,通过薄切片透射电子显微镜(TEM)分析不同菌株的纯化芽孢。野生型芽孢显示致密的多层外衣和明确的层状内层(图3A和3D)。相比之下,dnaK突变芽孢表现出明显的形态异常。芽孢衣电子密度降低、堆积松散、呈颗粒状纹理(图3B和3E)。值得注意的是,内外层之间的边界常常不清晰,层状内层完全缺失。从照片看,芽孢衣的电子密度也低于野生型。此外,与显示严重不完全芽孢衣包被的spoVID突变芽孢不同,大多数dnaK芽孢保留了完整的芽孢衣结构(图3C和3F)。补充代表性TEM图像见图S3,进一步展示dnaK突变芽孢中芽孢衣层界不清。与spoVID突变芽孢不同,dnaK芽孢保留连续且整体完整的芽孢衣结构。尽管如此,从超过15张显微照片的测量显示,与野生型芽孢相比芽孢衣无显著变薄。由于TEM无法分辨皮层或内膜等内部结构,使用高浓度碘化丙啶(PI)和SYTO 16长时间染色评估潜在缺陷。PI结合DNA且仅在IM受损时发出红色荧光,因其无法穿透完整芽孢IM。此外,SYTO 16可在芽孢皮层水解或破坏时穿透完整芽孢IM。染料未进入dnaK芽孢核心(图S4A),可作为皮层和膜完整性及通透性的间接指标。此外,测量了核心吡啶二羧酸(DPA)含量(图S4B),发现两菌株间无显著差异,表明核心矿化程度未改变。这些形态学检测结果进一步表明芽孢衣结构发生了显著变化。
【数据】TEM样本数:>15张显微照片;dnaK芽孢衣特征:电子密度降低、堆积松散、颗粒状纹理、层状内层完全缺失;spoVID突变芽孢:严重不完全芽孢衣包被;dnaK芽孢:保留完整芽孢衣结构、无显著变薄;PI染色:未进入dnaK芽孢核心;DPA含量:两菌株间无显著差异
DnaK参与芽孢形成
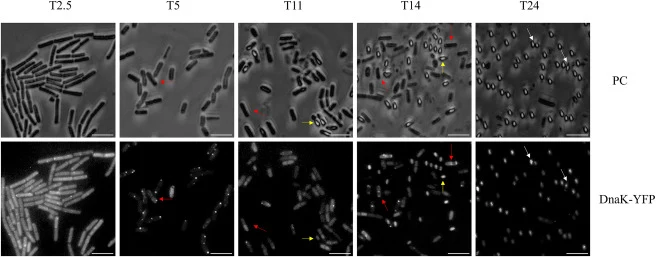
先前研究提示热休克蛋白可能在芽孢形成过程中改变芽孢结构。通过构建DnaK-YFP融合菌株研究DnaK在芽孢形成过程中的动态定位(图4)。在营养细胞中(T2.5),DnaK-YFP在整个细胞质中呈弥散分布,与先前观察一致。根据生长曲线,芽孢形成在诱导后约5小时开始(图2A)。在此阶段(T5),DnaK-YFP开始在一个细胞极积累。随着细胞经历吞噬序列,DnaK-YFP富集于芽孢两极(T11和T14,红色箭头)。随后,当前芽孢脱水并呈相亮时,母细胞中DnaK荧光减少或消失,而芽孢内荧光强度增加(黄色箭头)。在成熟芽孢中(T24),荧光似乎集中在芽孢核心区域。这些观察表明DnaK定位在整个芽孢形成过程中动态变化,且DnaK存在于成熟芽孢中。然而,母细胞中DnaK荧光丢失与前芽孢内荧光强烈积累之间的关系尚不清楚。可能DnaK在前芽孢中新合成同时在母细胞中被降解,或者预先存在的DnaK蛋白从母细胞转移至前芽孢。需要进一步研究区分这些可能性。
【数据】时间点:T2.5(营养细胞)、T5(芽孢形成开始)、T11和T14(吞噬序列)、T24(成熟芽孢);DnaK定位:T2.5弥散分布、T5单极积累、T11/T14双极富集、T24核心区域集中;芽孢形成起始:诱导后约5h
DnaK缺陷不影响芽孢衣蛋白表达谱
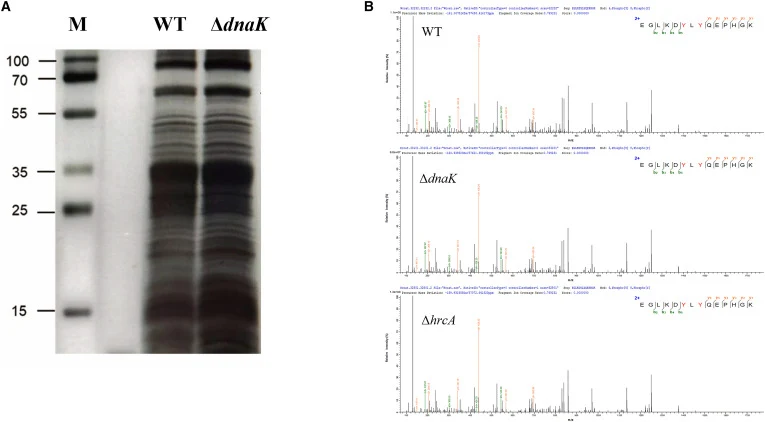
为进一步研究不同菌株芽孢衣的组成,对野生型和ΔdnaK芽孢衣提取蛋白进行15% SDS-PAGE分析(图5A)。凝胶显示两菌株间芽孢衣蛋白条带模式基本一致,表明DnaK缺失未导致芽孢衣蛋白整体表达谱的显著改变。然而,通过质谱分析检测到CotG蛋白的磷酸化修饰。从三个样品中提取的磷酸化CotG肽段的MS2谱图显示,磷酸化位点在肽段序列中以红色标出(图5B)。这一发现提示DnaK可能影响芽孢衣蛋白的翻译后修饰。
【数据】SDS-PAGE浓度:15%;蛋白marker:100 kDa;质谱样本数:3个;修饰类型:CotG磷酸化
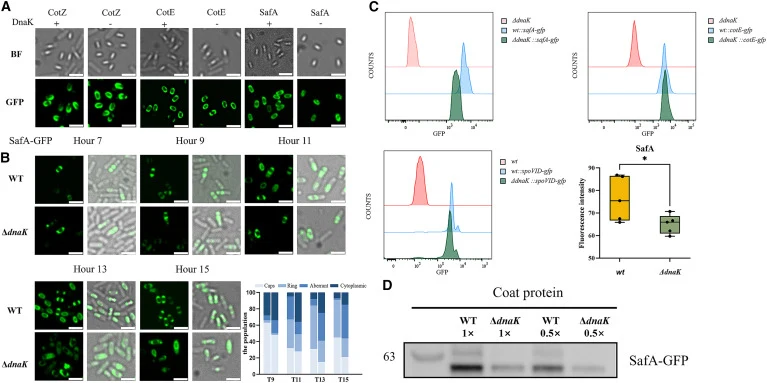
形态发生蛋白的荧光定位与蛋白表达检测
通过荧光显微镜分析携带融合蛋白的芽孢,检测不同芽孢衣形态发生蛋白的定位(图6A)。DnaK的存在(+)或缺失(−)已标明。代表不同芽孢衣蛋白的枯草芽孢杆菌形态发生蛋白定位分析显示,在dnaK突变体中,SafA的定位发生错误。SafA是内层芽孢衣形态发生蛋白,在野生型芽孢中正确定位于内层芽孢衣,但在dnaK突变体中呈现错误定位模式。此外,全长SafA的积累量在dnaK突变体中减少。这些结果表明DnaK对SafA的正确组装和积累至关重要。
【数据】蛋白:SafA(内层芽孢衣形态发生蛋白);dnaK突变体中SafA:定位错误、全长蛋白积累减少;其他形态发生蛋白:原文未详述具体变化
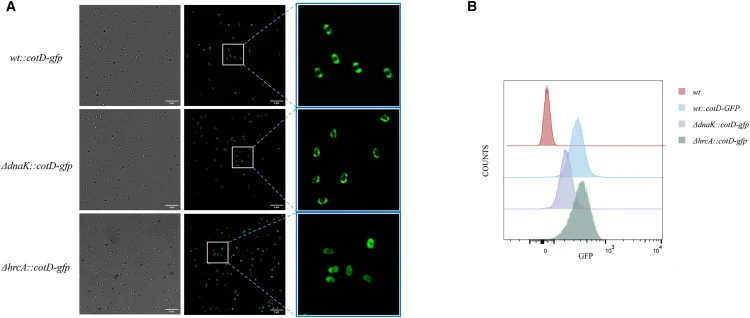
SafA依赖性蛋白CotD的定位与表达水平
分析CotD定位(图7A)。荧光照片部分放大5倍。比例尺:5 μm。在不同菌株中通过流式细胞术分析CotD的荧光强度(图7B)。结果显示,在dnaK突变体中CotD的定位和表达水平发生改变。
【数据】放大倍数:5倍;比例尺:5 μm;检测方法:流式细胞术;蛋白:CotD(SafA依赖性蛋白)
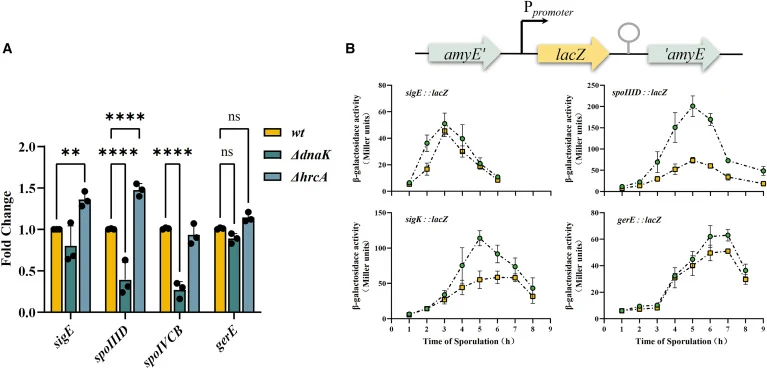
DnaK影响芽孢形成调控因子的转录调控
通过定量RT-PCR分析野生型、ΔdnaK和ΔhrcA菌株在芽孢形成过程中sigE、spoIIID、spoIVCB和gerE的转录水平(图8A)。表达水平以相对于野生型的倍数变化表示。结果显示,dnaK缺失导致spoIIID和sigK的转录动态改变。具体而言,spoIIID和sigK的激活在dnaK突变体中受损,而这些转录因子是芽孢衣包被和成熟所必需的。
【数据】基因:sigE、spoIIID、spoIVCB、gerE;方法:定量RT-PCR;菌株:野生型、ΔdnaK、ΔhrcA;表达表示:相对于野生型的倍数变化;关键发现:spoIIID和sigK激活受损
讨论与解读
本研究证明DnaK对枯草芽孢杆菌芽孢衣的正确组装至关重要。dnaK缺失主要破坏芽孢衣内层的组装。荧光显微镜揭示dnaK突变体中内层芽孢衣形态发生蛋白SafA的错误定位,该缺陷似乎与全长SafA积累减少有关。此外,DnaK缺失损害了芽孢衣包被和成熟所需的关键转录因子spoIIID和sigK的激活。dnaK突变芽孢对溶菌酶和次氯酸钠的敏感性增加——这一表型不同于一般芽孢衣基因失活,而与形态发生蛋白突变体相似。尽管与某些芽孢衣突变体不同,湿热抗性未受影响,这与芽孢衣并非湿热抗性主要决定因素的认知一致。此外,虽然DnaK是热休克蛋白,休眠芽孢并不依赖胁迫诱导反应。有趣的是,在高温下观察到dnaK芽孢萌发效率显著降低。尽管机制尚不清楚,可能与芽孢衣结构改变影响萌发剂进入的调控有关。dnaK突变芽孢疏水性增强代表芽孢表面性质的显著变化。
编译者解读
该研究将分子伴侣DnaK引入芽孢衣组装调控网络,揭示了转录与翻译后双重调控机制,拓展了芽孢形成机制的认识边界。从合成生物学视角看,DnaK作为蛋白质质量控制的核心节点,其缺失特异性影响内层芽孢衣形态发生蛋白的稳态与定位,提示在工程化改造芽孢衣蛋白表达时需考虑宿主伴侣系统的承载能力。研究局限在于DnaK在母细胞与前芽孢间的转运机制尚未阐明,且未鉴定DnaK的直接互作底物。未来可通过交联质谱或体内邻近标记技术解析DnaK-底物网络,为理性设计抗逆芽孢底盘提供靶点。
参考来源
期刊:iScience, 2026
DOI: 10.1016/j.isci.2026.117681
DOI: 10.1016/j.isci.2026.117681