来源:A hierarchical systems metabolic engineering framework for modular construction of Mycolicibacterium neoaurumcell factories for efficient phytosterol bioconversion(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
C19甾体中间体(AD、ADD、9-OHAD)是甾体药物合成的关键原料,通常依赖新金色分枝杆菌转化低成本植物甾醇获得。但该菌生长慢、甾醇摄取受限、代谢网络复杂,制约了高效定向合成。本研究建立了一套分层系统代谢工程框架,依次整合底盘进化、代谢流重塑、途径优化、辅因子再生与转运体工程,构建了三种产物特异性细胞工厂。在15 g/L植物甾醇底物下,AD、ADD、9-OHAD产量分别达7.90、8.30、7.40 g/L,摩尔转化率分别为76.53%、80.29%、67.32%;最优菌株Mn-AD04总C19中间体积累达12.7 g/L。研究还揭示胞内辅因子供给与甾醇转运是植物甾醇生物转化的双重限制因素,其中转运工程在高度工程化菌株中尤为有效。
研究背景
甾体药物是第二大类药物,广泛用于抗炎、避孕、肿瘤及内分泌疾病治疗。其关键中间体AD、9α-OHAD和ADD具有高经济价值。这类甾体活性药物成分的合成通常依赖微生物与化学联合工艺。相比传统化学合成,微生物生物转化条件温和、选择性高,能降低合成复杂度。植物甾醇是廉价的天然甾醇混合物,主要从植物油脱臭馏出物中回收,是油脂精炼的副产品。近期研究表明,分枝杆菌可作为微生物平台,将低成本植物甾醇绿色转化为高价值甾体药物及前体。例如,通过工程化双酶系统可实现植物甾醇向二氢睾酮的转化,展示了分枝杆菌在甾体药物生产中的潜力。通过代谢工程改造,新金色分枝杆菌也可被工程化以实现……(引言节选至此)
研究方法
2.1 菌株、培养基、化学品与引物
新金色分枝杆菌ATCC 25795(保藏号:ATCC 25795,美国典型培养物保藏中心)在Luria-Bertani(LB)培养基和Middlebrook 7H9(M7H9)肉汤中培养。大肠杆菌DH5α和BL21(DE3)分别在LB培养基中培养用于质粒扩增和蛋白生产,必要时添加50 μg/mL卡那霉素。新金色分枝杆菌ATCC 25795在含50 μg/mL潮霉素的M7H9肉汤中培养。必要时向新金色分枝杆菌ATCC 25795培养物中添加适当浓度的脱水四环素(ATc)。植物甾醇发酵培养基组成为:10 g/L植物甾醇、10 g/L葡萄糖、10 g/L酵母提取物、10 g/L蛋白胨、0.05 g/L柠檬酸铁铵、0.25 g/L MgSO₄、0.15 g/L (NH₄)₂HPO₄,pH 7.0。在摇瓶培养中,按植物甾醇摩尔比2:1添加羟丙基-β-环糊精以促进底物溶解。菌株在37 °C、220 rpm条件下培养7天。补料分批发酵条件下,植物甾醇初始浓度为5 g/L,之后每48小时添加5 g/L,最终浓度达15 g/L。植物甾醇(平均分子量=412.7 Da)购自上海源叶生物科技有限公司(中国上海)。AD、ADD、9-OHAD购自上海阿卡姆生化科技有限公司(中国上海)。其他化学品均为分析纯。限制性内切酶购自Thermo Fisher Scientific(美国)。PCR扩增使用PrimeSTAR Max Premix(Takara,大连,中国)。本研究所用全部质粒和引物由Genewiz(苏州,中国)合成,相应序列列于补充表S1。
【数据】菌株:新金色分枝杆菌ATCC 25795、大肠杆菌DH5α、BL21(DE3);培养基:LB、M7H9;抗生素:50 μg/mL卡那霉素、50 μg/mL潮霉素;发酵培养基:10 g/L植物甾醇、10 g/L葡萄糖、10 g/L酵母提取物、10 g/L蛋白胨、0.05 g/L柠檬酸铁铵、0.25 g/L MgSO₄、0.15 g/L (NH₄)₂HPO₄;pH:7.0;羟丙基-β-环糊精与植物甾醇摩尔比:2:1;温度:37 °C;转速:220 rpm;时间:7天;补料分批初始植物甾醇:5 g/L;补料间隔:每48小时添加5 g/L;最终浓度:15 g/L;植物甾醇平均分子量:412.7 Da
2.2 新金色分枝杆菌ATCC 25795的ARTP诱变
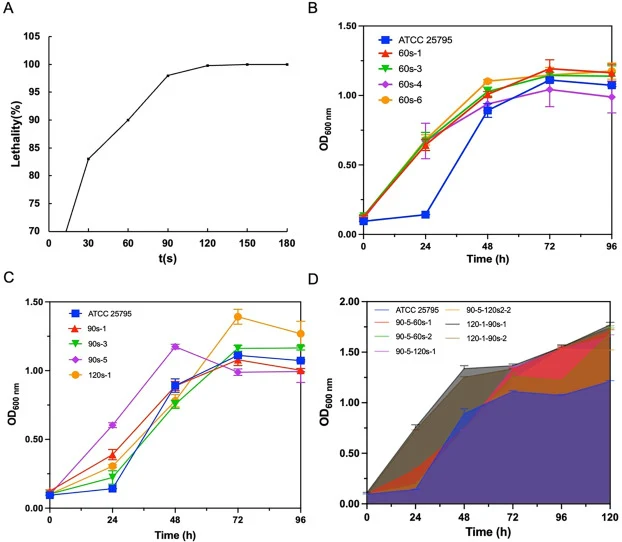
ARTP是一种基于射频大气压辉光放电等离子体的全细胞诱变工具,处理温度低,突变率高于紫外线辐射或化学诱变剂(Ottenheim et al., 2018; Zhang et al., 2014)。将过夜培养的新金色分枝杆菌ATCC 25795细胞涂布于无菌金属载体上进行等离子体处理。细胞处理不同时间间隔(0、30、60、90、120、150和180秒)以确定最佳诱变条件。等离子体处理后,将细胞转移至1 mL M7H9中制备细胞悬液,随后涂布于琼脂平板,37 °C培养7天。初筛时,将ARTP处理细胞(60、90和120秒)接种至96孔板中的150 μL M7H9中,37 °C培养7天。将生长改善的菌落转移至5 mL M7H9中培养7天以绘制生长曲线。二次诱变采用相同ARTP处理条件,选择7天后菌落直径明显较大的菌落进行生长速率评估。遗传稳定性评估时,将所选突变体划线于LB琼脂上,37 °C培养4天。随后将单菌落接种至5 mL M7H9中培养24小时,接着连续进行四次1:500传代。长期生长评估通过将培养物接种至50 mL M7H9中(初始OD₆₀₀=0.1),37 °C、220 rpm培养7天,定期监测OD₆₀₀。
【数据】ARTP处理时间:0、30、60、90、120、150、180秒;初筛处理时间:60、90、120秒;96孔板体积:150 μL M7H9;培养温度:37 °C;培养时间:7天;传代培养:5 mL M7H9、24小时、四次1:500传代;长期生长初始OD₆₀₀:0.1;长期生长体积:50 mL M7H9;长期生长转速:220 rpm
2.3 新金色分枝杆菌ATCC 25795中KstD和KshA1N的表征
系统测定了酶动力学参数(包括Km、Kcat和Kcat/Km)以及不同底物条件下的底物转化率。ATCC 25795中AD和9-OHAD的脱氢反应由多个KstD同源物催化。将相关酶编码基因(KstD1、KstD2、KstD3和KshA1N)克隆至pET28a(+)载体的SalI位点,并在大肠杆菌BL21(DE3) star中表达。制备粗细胞无细胞提取物用于酶活性测定,以鉴定ATCC 25795中的关键KstD。反应在30 °C下进行,使用吩嗪硫酸甲酯(PMS)和2,6-二氯酚靛酚(DCPIP)作为电子受体。反应体系(总体积200 μL)包含:50 mM Tris-HCl(pH 7.0)、1.5 mM PMS、40 μM DCPIP、25 μg无细胞提取物蛋白、500 μM底物(AD、ADD或9-OHAD,溶于2%甲醇)。通过监测600 nm处DCPIP的还原(ε₆₀₀ = 18.7 × 10³ M⁻¹cm⁻¹)测定酶活性,以DCPIP还原速率计算比活性。一个毫单位(mU)定义为每分钟催化1 nM DCPIP还原的酶量。比活性以nmol min⁻¹ mg⁻¹蛋白(mU mg⁻¹)表示。
【数据】反应温度:30 °C;反应体积:200 μL;缓冲液:50 mM Tris-HCl(pH 7.0);PMS浓度:1.5 mM;DCPIP浓度:40 μM;蛋白量:25 μg;底物浓度:500 μM;甲醇浓度:2%;检测波长:600 nm;ε₆₀₀:18.7 × 10³ M⁻¹cm⁻¹;酶活单位定义:1 mU = 1 nM DCPIP/min
2.4 CRISPR/Cas12a辅助的新金色分枝杆菌ATCC 25795基因组编辑
使用CRISPR/Cas12a系统进行靶向基因缺失。设计针对kasB、kshA1N、kstD1、kstD2和kstD3的crRNA并克隆至pCR-Hyg载体。从宿主基因组扩增约500 bp上下游同源臂,通过重叠PCR融合生成dsDNA供体片段。每次缺失,将700 ng供体DNA与200 ng pCR-RNA及pJV53-Cas12a质粒共电穿孔至感受态细胞。在含10 ng/mL ATc的7H9中30 °C恢复3–4小时后,将转化子涂布于含适当抗生素和50 ng/mL ATc的选择性LB琼脂上。正常大小菌落通过菌落PCR验证。温度敏感的pJV53-Cas12a复制子通过在无抗生素7H9中42 °C培养12–24小时进行消除,随后传代2–3次。分离单菌落,通过比较选择性与非选择性平板上的生长确认质粒丢失。
【数据】同源臂长度:约500 bp;供体DNA量:700 ng;pCR-RNA量:200 ng;ATc浓度:10 ng/mL(恢复)、50 ng/mL(平板);恢复温度:30 °C;恢复时间:3–4小时;质粒消除温度:42 °C;消除时间:12–24小时;传代次数:2–3次
2.5 KstDs、KshA1N、侧链降解酶、NAD⁺供给酶和Mce转运体的过表达
使用pMV261载体过表达甾体代谢相关酶,每个基因置于复合启动子hsp60控制下。通过Gibson Assembly构建重组过表达质粒。
【数据】载体:pMV261;启动子:hsp60;组装方法:Gibson Assembly;原文未详述其他参数
2.6 分析方法
采用配备反相C18柱(250 mm × 4.6 mm,GL Sciences,Inertsil ODS-3,日本)的高效液相色谱(HPLC,Thermo Scientific Ultimate 3000)定量AD、ADD和9-OHAD产量。流动相为乙腈:水(70:30,v/v),流速0.5 mL/min。柱温维持30 °C,检测波长254 nm。AD、ADD和9-OHAD的保留时间分别为7.2 min、6.1 min和2.8 min。
【数据】色谱柱:C18柱(250 mm × 4.6 mm,Inertsil ODS-3);流动相:乙腈:水(70:30,v/v);流速:0.5 mL/min;柱温:30 °C;检测波长:254 nm;AD保留时间:7.2 min;ADD保留时间:6.1 min;9-OHAD保留时间:2.8 min
研究结果
3.1 新金色分枝杆菌ATCC 25795 ARTP全基因组突变
基于菌落计数,如图1A所示,60秒暴露导致>90%致死率,而90秒或更长时间处理仅产生少量菌落,致死率((未处理菌落数-ARTP处理菌落数)/未处理菌落数×100%)接近100%。致死率 = (未处理菌落数 - ARTP处理菌落数) / 未处理菌落数 × 100%。为进一步提高菌株性能(图1B),对菌株90 s-5和120 s-1进行第二轮ARTP处理,时间分别为60、90和120秒。生长曲线显示,突变体120-1-90 s-1(源自菌株120 s-1经90秒诱变)生长速率显著更快(图1C),在24小时内OD₆₀₀达到约0.9,在相同初始OD₆₀₀下比其他突变体高近2–5倍。该菌株还维持了约48小时的延长的对数期。遗传稳定性结果表明,突变体保持显著快于亲本的生长速度,并表现出增强表型的稳定遗传(图1D)。因此,该突变体120-1-90 s-1被命名为Mn F01,作为后续分层工程的改良底盘,表明底盘进化构成甾体生物合成系统代谢工程的第一层。
【数据】ARTP暴露时间:60秒致死率>90%;90秒及以上致死率接近100%;第二轮处理时间:60、90、120秒;突变体120-1-90 s-1在24小时内OD₆₀₀≈0.9;比其他突变体高2–5倍;延长的对数期:约48小时;遗传稳定性:4天LB琼脂、24小时M7H9、四次1:500传代
3.2 通过kasB敲除增强底物摄取
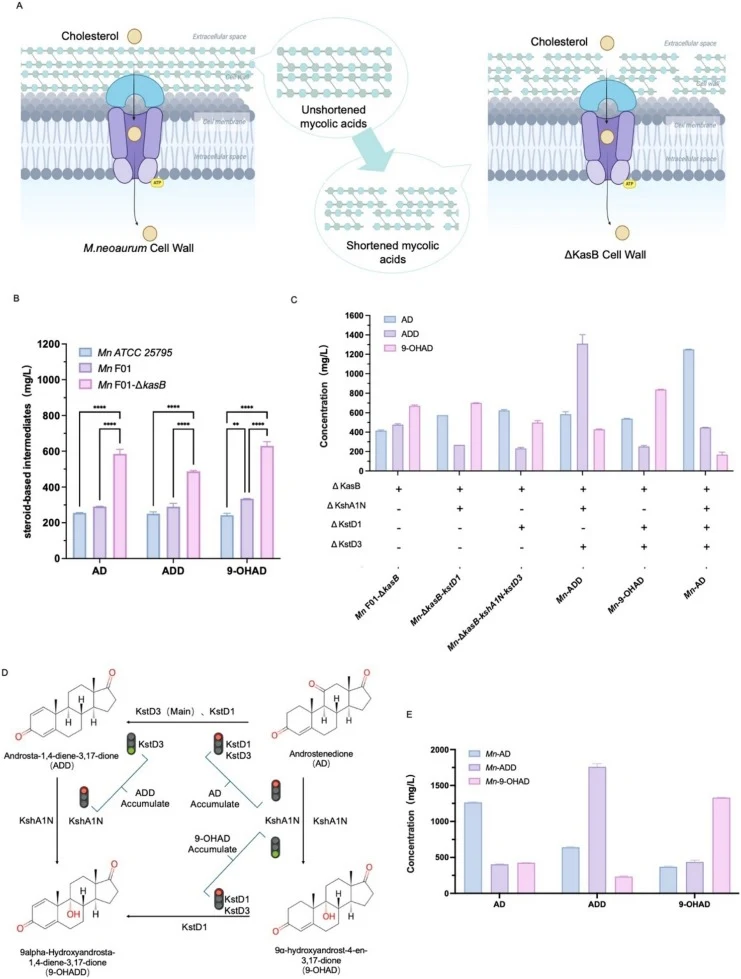
甾体代谢包括三个主要模块:甾体摄取、侧链降解和甾体核降解。底物进入细胞的速率是发酵或全细胞催化中生物催化效率的关键决定因素。细胞包膜合成的改造改善了植物甾醇生物转化,突显了底物可及性在新金色分枝杆菌中的重要性(Xiong et al., 2022)。分枝杆菌物种具有低渗透性细胞包膜,约60%由分枝菌酸组成,该结构在胆固醇摄取和利用中起关键作用(Liu et al., 2018b)。KasB是一种β-酮脂酰-酰基载体蛋白合酶,对分枝菌酸生物合成至关重要。研究发现,KasB缺失改变了细胞壁分枝菌酸组成并增加了细胞膜通透性(Xiong et al., 2020),可增强甾醇底物进入细胞。因此,通过敲除kasB基因可能增加Mn F01的底物摄取。在耻垢分枝杆菌中,CRISPR/Cas12a辅助工具可实现高效基因组编辑并促进多种产物生产(Liang et al., 2025; Yan et al., 2017)。此处,使用HR辅助的CRISPR/Cas12a系统敲除突变株Mn F01中的kasB基因(图2A)。目标片段(1–2 kb)实现了超过70%的高阳性率。在另一项工作中,NHEJ辅助的CRISPR/Cas12a系统也显示出高基因敲除效率(Liu et al., 2022)。进行发酵分析以定量菌株Mn F01-ΔkasB中关键甾体中间体(AD、ADD和9-OHAD)的总产量。与亲本突变体相比,Mn F01-ΔkasB中这些甾体中间体的积累显著增强(图2B)。AD和9-OHAD产量几乎翻倍,分别达到580 mg/L和625 mg/L。kasB缺失通过削弱细胞包膜屏障显著增强甾体中间体生产(Xiong et al., 2020)。改变细胞壁结构有效改善了细胞利用疏水性甾体底物的能力,从而为下游甾体代谢流提供了更丰富的前体池。
【数据】目标片段大小:1–2 kb;阳性率:>70%;AD产量:580 mg/L;9-OHAD产量:625 mg/L;相比亲本:几乎翻倍
3.3 通过调控kstDs和kshA1N表达重定向甾体中间体合成
植物甾醇是微生物生产高价值甾体中间体的低成本前体。然而,由于代谢途径复杂,新金色分枝杆菌高效生物转化植物甾醇为一种或多种C19甾体前体仍具挑战性。工程化新金色分枝杆菌选择性积累野生型菌株不能高效生产的特定甾体中间体,可简化下游产品回收和纯化,从而提高甾体药物生产的整体经济可行性。KstDs活性对新金色分枝杆菌ATCC 25795中AD、ADD和9-OHAD的积累至关重要(Zhao et al., 2021)。AD、ADD和9-OHAD位于核降解的初始部分。ADD和9-OHAD分别由AD经KstDs催化A环C1-C2双键引入和Ksh催化B环9α-C羟基化衍生而来(图3B)。KstD是将AD转化为ADD的关键酶(Rohman & Dijkstra, 2021)。KstD1或KstD3缺失导致AD和9-OHAD积累(Yao et al., 2014)。基因组和酶分析表明,新金色分枝杆菌HGMS2中AD积累可能源于KstD和Ksh活性弱及拷贝数低(Wang et al., 2020)。同时缺失KshA和KstD的双突变体导致AD成为主要甾体降解中间体(Galán et al., 2017; García et al., 2012)。在新金色分枝杆菌ATCC 25795中,单途径工程无法实现目标中间体的精确富集(Fernández-Cabezón et al., 2018)。由于残余KstD活性,单一kstD基因靶向缺失无法实现最大9-OHAD积累(Yao et al., 2014)。我们首先评估了三种KstDs同工酶(KstD1、KstD2和KstD3)的催化活性,以精确工程化新金色分枝杆菌ATCC 25795中的甾体代谢途径。使用BL21(DE3) star粗细胞无细胞提取物评估这些酶(蛋白浓度见补充表S2)。测定了对不同甾体底物(AD、ADD和9-OHAD)的比活性和转化率(补充表S3)。对于AD底物,KstD1表现出最高催化效率。对于9-OHAD,KstD1显示出优越的催化效率和转化率,而KstD3和KstD2效果较差,表明KstD1是负责9-OHAD转化为9-OHADD的主要酶。基于此,提出了定向合成策略:缺失kstD1、kstD3和kshA1N用于AD积累;缺失kstD1、kstD3并过表达kshA1N用于9-OHAD积累;缺失kshA1N并过表达kstD3用于ADD积累。基于Mn F01-ΔkasB构建缺失突变体以工程化菌株进行比较和靶向产物积累:Mn-ΔkasB-kstD1、Mn-ΔkasB-kshA1N-kstD3、Mn-ADD(ΔkasB-kshA1N)、Mn-9-OHAD(ΔkasB-kstD1-kstD3)和Mn-AD(ΔkasB-kshA1N-kstD1-kstD3)。发酵分析(图2C)显示,缺失kshA1N(编码催化AD至9-OHAD和ADD至9-OHAD的酶)显著增加ADD产量至1.30 g/L,将通量重定向至脱氢途径。Mn-9-OHAD显示9-OHAD显著增加至0.84 g/L,同时ADD显著下降,表明脱氢途径阻断使AD优先进入羟基化途径。在Mn-AD中,AD达到1.25 g/L,同时9-OHAD产量显著下降。为生成能选择性积累甾体中间体的新金色分枝杆菌ATCC 25795菌株,我们在先前构建的菌株中过表达kstD3或kshA1N(图2D)。以10 g/L植物甾醇为底物,摇瓶发酵结果显示(图2E),携带pMV261-kstD3的Mn-ADD实现了超过1.75 g/L的ADD产量,代表显著改善。携带pMV261-kshA1N的Mn-9-OHAD也表现出9-OHAD产量显著升高,达到1.33 g/L,这些结果构成框架的核心工程层。(见表1)
【数据】ADD产量(ΔkshA1N):1.30 g/L;9-OHAD产量(Mn-9-OHAD):0.84 g/L;AD产量(Mn-AD):1.25 g/L;植物甾醇底物浓度:10 g/L;ADD产量(Mn-ADD + pMV261-kstD3):>1.75 g/L;9-OHAD产量(Mn-9-OHAD + pMV261-kshA1N):1.33 g/L
3.4 过表达侧链降解酶对甾体中间体积累的影响
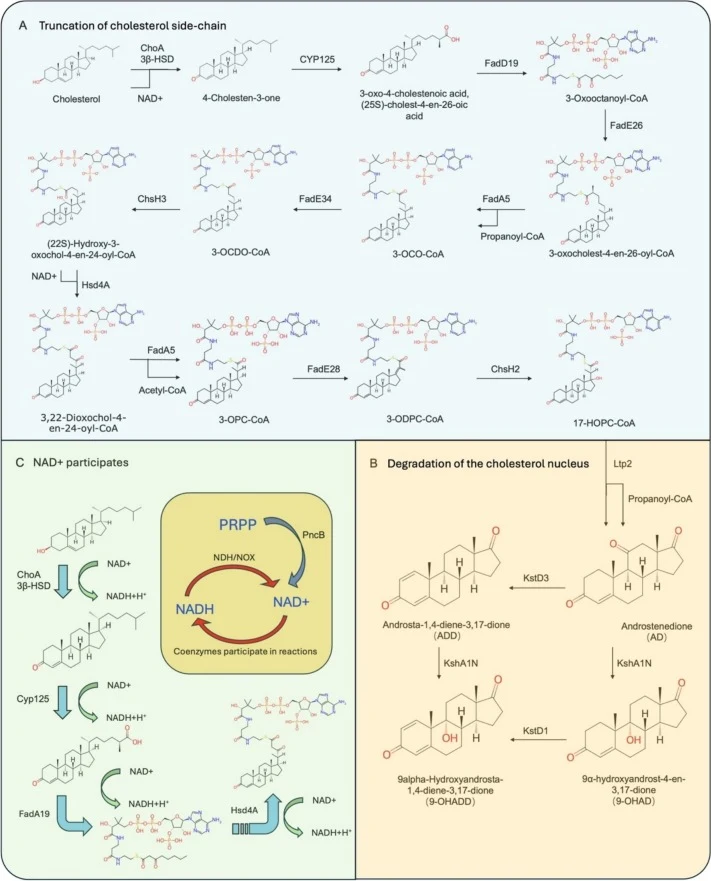
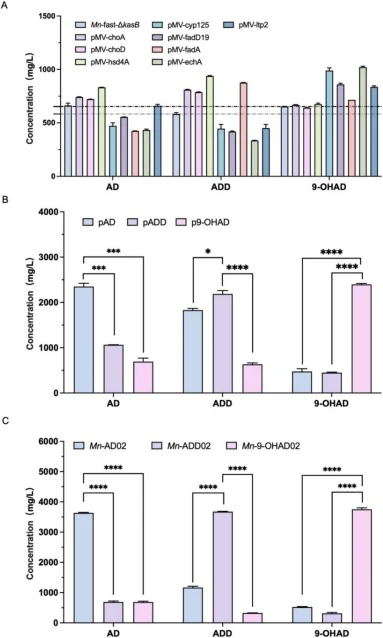
胆固醇侧链降解代表代谢途径中的关键上游步骤……(结果节选至此)
讨论与解读
本研究建立了分层系统代谢工程框架,用于理性构建高性能新金色分枝杆菌细胞工厂以实现选择性甾体生物合成。ARTP诱变产生了生物量积累提高约五倍的快速生长底盘,随后作为多级工程的基础。细胞壁通透性、代谢流重分配、甾体侧链降解、胞内辅因子再生和甾醇转运的依次优化,实现了碳通量向AD、ADD和9-OHAD的精确重定向,获得了高产物滴度和摩尔转化率。重要的是,工程模块的比较表明,胞内辅因子可用性和底物可及性均可限制植物甾醇生物转化。底物转运体工程获得了更强的改善效果,表明在本文所检测的高度工程化菌株中,甾醇转运是进一步提高产物形成的特别有效的上游靶点。微生物转化低成本植物甾醇为靶向C19甾体中间体,提供了通往高价值药物构建块的可持续路线,同时减少了对资源密集型化学合成的依赖。此外,工程化新金色分枝杆菌选择性积累特定甾体中间体的能力可简化下游……(讨论节选至此)
编译者解读:该研究的方法论价值在于"分层"二字——不是一次性堆叠改造,而是按底盘进化→通透性→代谢流→辅因子→转运体的逻辑逐层递进,每层解决一个明确瓶颈。三种产物特异性菌株共用同一底盘和上游模块,仅在下游分流酶组合上做文章,这种模块化思路对合成生物学中"一底盘多产物"的平台化构建有直接借鉴意义。局限在于研究止步于摇瓶与补料分批规模,工业化放大时溶氧、剪切力和底物传质等工程因素尚未涉及;此外,甾醇转运体的具体分子机制和调控节点仍有待深入解析。
参考来源
期刊:Bioresource Technology, 2026
DOI: 10.1016/j.biortech.2026.136003
DOI: 10.1016/j.biortech.2026.136003