来源:Iterative dissolved-oxygen control combined with growth–production coordination enables efficient erythritol biosynthesis in Yarrowia lipolytica under high-temperature stress(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
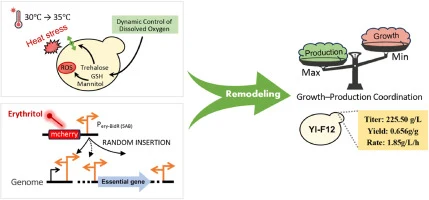
高温发酵可降低冷却能耗、减少污染风险,但高温会引发代谢重编程,导致生长与产量失衡。本研究以高产赤藓糖醇工业解脂耶氏酵母菌株YL为对象,系统考察了高温下生长与赤藓糖醇合成的权衡关系,鉴定出一种热诱导的"异常生长激增效应"(AGSE),并据此建立了迭代溶氧优化策略,获得在35°C下稳定生长的菌株G5。进一步利用赤藓糖醇响应型双向杂合启动子Pery-BidR (5AB) 将赤藓糖醇合成与生长基因表达耦合,筛选出协同菌株F12,赤藓糖醇滴度较亲本提高179.3%,达225.50 g/L。
研究背景
高温发酵在工业生物技术中日益受到重视——它能降低冷却能耗、减少染菌风险、改善过程经济性。因此,构建在高温下仍能稳健生长和生产的微生物成为可持续生物制造的关键目标。但高温会引发广泛的代谢重编程,破坏细胞氧化还原稳态,并将碳前体导向生物量相关过程而非产物合成。对于乙醇等生长偶联型产物,耐热性提升往往直接增强生产力;但对于有机酸、萜类、多元醇等众多非生长偶联代谢物,升温常伴随代谢物积累下降,尽管生物量形成增加。因此,在高温条件下实现非生长偶联化合物的高效生物合成,是耐热生产底盘开发的核心挑战。
解脂耶氏酵母(Yarrowia lipolytica)凭借强大的TCA循环和宽泛的底物谱,已成为生产糖醇、有机酸、脂质及高值化学品的重要底盘。在30°C下,多层代谢工程——包括过表达关键途径酶、敲除竞争途径、辅因子工程等——已使赤藓糖醇达到接近理论转化率。然而,该菌传统上被视为严格好氧且温度敏感,多数菌株在32°C以上无法正常生长。高温下的生长-产量权衡机制尚不清楚,制约了耐热高产菌株的理性设计。
研究方法
菌株、培养基与培养条件
本研究所用菌株与质粒列于表S4。亲本菌株YL是本实验室此前通过紫外诱变结合表型筛选获得的高产赤藓糖醇解脂耶氏酵母菌株。YL保存于本实验室菌种保藏库,作为本研究所有后续适应性进化和基因工程实验的亲本菌株。
种子培养使用两种酵母提取物-葡萄糖培养基。YD1培养基用于一级种子培养,含200 g/L葡萄糖和20 g/L酵母提取物。YD2培养基用于二级种子培养,含150 g/L葡萄糖和15 g/L酵母提取物。YD1和YD2培养基使用前于115°C灭菌15 min。
赤藓糖醇发酵培养基含300 g/L葡萄糖、5 g/L酵母提取物、0.25 g/L MgSO4·7H2O、0.25 g/L KH2PO4和5 g/L柠檬酸铵。
D-丝氨酸筛选所用选择培养基含20 g/L葡萄糖、1.7 g/L不含硫酸铵和氨基酸的酵母氮源(YNB)、5 g/L L-脯氨酸和2 g/L D-丝氨酸。固体选择培养基额外加入20 g/L琼脂。培养基使用前于115°C灭菌15 min。
常规种子制备:将甘油保存的菌株接种至YD1培养基,30°C、200 rpm培养24 h获得一级种子。随后将一级种子以2%(v/v)转接至YD2培养基,相同条件下培养制备二级种子。除另有说明外,二级种子以10%(v/v)接种至发酵培养基。摇瓶和5-L生物反应器发酵的详细培养条件见下文相应章节。
本研究所用酵母裂解缓冲液含2%(v/v)Triton X-100、2 g/L NaOH、10 mM Tris-HCl(pH 8.0)和0.292 g/L EDTA。
【数据】培养基:YD1含200 g/L葡萄糖+20 g/L酵母提取物;YD2含150 g/L葡萄糖+15 g/L酵母提取物;发酵培养基含300 g/L葡萄糖+5 g/L酵母提取物+0.25 g/L MgSO4·7H2O+0.25 g/L KH2PO4+5 g/L柠檬酸铵;选择培养基含20 g/L葡萄糖+1.7 g/L YNB+5 g/L L-脯氨酸+2 g/L D-丝氨酸;灭菌:115°C、15 min;一级种子:30°C、200 rpm、24 h;接种量:一级转二级2%(v/v),二级转发酵10%(v/v);裂解液:2% Triton X-100+2 g/L NaOH+10 mM Tris-HCl(pH 8.0)+0.292 g/L EDTA
产物检测
使用高效液相色谱(1260 Infinity,Agilent)测定发酵上清液中的赤藓糖醇和葡萄糖。流动相:5 mM硫酸;色谱柱:Aminex HPX-87H离子排斥色谱柱;柱温:50°C;流速:0.6 mL/min;检测器:1260 RID。
【数据】仪器:HPLC 1260 Infinity(Agilent);流动相:5 mM硫酸;色谱柱:Aminex HPX-87H;柱温:50°C;流速:0.6 mL/min;检测器:1260 RID
质粒与菌株构建
本研究所用靶基因和DNA片段使用PrimeSTAR Max DNA Polymerase(Takara Bio,北京,中国)扩增,基因特异性引物由GENEWIZ Biotechnology Co., Ltd.(苏州,中国)合成。杂合赤藓糖醇响应型双向启动子Pery-BidR (5AB) 由GENEWIZ化学合成。赤藓糖醇响应型报告构建体pMCSCen1-mCherry含CEN/ARS、DSDA、Amp和Pery-BidR (5AB)-mCherry-tURA3盒,详见补充表S4。重组质粒使用TIANprep Pure Mini Plasmid Kit(TIANGEN,北京,中国)纯化,使用前由GENEWIZ进行Sanger测序验证。
基因敲除和过表达菌株使用解脂耶氏酵母CRISPR/Cas9介导的基因组编辑系统构建,参照此前建立的流程,使用适当的基因特异性靶向序列和修复模板。敲除菌株包括YL-Man-KO(Δmdh,Δmpd)、YL-Tre-KO(Δtps1,Δtps2)和YL-GSH-KO(Δgsh1,Δgsh2)。相应的过表达菌株携带pTEF1驱动的GSH1、GSH2、TPS1、TPS2或MDH表达盒,详见补充表S4。正确编辑的克隆经PCR和Sanger测序验证。
含Pery-BidR (5AB) 的生长-产量耦合元件通过电穿孔导入解脂耶氏酵母并随机整合至基因组。转化子在选择培养基上恢复,基于mCherry荧光进行筛选。随机整合流程迭代进行,以产生具有多样生长和产量表型的突变体文库。采用染色体步移策略,参照已建立的基因组步移方法,鉴定所选菌株F12中Pery-BidR (5AB) 的基因组整合位点。
【数据】聚合酶:PrimeSTAR Max DNA Polymerase;质粒纯化:TIANprep Pure Mini Plasmid Kit;敲除菌株:YL-Man-KO(Δmdh,Δmpd)、YL-Tre-KO(Δtps1,Δtps2)、YL-GSH-KO(Δgsh1,Δgsh2);过表达基因:GSH1、GSH2、TPS1、TPS2、MDH(pTEF1驱动);整合方式:电穿孔随机整合;筛选标记:mCherry荧光;验证方法:PCR和Sanger测序;整合位点鉴定:染色体步移
1-L摇瓶发酵
对于1-L摇瓶发酵,将1 mL甘油保存的菌株接种至含YD1培养基的1-L Erlenmeyer瓶中,30°C、200 rpm培养24 h获得一级种子。随后将2%(v/v)一级种子转接至含适量YD2培养基的较大Erlenmeyer瓶中,相同条件下培养制备二级种子。最后将10%(v/v)二级种子接种至1-L挡板Erlenmeyer瓶中的发酵培养基,在指定温度下于旋转摇床200 rpm培养96–120 h。由于AGSE的发生需要相对较高的溶氧水平,摇瓶条件下生长激增会减弱。但相对于高温下通常观察到的显著生长抑制,AGSE菌株仍表现出明显的生长优势。在摇瓶规模触发AGSE时,需注意二级种子也应在挡板Erlenmeyer瓶中培养。
【数据】一级种子:1 mL甘油菌接种至1-L瓶YD1培养基,30°C、200 rpm、24 h;二级种子:2%(v/v)转接YD2培养基,相同条件;发酵:10%(v/v)接种至1-L挡板瓶,200 rpm、96–120 h;AGSE触发条件:需较高溶氧,二级种子需挡板瓶培养
5-L生物反应器发酵
5-L生物反应器发酵(T&J Bioengineering)遵循与1-L摇瓶相同的种子制备流程。生物反应器装液比为3/5。灭菌前检查所有组件——包括带电解液的DO探头、pH探头和配件,系统于121°C灭菌30 min。冷却至约50°C后,连接无菌空气和辅助组件(如冷凝器和加热夹套)。预设发酵参数(温度、搅拌、通气),DO探头使用最大硬件设置(700 rpm、0.06 MPa、10 NL/min通气)校准至100%饱和度。DO校准后,将二级种子以10%(v/v)接种比接种至生物反应器启动发酵。初始操作参数调整为维持DO在系统最大容量的约40–50%(通气4–6 NL/min,搅拌500–600 rpm,罐压约0.02 MPa)。随着培养生长和DO自然下降,持续控制DO在设定范围内直至发酵结束(标准条件下,葡萄糖完全消耗时终止发酵。若120 h后仍有大量残糖,则在120 h终止)。DO控制窗口可根据温度、搅拌和通气调整;30°C时,最佳DO范围为12–18%。值得注意的是,高溶氧从热胁迫抑制中恢复细胞生长需要修改DO控制策略。完成二级种子接种后,立即调整搅拌速度和通气速率,使DO在整个发酵过程中维持在相应目标范围内直至结束。
【数据】反应器:5-L(T&J Bioengineering);装液比:3/5;灭菌:121°C、30 min;DO校准:700 rpm、0.06 MPa、10 NL/min通气至100%饱和度;接种比:10%(v/v);初始DO:40–50%最大容量(通气4–6 NL/min,搅拌500–600 rpm,罐压约0.02 MPa);30°C最佳DO:12–18%;终止条件:葡萄糖耗尽或120 h
基于迭代溶氧优化的高温进化
高温适应性进化在5-L生物反应器中进行,以菌株YL为亲本。所有进化实验遵循与5-L生物反应器发酵相同的操作流程。在31°C、32°C、33°C、34°C和35°C获得的进化菌株依次命名为YL-EI、YL-EII、YL-EIII、YL-EIV和YL-EV。简言之,YL首先在预设温度31°C下接种发酵。初始操作参数调整为维持溶氧(DO)在系统最大容量的约40–50%(通气4–6 NL/min,搅拌500–600 rpm,罐压约0.02 MPa)。随着培养生长和DO自然下降,DO持续控制在设定范围内。
【数据】进化温度梯度:31°C→32°C→33°C→34°C→35°C;菌株命名:YL-EI至YL-EV;初始DO:40–50%最大容量(通气4–6 NL/min,搅拌500–600 rpm,罐压约0.02 MPa)
研究结果
高溶氧从热胁迫抑制中恢复细胞生长
传统上,解脂耶氏酵母被认为是严格好氧酵母,大多数菌株对温度敏感,在32°C以上无法正常生长。在此前的工作中,紫外诱变的解脂耶氏酵母菌株(YL)在30°C、最佳溶氧(DO%:12–18)条件下实现了接近理论值的赤藓糖醇转化率,滴度达215.13 g/L,得率为0.665 g/g葡萄糖(图S1a和表S1)。然而,当温度升高且溶氧条件变化时,YL表现出显著的生长与产量权衡(图1a、1b和图S1)。当溶氧维持在12%–18%时,升高温度显著抑制YL的生长,伴随赤藓糖醇产量逐渐下降(图1a、1b和图S1b–S1f)。值得注意的是,在31–33°C将DO范围提高至36%–42%不仅缓解了热诱导的生长抑制,还引起生物量积累的显著增加。在本研究所用的5-L生物反应器配置下,类似表型在更高温度下需要更高的DO水平,34°C时约需54%–60% DO,35°C时需72%–100% DO。我们将此表型操作性地定义为异常生长激增效应(AGSE),其特征是最大OD600相对于相同温度下热抑制、低DO条件增加五倍以上,同时赤藓糖醇产量显著降低。该表型在三次生物学独立发酵中可重复观察到。由于本实验使用工业YL菌株,AGSE目前应被视为菌株和工艺条件相关的表型,其是否在其他解脂耶氏酵母遗传背景中发生仍有待确定。
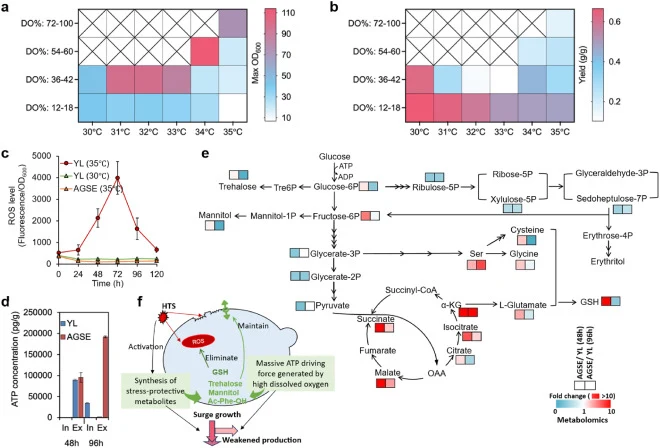
为进一步研究AGSE,我们聚焦于高温高DO下过量ATP生成和ROS水平升高的后果。值得注意的是,AGSE条件下细胞内ROS保持极低水平,表明存在高效但尚未鉴定的ROS清除机制(图1c)。同时,在AGSE下,细胞内ATP水平从发酵早期(48h)到晚期(96h)均保持极低,表明快速ATP消耗是加速生长的主要驱动力(图1d)。多组学分析显示,AGSE条件下中心碳代谢相关基因适度上调,而核心三羧酸(TCA)循环和谷胱甘肽生物合成途径强烈增强(图1e和图S2)。在中心碳代谢的关键节点,甘露醇和海藻糖表现出早期大量积累随后消耗的特征模式(图1e)。同时,谷胱甘肽及相关代谢物作为已知的细胞内抗氧化剂和兼容性溶质,可能有助于在热胁迫下维持氧化还原平衡和细胞保护。它们在AGSE条件下的积累与先前研究提出的在缓解氧化应激、维持细胞稳定性和支持胁迫适应中的潜在作用一致。这些结果表明,胁迫保护性代谢物的分泌是维持AGSE的基本基础。为进一步验证这一结论,我们敲除了参与谷胱甘肽和甘露醇生物合成的关键基因,这损害了AGSE诱导条件下的生长表型,伴随细胞内ROS水平显著升高,并导致膜流动性增加(图S3)。这些结果表明,胁迫保护性代谢物生物合成有助于在高温高氧条件下维持稳健生长。总之,高温联合高溶氧与ATP相关代谢活性增加、氧化还原状态改变以及胁迫保护性代谢物积累增强相关。这些代谢变化伴随生物量形成增加和赤藓糖醇产量降低,表明在AGSE条件下细胞资源可能优先分配到生长和胁迫适应而非赤藓糖醇生物合成(图1f)。
【数据】亲本YL:30°C、DO 12–18%、滴度215.13 g/L、得率0.665 g/g葡萄糖;AGSE触发DO:31–33°C需36%–42%,34°C需54%–60%,35°C需72%–100%;AGSE定义:最大OD600较同温度低DO条件增加>5倍;ROS:AGSE下极低;ATP:48h和96h均极低;敲除菌株:Δgsh1/Δgsh2/Δmdh/Δmpd/Δtps1/Δtps2;敲除后:ROS升高、膜流动性增加
基于迭代溶氧优化的高温进化在35°C维持接近最大赤藓糖醇产量
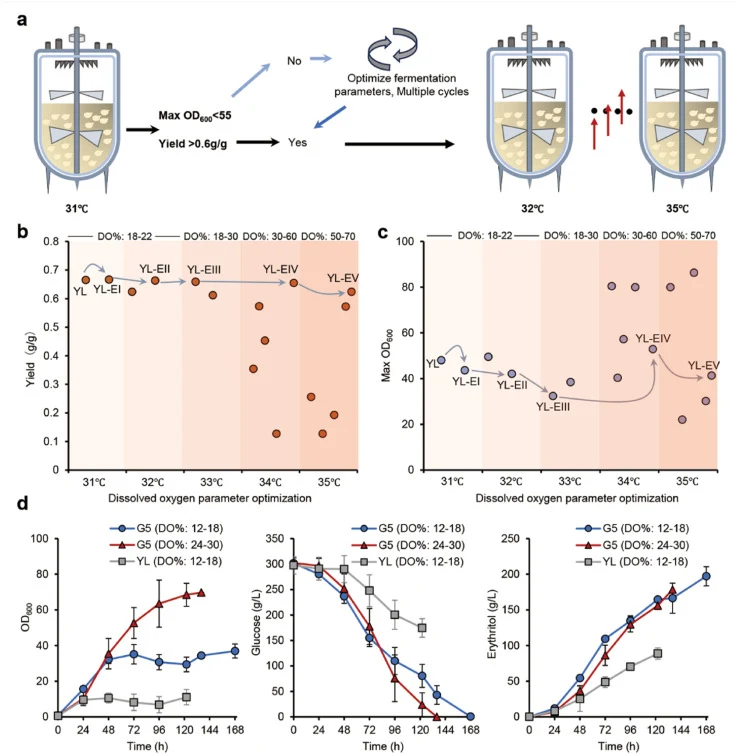
尽管提高溶氧可缓解热诱导的生长抑制,但过量氧气驱动胁迫保护性代谢物过量生产,导致赤藓糖醇得率显著下降(图S1h、i、j、m、o)。因此,需要适当的溶氧水平以在高温下维持生长同时最大化赤藓糖醇产量。基于此原则,通过逐步升高温度结合迭代DO调节进行实验室进化,以获得耐高温、高产赤藓糖醇菌株(图2a)。在31°C–32°C,热诱导抑制相对温和,YL在DO控制范围12%–18%下进行两轮高温进化,获得菌株YL-EII,在32°C保持0.663 g/g葡萄糖的高赤藓糖醇得率(图2b、2c和图S4a)。当温度升至33°C时,需要更高的DO控制窗口(18%–30%)以维持生长,通过优化不同DO控制策略获得稳定高产菌株YL-EIII(图2b、2c和图S4b)。当温度进一步升至34°C和35°C时,需要在更高DO范围内进行多轮DO参数测试和优化(图2b、2c)。在这些温度下,DO不足常导致细胞生长和赤藓糖醇产量同时下降(图S4c、e、f)。值得注意的是,氧气可用性也被报道为非热胁迫条件下影响解脂耶氏酵母赤藓糖醇生产的重要因素,突显了氧气供应对高效赤藓糖醇生物合成的普遍重要性。在此,我们进一步表明溶氧与升高温度相互作用,影响细胞生长与赤藓糖醇生产之间的平衡。最终,在DO控制范围60%–68%下获得相对稳定的高产进化菌株YL-EIV(图S4g)。为进一步稳定所获得的高温适应生长和赤藓糖醇生产表型,YL-EV在35°C下进行了额外18轮连续适应性实验室进化,整个进化过程DO维持在50–70%。所得群体命名为YL-EV-18(表S4),在35°C下赤藓糖醇得率达0.620 g/g葡萄糖(图S5)。随后单菌落分离和筛选获得最佳克隆YL-EV-18-G5(G5)(图S6)。值得注意的是,G5后续发酵表征所用的较低DO范围与ALE期间使用的高DO条件不同。在DO范围12%–18%下,YL-EV-18-G5在35°C下产生210.68 g/L赤藓糖醇,得率0.625 g/g葡萄糖(图2d)。然而,其分批发酵周期延长了近72h(图2d和图S1a),这对工业发酵不利。为缩短发酵周期,提高DO水平以增强整体代谢活性。尽管较高DO范围(24%–30%)加速了代谢并将分批发酵周期缩短至136 h(图2d),但也触发了过度生长,较12%–18% DO条件增加近两倍(图2d)。这种不受控制的生长导致底物过度消耗,赤藓糖醇得率显著降至0.526 g/g葡萄糖。因此,为在高温下保持高赤藓糖醇得率和生产率……
【数据】YL-EII:32°C、DO 12%–18%、得率0.663 g/g葡萄糖;YL-EIII:33°C、DO 18%–30%;YL-EIV:DO 60%–68%;YL-EV-18:35°C、DO 50–70%、18轮ALE、得率0.620 g/g葡萄糖;G5:35°C、DO 12%–18%、滴度210.68 g/L、得率0.625 g/g葡萄糖、周期延长近72h;G5高DO(24%–30%):周期136 h、生物量增加近2倍、得率降至0.526 g/g葡萄糖
通过Pery-BidR (5AB) 实现生长-产量协同
利用杂合赤藓糖醇响应型双向启动子Pery-BidR (5AB) 构建生长-产量耦合元件,通过随机基因组整合将赤藓糖醇合成与生长相关基因表达耦合(图3a)。该策略旨在使高产赤藓糖醇的细胞同时获得生长优势,从而在高温选择压力下富集高性能底盘菌株。通过迭代随机整合和基于mCherry荧光及生长表型的筛选,从突变体文库中获得协同菌株F12(YL-EV-18-G5-GPcEs4-F12)(图3b)。
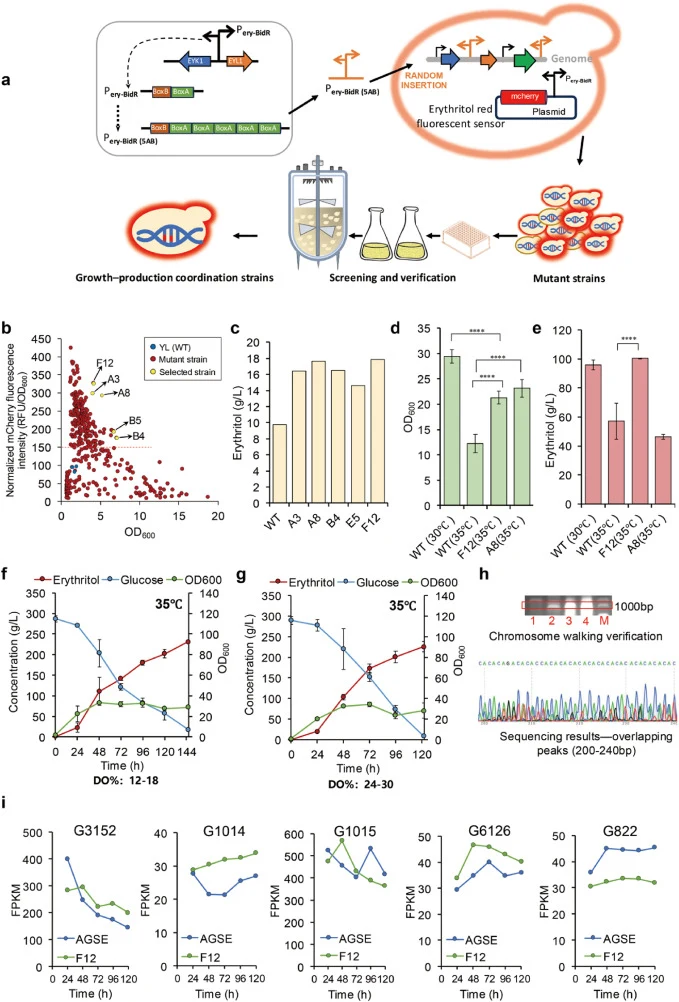
与亲本菌株YL相比,F12的赤藓糖醇滴度提高179.3%,最高浓度达225.50 g/L,得率提高35.34%至0.656 g/g葡萄糖。F12在35°C下表现出优异的生长和产量协同性能。
【数据】启动子:Pery-BidR (5AB);整合方式:随机基因组整合;筛选标记:mCherry荧光;菌株:F12(YL-EV-18-G5-GPcEs4-F12);滴度:225.50 g/L(较YL提高179.3%);得率:0.656 g/g葡萄糖(提高35.34%);温度:35°C
菌株F12耐热性和高产的机制解析
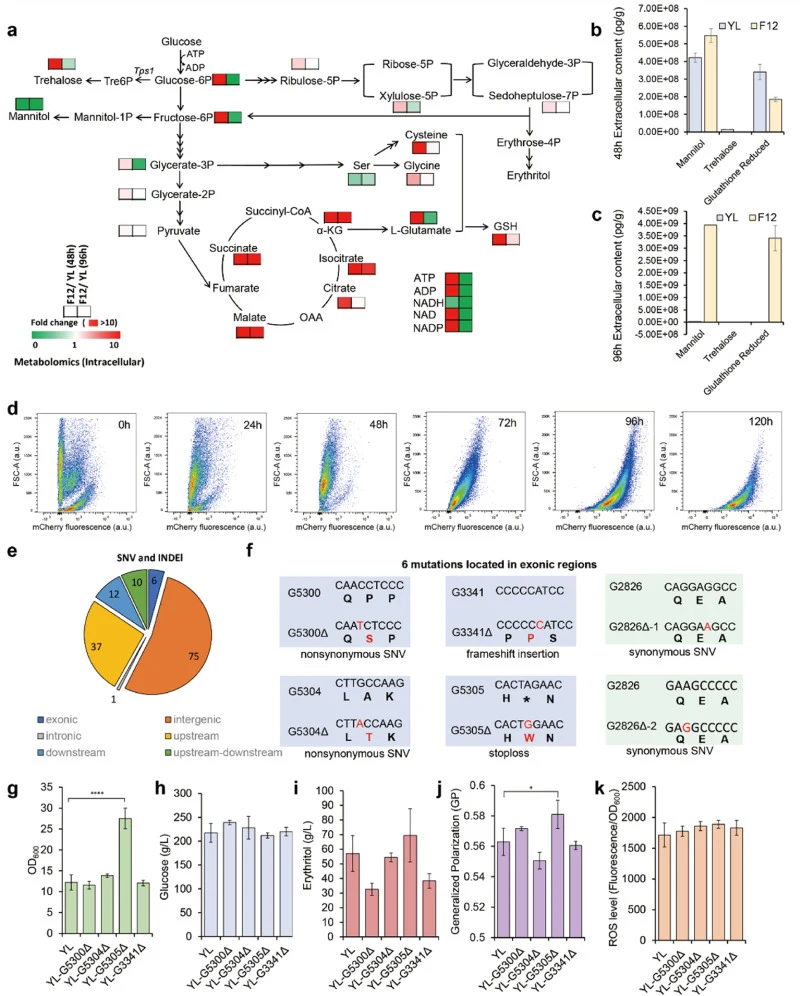
为解析F12耐热高产机制,对35°C下F12的中心代谢变化进行了分析(图4a–c)。F12中关键糖酵解和胁迫相关代谢物发生细胞内重塑(图4a)。在48 h和96 h,甘露醇、谷胱甘肽和海藻糖的胞外积累显著(图4b–c)。F12的高产率与胁迫保护性代谢物合成优化、单细胞赤藓糖醇生产异质性降低以及进化工程中积累的适应性基因组变化相关。
【数据】菌株:F12;温度:35°C;时间点:48 h和96 h;代谢物:甘露醇、谷胱甘肽、海藻糖(胞外积累);机制:胁迫保护性代谢物合成优化、单细胞生产异质性降低、适应性基因组变化
讨论与解读
开发耐热高产工业微生物底盘仍是合成生物学的重大挑战,对解脂耶氏酵母等非常规酵母尤为如此。本研究通过系统分析解脂耶氏酵母高温下的生长-产量行为,鉴定出一种热和氧诱导的异常生长激增效应(AGSE),其中胁迫保护性代谢物的积累与热胁迫下细胞生长增强相关(图1f)。过表达胁迫保护性代谢物生物合成关键基因(包括GSH1、GSH2和TPS1)显著增强了35°C下的生长,但导致赤藓糖醇产量显著下降(图S12),突显了胁迫保护与产物生物合成之间的权衡。代谢组学分析结合外源补充进一步提供了胁迫保护性代谢物网络参与的证据(图S13和表S2)。这些结果表明,通过直接修饰单个耐热基因难以实现高温下生长和产量的协同增强。相比之下,溶氧调节与细胞代谢状态改变相关,在热胁迫下支持增强生长同时维持赤藓糖醇生产(图2a–2c)。此外,氧介导的热抑制生长恢复在多个解脂耶氏酵母菌株中观察到。
编译者解读: 该研究的巧妙之处在于不直接改造耐热基因,而是通过溶氧这一环境变量调控细胞代谢状态,绕开了生长-产量权衡的遗传刚性。Pery-BidR (5AB) 双向启动子将产物合成与生长耦合,使高产细胞在高温选择压力下自富集,这是一种"以环境选择代替理性设计"的底盘进化思路。局限在于AGSE的分子机制尚未完全阐明,且该策略在其它非常规酵母中的普适性有待验证。
参考来源
期刊:Metabolic Engineering, 2026
DOI: 10.1016/j.ymben.2026.102566
DOI: 10.1016/j.ymben.2026.102566