来源:Ultrasound-assisted fermentation improves the antibacterial activity of Lactiplantibacillus plantarum L13 cell-free supernatant under optimized medium conditions(Food Bioscience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
乳酸菌源抗菌系统在食品保鲜中的应用长期受限于抗菌活性不足。本研究以腐败希瓦氏菌CN32为指示菌,通过单因素实验与响应面优化,确定了葡萄糖、酵母提取物和色氨酸为关键培养基组分,获得优化培养基mMRS(39.0 g/L葡萄糖、29.5 g/L酵母提取物、1.95 g/L色氨酸),使抑菌圈直径较初始MRS提高约32%。在发酵24 h时施加144 W单次超声处理15 min,36 h抑菌圈直径进一步提升约9%。上清液调至pH 5.5或6.0后抑菌活性完全消失,pH 4.5下蛋白酶K处理显著降低活性。RNA-seq揭示培养基优化引发的转录变化比超声处理更广泛,渐进响应上调基因富集于群体感应、蛋白分泌与输出、ABC转运蛋白等通路。
研究背景
微生物污染导致的食品腐败是影响食品质量与安全的主要因素,高蛋白食品如水产制品在贮藏过程中尤其易受腐败菌侵袭。腐败希瓦氏菌是冷藏水产品中重要的特定腐败菌之一,常被用作指示菌来评价天然抗菌剂对水产腐败菌的抑制效果。乳酸菌产生的抗菌化合物——包括核糖体合成的细菌素——作为潜在生物保鲜剂已引起广泛关注。植物乳植杆菌是研究最深入的产生多种抗菌化合物(含细菌素)的乳酸菌之一,其plantaricin类细菌素具有结构与生物合成多样性。在已表征的植物乳植杆菌C11系统中,plantaricin的产生受肽介导的群体感应调控,涉及组氨酸激酶及响应调节因子PlnC和PlnD。然而,植物乳植杆菌发酵系统的抗菌活性可能涉及多种因素,其调控机制与发酵条件优化仍有待深入探索。
研究方法
2.1 菌株与培养基
植物乳植杆菌L13分离自贵州卤水,保藏号为CGMCC No. 27398。该菌株在MRS琼脂上于37°C活化12 h,随后接种至MRS肉汤中培养8–12 h至对数期,作为种子培养液。MRS肉汤每升含20 g葡萄糖、10 g蛋白胨、10 g牛肉膏、5 g酵母提取物、2 g磷酸氢二钾、5 g乙酸钠、0.1 g硫酸镁、2 g柠檬酸铵、0.05 g硫酸锰和1 g吐温80。pH调节至6.2 ± 0.2,培养基于121 °C灭菌15 min。腐败希瓦氏菌CN32由本实验室保藏,用作指示菌。保藏菌种接种至LB培养基中,于28°C振荡培养12 h。使用前将CN32与LB琼脂混合至终浓度1 × 10⁶ CFU/mL并倾注平板。LB培养基每升含5 g酵母提取物、10 g蛋白胨和30 g氯化钠。pH调节至7.0,培养基于121 °C灭菌20 min。固体培养基添加2%琼脂。
【数据】菌株:植物乳植杆菌L13(CGMCC No. 27398)、腐败希瓦氏菌CN32;MRS肉汤成分:葡萄糖20 g/L、蛋白胨10 g/L、牛肉膏10 g/L、酵母提取物5 g/L、磷酸氢二钾2 g/L、乙酸钠5 g/L、硫酸镁0.1 g/L、柠檬酸铵2 g/L、硫酸锰0.05 g/L、吐温80 1 g/L;MRS pH:6.2 ± 0.2;MRS灭菌:121°C、15 min;LB成分:酵母提取物5 g/L、蛋白胨10 g/L、氯化钠30 g/L;LB pH:7.0;LB灭菌:121°C、20 min;活化温度:37°C;活化时间:12 h;种子培养:8–12 h;CN32培养温度:28°C;CN32培养时间:12 h;CN32终浓度:1 × 10⁶ CFU/mL
2.2 培养基组分优化
通过单因素实验对MRS培养基配方中的碳源、氮源、无机盐和外源氨基酸进行优化,以提高植物乳植杆菌L13发酵上清液的抗菌活性。每处理接种1%(v/v)经两次活化的植物乳植杆菌L13种子培养液,于37°C静置培养48 h。发酵后,培养物于4°C、8000 × g离心10 min,收集无细胞发酵上清液。抗菌活性采用琼脂孔扩散法测定。在含腐败希瓦氏菌CN32的LB琼脂平板上打直径6 mm的孔,每孔加入100 μL发酵上清液。于28 °C培养24 h后测量抑菌圈直径。每实验设三个生物学重复。
【数据】接种量:1%(v/v);发酵温度:37°C;发酵时间:48 h;离心条件:8000 × g、10 min、4°C;孔直径:6 mm;上清液加样量:100 μL;指示菌培养温度:28 °C;指示菌培养时间:24 h;重复数:3个生物学重复
#### 2.2.1 碳源筛选
将基础MRS培养基中的葡萄糖以20 g/L的蔗糖、木糖、半乳糖、阿拉伯糖、核糖、棉子糖、果糖、菊粉、壳聚糖、乳糖或麦芽糖替代,制备含替代碳源的MRS培养基。以含葡萄糖的培养基为对照。发酵和抗菌活性测定按2.2节所述进行。
【数据】替代碳源浓度:20 g/L;替代碳源种类:蔗糖、木糖、半乳糖、阿拉伯糖、核糖、棉子糖、果糖、菊粉、壳聚糖、乳糖、麦芽糖;对照:葡萄糖
#### 2.2.2 氮源筛选
将MRS培养基中的混合氮源(蛋白胨、牛肉膏和酵母提取物)以等总浓度25 g/L的蛋白胨、酵母提取物、牛肉膏、大豆蛋白胨、胰蛋白胨或鱼粉蛋白胨替代。以含混合氮源的原始MRS培养基为对照。发酵和抗菌活性测定按2.2节所述进行。
【数据】替代氮源总浓度:25 g/L;替代氮源种类:蛋白胨、酵母提取物、牛肉膏、大豆蛋白胨、胰蛋白胨、鱼粉蛋白胨;对照:混合氮源(蛋白胨+牛肉膏+酵母提取物)
#### 2.2.3 无机盐筛选
将基础MRS培养基中的K₂HPO₄以等量的KH₂PO₄、MgCl₂或KCl替代。以含K₂HPO₄的原始MRS培养基为对照。发酵和抗菌活性测定按2.2节所述进行。
【数据】替代无机盐:KH₂PO₄、MgCl₂、KCl;对照:K₂HPO₄
#### 2.2.4 外源氨基酸筛选
将酪氨酸(Tyr)、丙氨酸(Ala)、色氨酸(Trp)、组氨酸(His)、缬氨酸(Val)或赖氨酸(Lys)分别以终浓度1 g/L添加至改良MRS培养基中。以不添加外源氨基酸的改良MRS培养基为对照。发酵和抗菌活性测定按2.2节所述进行。
【数据】氨基酸终浓度:1 g/L;氨基酸种类:Tyr、Ala、Trp、His、Val、Lys;对照:无外源氨基酸
#### 2.2.5 葡萄糖浓度优化
在葡萄糖被选为合适碳源后,制备含不同葡萄糖浓度的改良MRS培养基,即20、30、40、50和60 g/L。发酵和抗菌活性测定按2.2节所述进行。
【数据】葡萄糖浓度梯度:20、30、40、50、60 g/L
#### 2.2.6 酵母提取物浓度优化
在酵母提取物被选为合适氮源后,制备含不同酵母提取物浓度的改良MRS培养基,即10、15、20、25、30和35 g/L。发酵和抗菌活性测定按2.2节所述进行。
【数据】酵母提取物浓度梯度:10、15、20、25、30、35 g/L
#### 2.2.7 外源氨基酸浓度优化
基于氨基酸筛选结果,选择色氨酸并以终浓度1、2和3 g/L添加至改良MRS培养基中。发酵和抗菌活性测定按2.2节所述进行。
【数据】色氨酸浓度梯度:1、2、3 g/L
#### 2.2.8 培养基组成的响应面优化
基于单因素实验,选择葡萄糖、酵母提取物和色氨酸,采用三因素三水平Box-Behnken设计进一步优化。以对腐败希瓦氏菌CN32的抑菌圈直径为响应值。葡萄糖浓度(A,30.0–50.0 g/L)、酵母提取物浓度(B,25.0–35.0 g/L)和色氨酸浓度(C,1.0–3.0 g/L)为自变量。因素水平见表S1。实验设计、回归分析和方差分析使用Design-Expert 8.0.6软件进行。预测的最优培养基组成通过三次独立实验验证。
【数据】设计方法:三因素三水平Box-Behnken设计;自变量:葡萄糖30.0–50.0 g/L、酵母提取物25.0–35.0 g/L、色氨酸1.0–3.0 g/L;响应值:抑菌圈直径;软件:Design-Expert 8.0.6;验证实验:3次独立实验
2.3 超声处理优化
#### 2.3.1 植物乳植杆菌L13生长曲线与抗菌活性
将经两次连续活化的植物乳植杆菌L13种子培养液以1%(v/v)接种至优化mMRS培养基中,于37 °C静置培养。发酵前12 h每2 h取样,之后每4 h取样直至48 h。每个采样点测定OD₆₀₀、上清液pH和抗菌活性,以确定超声处理的合适发酵阶段。
【数据】接种量:1%(v/v);培养温度:37 °C;取样间隔:前12 h每2 h、之后每4 h;总发酵时间:48 h;检测指标:OD₆₀₀、pH、抗菌活性
#### 2.3.2 单次超声处理条件筛选
将经两次连续活化的植物乳植杆菌L13种子培养液以1%(v/v)接种至mMRS培养基中,于37°C静置发酵。在发酵8、12或24 h时施加单次超声处理。超声使用20 kHz探头超声仪,探头置于液面下1–2 cm。处理期间发酵液在冰浴中保持低于37 °C。脉冲超声处理15 min,5 s开/5 s关循环,功率为48、96或144 W。超声处理后,所有组继续于37 °C发酵至48 h。非超声组为对照。发酵结束时,收集3 mL培养物测定OD₆₀₀和pH。剩余培养物于4°C、8000 × g离心10 min,收集上清液用于抗菌活性测定。每实验设三个生物学重复。
【数据】超声时间点:8、12、24 h;超声频率:20 kHz;探头位置:液面下1–2 cm;超声时长:15 min;脉冲循环:5 s开/5 s关;超声功率:48、96、144 W;处理温度:冰浴保持低于37 °C;超声后发酵温度:37 °C;超声后发酵时间:至48 h;取样量:3 mL;离心条件:8000 × g、10 min、4°C;重复数:3个生物学重复
#### 2.3.3 重复超声处理对植物乳植杆菌L13发酵上清液抗菌活性的影响
以非超声组为对照,测试48、96和144 W超声功率。根据生长曲线和单次超声筛选结果,选择发酵12 h(对应早期稳定期)作为初始干预点。将植物乳植杆菌L13接种至mMRS培养基中,于37 °C静置发酵。在发酵12、24和36 h时施加超声处理,参数同2.3.2节。所有组发酵至48 h。随后离心收集上清液,采用琼脂孔扩散法测定抗菌活性。每实验设三个生物学重复。
【数据】超声功率:48、96、144 W;超声时间点:12、24、36 h;发酵温度:37 °C;总发酵时间:48 h;重复数:3个生物学重复
#### 2.3.4 单次与重复超声处理对植物乳植杆菌L13发酵上清液抗菌活性的比较
实验包括对照组、单次超声组和重复超声组。对照组不接受超声处理。基于前期筛选结果,单次超声[原文此处中断]
【数据】分组:对照组、单次超声组、重复超声组;原文未详述后续参数
研究结果
3.1 培养基组分对植物乳植杆菌L13抗菌活性的影响
在测试的碳源中,葡萄糖产生最大抑菌圈直径9.34 ± 0.57 mm,其次是麦芽糖9.15 ± 0.57 mm,而菊粉活性最低(图1A)。在氮源中,酵母提取物产生最强的抗菌活性(图1B)。Tyr、Ala和Trp与对照相比显著增强活性,其中Trp效果最强,而His、Val和Lys无显著影响(图1C)。相比之下,K₂HPO₄、KH₂PO₄、MgCl₂和KCl处理间无显著差异(图1D),培养基配方中保留K₂HPO₄。进一步浓度优化显示,抗菌活性随葡萄糖浓度从20升至40 g/L而增加,在40 g/L时达到最大抑菌圈直径11.78 ± 0.36 mm,更高浓度则下降(图1E)。酵母提取物呈类似趋势,30 g/L时活性最高,对应抑菌圈直径11.69 ± 0.43 mm(图1F)。在候选氨基酸中,2 g/L Trp效果最强,抑菌圈直径11.87 ± 0.62 mm(图1G)。因此选择葡萄糖、酵母提取物和Trp进行响应面优化。
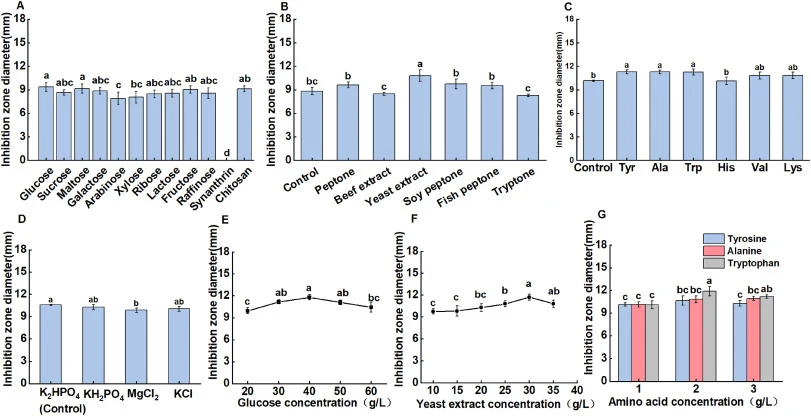
【数据】葡萄糖抑菌圈:9.34 ± 0.57 mm;麦芽糖抑菌圈:9.15 ± 0.57 mm;菊粉:活性最低;葡萄糖最优浓度:40 g/L;40 g/L葡萄糖抑菌圈:11.78 ± 0.36 mm;酵母提取物最优浓度:30 g/L;30 g/L酵母提取物抑菌圈:11.69 ± 0.43 mm;Trp最优浓度:2 g/L;2 g/L Trp抑菌圈:11.87 ± 0.62 mm;无机盐:K₂HPO₄、KH₂PO₄、MgCl₂、KCl间无显著差异
3.2 培养基组成的响应面优化
Box–Behnken设计及实验响应见表S3。二次回归模型显著(P < 0.0001),失拟项不显著(P = 0.7492)。R²和调整R²分别为0.9905和0.9782(表S4)。葡萄糖与Trp之间以及酵母提取物与Trp之间的交互作用比葡萄糖与酵母提取物之间更明显(图S1)。预测最优培养基含39.0 g/L葡萄糖、29.5 g/L酵母提取物和1.95 g/L Trp,预测抑菌圈直径11.68 mm。验证得到11.71 ± 0.36 mm,相对误差0.26%,较初始MRS培养基提高约32%。
【数据】模型显著性:P < 0.0001;失拟项:P = 0.7492;R²:0.9905;调整R²:0.9782;最优葡萄糖:39.0 g/L;最优酵母提取物:29.5 g/L;最优Trp:1.95 g/L;预测抑菌圈:11.68 mm;验证抑菌圈:11.71 ± 0.36 mm;相对误差:0.26%;较初始MRS提高:约32%
3.3 超声处理对植物乳植杆菌L13抗菌活性的影响
无超声时,OD₆₀₀在前8 h快速增加后减缓,pH从6.15降至3.59。抑菌圈直径随发酵时间增加,36 h后稳定(图2A)。这些参数在24–48 h普遍趋于平台(图2B)。超声处理仅引起OD₆₀₀和pH的有限变化(图2C)。8 h单次处理未改善抗菌活性,而12或24 h处理在特定功率水平下增加抑菌圈直径。最强效果在24 h、144 W、15 min时获得,为12.20 ± 0.17 mm,而非超声对照为11.30 ± 0.25 mm(图2D)。在重复处理筛选中,最高活性出现在12 h第一次处理96 W(12.00 ± 0.76 mm)和24 h第二次处理48 W(12.58 ± 0.61 mm)。36 h第三次处理未提供进一步增加(图2E)。单次与重复处理直接比较倾向于24 h、144 W单次处理。在36 h时,其抑菌圈直径达12.82 ± 0.41 mm,而对照为11.76 ± 0.40 mm,增加约9%。在48 h时,对应值分别为12.56 ± 0.42和11.74 ± 0.32 mm(图2F)。该单次处理策略被选用于后续实验。
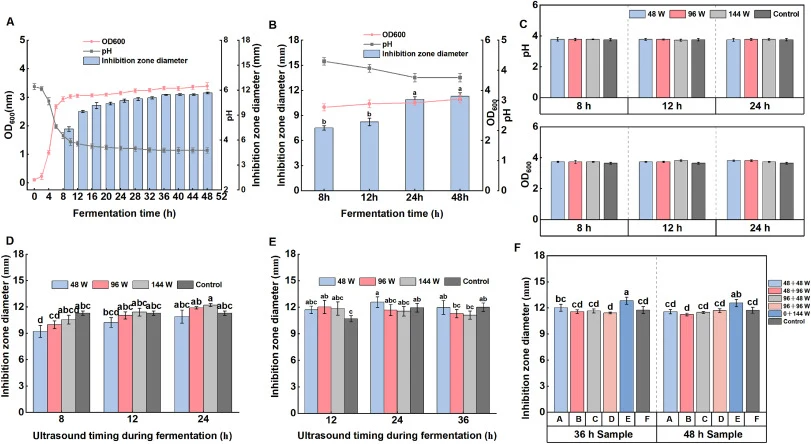
【数据】初始pH:6.15;最终pH:3.59;单次超声最优条件:24 h、144 W、15 min;144 W组抑菌圈:12.20 ± 0.17 mm;非超声对照:11.30 ± 0.25 mm;重复处理第一次:12 h、96 W、12.00 ± 0.76 mm;重复处理第二次:24 h、48 W、12.58 ± 0.61 mm;第三次处理(36 h):无进一步增加;36 h单次144 W组:12.82 ± 0.41 mm;36 h对照:11.76 ± 0.40 mm;36 h增加:约9%;48 h单次144 W组:12.56 ± 0.42 mm;48 h对照:11.74 ± 0.32 mm
3.4 pH调节和蛋白酶K处理对抗菌活性的影响
三组初始pH相似。12 h后,MRS组pH显著高于mMRS和Ultra组,而mMRS与Ultra组间无显著差异。48 h时,MRS、mMRS和Ultra组的pH分别为3.83 ± 0.01、3.54 ± 0.01和3.56 ± 0.02(图3A)。调节至pH 5.5或6.0后,三组在6-mm孔直径外均未检测到抑菌活性(图3B)。相比之下,在pH 4.0和4.5的更酸性条件下抗菌活性仍可检测,因此选择用于后续蛋白酶K敏感性实验。在pH 4.5时,MRS、mMRS和Ultra组的缓冲液-热对照抑菌圈直径分别为9.73 ± 0.15、10.35 ± 0.16和12.04 ± 0.15 mm。蛋白酶K处理显著降低对应值至6.00 ± 0.00、9.46 ± 0.06和10.16 ± 0.14 mm(图3C)。在pH 4.0时,蛋白酶K处理也降低MRS和Ultra组的抗菌活性,而mMRS组无显著差异(表S5)。
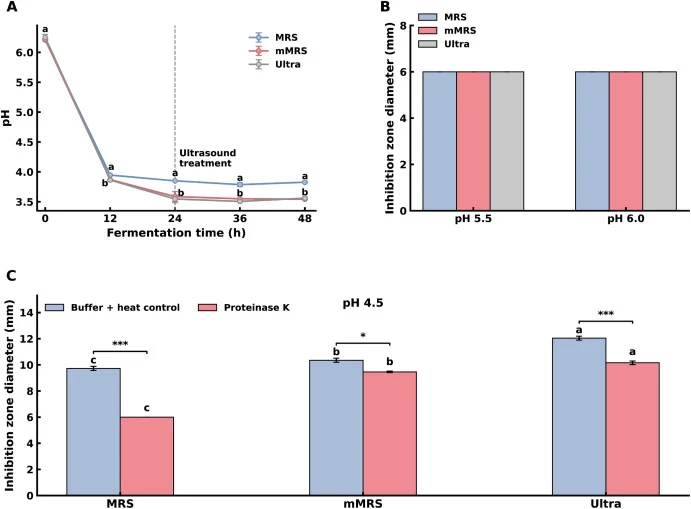
【数据】48 h pH:MRS组3.83 ± 0.01、mMRS组3.54 ± 0.01、Ultra组3.56 ± 0.02;pH 5.5/6.0:无抑菌活性;pH 4.5缓冲液-热对照抑菌圈:MRS 9.73 ± 0.15 mm、mMRS 10.35 ± 0.16 mm、Ultra 12.04 ± 0.15 mm;pH 4.5蛋白酶K处理抑菌圈:MRS 6.00 ± 0.00 mm、mMRS 9.46 ± 0.06 mm、Ultra 10.16 ± 0.14 mm;pH 4.0:MRS和Ultra组降低,mMRS组无显著差异
3.5 不同发酵条件下植物乳植杆菌L13的转录组概览
生物学重复间样本相关性高,mMRS和Ultra谱彼此更相似,与MRS相似度较低(图4A)。差异表达分析在mMRS vs MRS中鉴定出1728个DEGs,包括902个上调和826个下调基因。Ultra vs mMRS含342个DEGs,包括62个上调和280个下调基因,而Ultra vs MRS含1680个DEGs,包括850个上调和830个下调基因(图4B-E)。因此,培养基优化比额外超声处理引发更广泛的转录变化,Ultra vs mMRS中下调基因占主导。
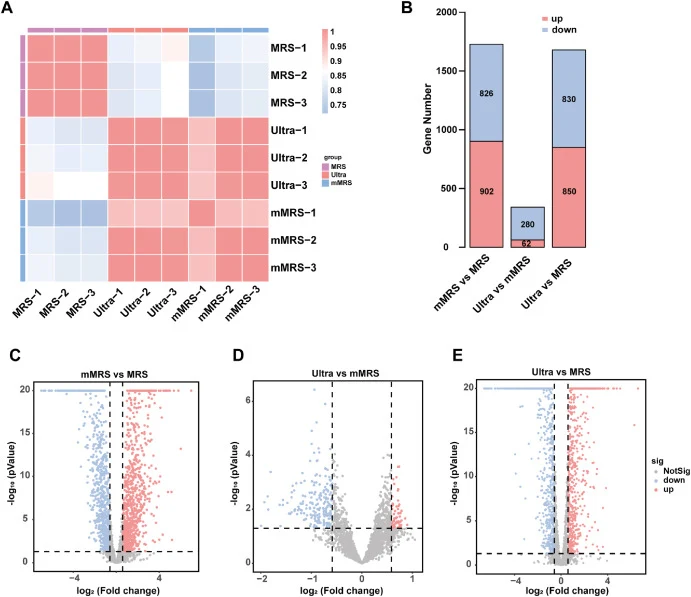
【数据】mMRS vs MRS:1728个DEGs(902上调、826下调);Ultra vs mMRS:342个DEGs(62上调、280下调);Ultra vs MRS:1680个DEGs(850上调、830下调)
3.6 差异表达基因的功能富集分析
在mMRS vs MRS中,GO富集主要涉及单糖代谢、ATP生物合成和转运蛋白复合物,富集的KEGG通路包括磷酸转移酶系统(PTS)、糖酵解/糖异生和蛋白输出(图S2A和D)。在Ultra vs mMRS中,富集的GO术语与ATP相关代谢过程和细胞被膜组分有关,而KEGG富集突出ABC转运蛋白、氧化磷酸化和群体感应(图S2B和E)。在Ultra vs MRS中,GO富集涉及应激响应、核糖体组分和质子跨膜转运,富集的KEGG通路包括嘌呤代谢、丙酮酸代谢和核糖体(图S2C和F)。总体而言,这些富集模式揭示了不同发酵条件下营养代谢、能量产生、转运、分泌和细胞被膜适应的转录变化。
【数据】mMRS vs MRS富集通路:PTS、糖酵解/糖异生、蛋白输出;Ultra vs mMRS富集通路:ABC转运蛋白、氧化磷酸化、群体感应;Ultra vs MRS富集通路:嘌呤代谢、丙酮酸代谢、核糖体
3.7 渐进响应上调基因集的筛选、表达模式与功能富集
筛选出一组显示渐进响应上调趋势的基因。这些基因在MRS组中表达相对较低,在mMRS组中显著上调,并在Ultra组中维持高表达或进一步增加,与培养基优化和超声处理的渐进效应一致(图5A)。层次聚类进一步确认了该表达模式(图5B)。KEGG富集分析显示,渐进响应上调基因主要富集于分泌与蛋白输出、核苷酸和氨基酸代谢、核糖体、群体感应、肽聚糖生物合成、双组分系统和ABC转运蛋白相关通路(图5C)。
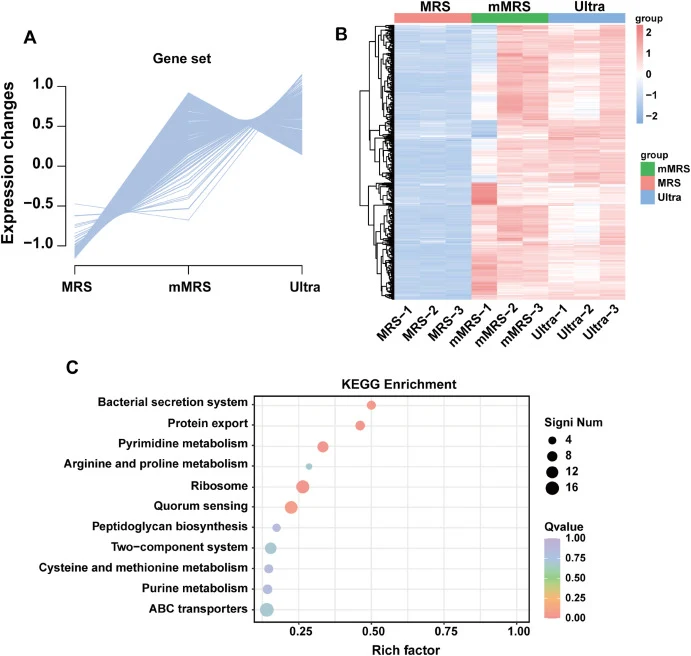
【数据】基因表达趋势:MRS低表达、mMRS显著上调、Ultra维持或进一步增加;富集通路:分泌与蛋白输出、核苷酸和氨基酸代谢、核糖体、群体感应、肽聚糖生物合成、双组分系统、ABC转运蛋白
3.8 渐进响应上调基因的分类与表达谱
基于富集分析和功能注释,代表性基因被归入五个功能模块,通常在mMRS和Ultra中表达高于MRS(图6A–E)。在群体感应和双组分调控模块中,agrC、agrA和lrgA在mMRS和Ultra组中表达增加(图6A)。在蛋白分泌与输出模块中,与Sec通路、信号肽加工[原文此处中断]
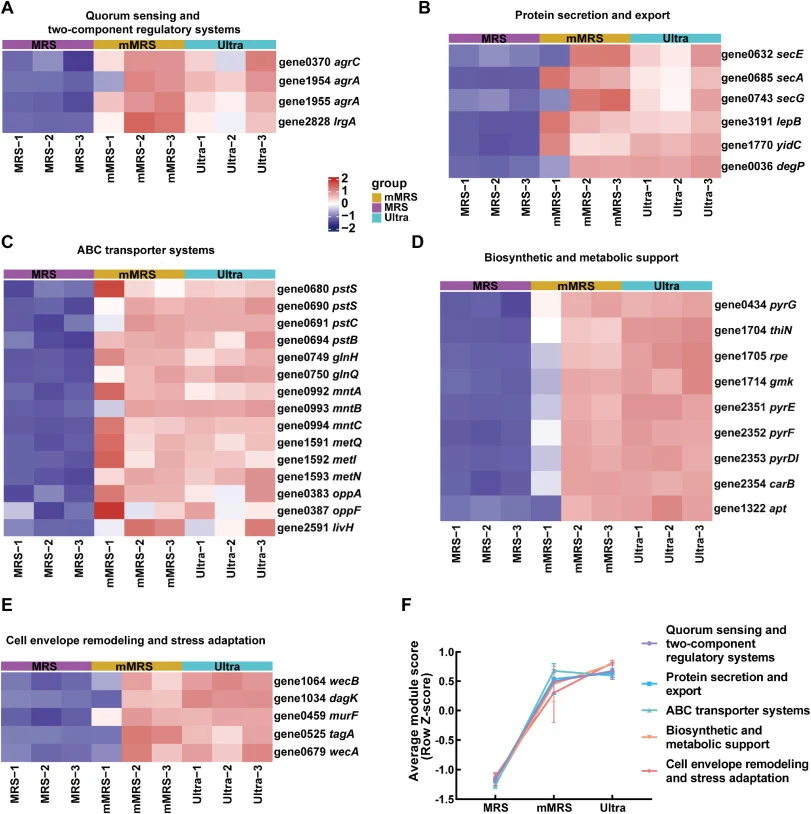
【数据】agrC、agrA、lrgA:mMRS和Ultra组表达增加;功能模块:5个;原文未详述其他具体基因表达数值
3.9 代表性渐进响应上调基因的RT-qPCR验证
RT-qPCR验证了代表性渐进响应上调基因的表达趋势。
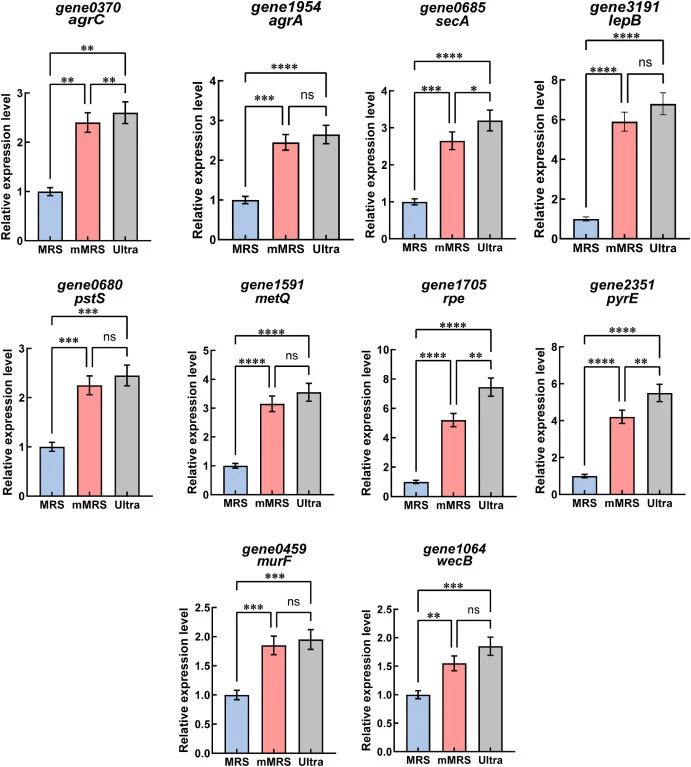
【数据】原文未详述具体验证基因名称及表达倍数
3.10 酸化和转录响应相关抗菌活性模型
基于上述结果提出植物乳植杆菌L13无细胞上清液抗菌活性相关的酸化和转录响应模型。
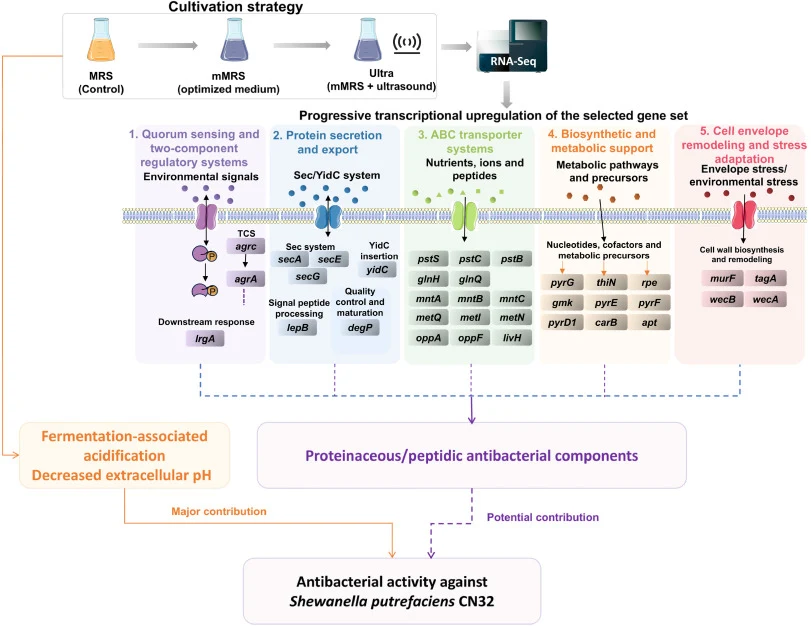
【数据】原文未详述模型具体参数
讨论与解读
培养基优化和超声辅助发酵增强了植物乳植杆菌L13发酵上清液对腐败希瓦氏菌CN32的胞外抗菌活性。培养基优化结果表明,葡萄糖、酵母提取物和色氨酸是影响植物乳植杆菌L13抗菌活性的主要营养因素。既往研究已证明培养基组成强烈影响乳酸菌的抗菌活性,优化营养条件可提高抗菌代谢物或后生元活性。本研究中,葡萄糖和酵母提取物超过最优浓度后抗菌活性下降,表明适当的营养平衡而非过量营养补充对维持抗菌性能至关重要。在优化培养基基础上,适当的单次超声处理进一步增强了植物乳植杆菌L13发酵上清液的抗菌活性,而重复超声处理未产生更强效果。这表明植物乳植杆菌L13对超声的响应强烈依赖于处理时机和强度。类似观察已有报道,显示超声对乳酸菌的影响受微生物生长阶段和处理强度强烈影响。
pH调节实验表明,上清液调至pH 5.5或6.0后抑菌活性完全消失,说明抗菌活性强烈依赖酸性条件。pH 4.5下蛋白酶K处理显著降低抗菌活性,支持酸性条件下蛋白质类或肽类组分的参与。转录组分析揭示,培养基优化引发的转录变化比超声处理更广泛,渐进响应上调基因富集于群体感应、蛋白分泌与输出、ABC转运蛋白、代谢和细胞被膜适应等通路。RT-qPCR确认了代表性基因的表达趋势。
编译者解读: 该研究采用"培养基优化+超声辅助"的双因素策略提升乳酸菌上清液抗菌活性,方法学上单因素结合响应面的经典路径稳健可靠,32%的抑菌圈提升具有实际应用潜力。超声单次处理优于重复处理的发现值得关注——过度物理干预可能触发应激下调而非增产。然而,研究止步于上清液层面,未对关键抗菌物质进行分离纯化与结构鉴定,pH依赖性和蛋白酶K敏感性仅提供间接证据。转录组数据提示的群体感应与分泌通路调控机制尚需基因敲除或过表达实验验证。从合成生物学视角看,若能将渐进响应上调基因簇异源重构或定向改造,或可摆脱对活菌发酵条件的依赖,实现抗菌肽的稳定高产。
参考来源
期刊:Food Bioscience, 2026
DOI: 10.1016/j.fbio.2026.110167
DOI: 10.1016/j.fbio.2026.110167