来源:Biosensor-guided evolution of chalcone synthase enhances biosynthesis of natural and non-natural flavanones(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
黄烷酮是黄酮类天然产物的核心分支点中间体,其微生物合成面临结构多样化难题。本研究构建了包含4CL、CHS和CHI三个酶步的组合通路库,将11种环取代肉桂酸前体转化为10种天然及非天然黄烷酮;同时建立了基于转录调控因子FdeR的基因编码生物传感器,验证其对全部10种黄烷酮的响应能力。利用该传感器进行高通量筛选,对来自大麦和拟南芥的查尔酮合酶进行定向进化,获得了促进O-甲基化及氟取代黄烷酮生产的变体,并发现部分变体可催化形成推测的异阿魏酰衍生脱轨产物。
研究背景
黄酮类化合物是结构多样的次生代谢产物大家族,已报道超过9,000种不同成员。它们主要存在于植物中,承担紫外线防护、生物胁迫防御、信号传导、繁殖和发育等多种生理生态功能。凭借广泛的生物活性,黄酮类化合物在营养保健品、化妆品和制药领域受到广泛关注。
在黄酮家族中,黄烷酮占据核心生物合成位置,是黄酮、二氢黄酮醇、黄酮醇和花青素等主要亚类的分支点中间体。大多数植物中,经典黄烷酮生物合成通路包含三个酶步:4-香豆酸-CoA连接酶(4CL)活化苯丙烷类前体;查尔酮合酶(CHS)利用三分子丙二酰-CoA形成查尔酮中间体;查尔酮异构酶(CHI)催化查尔酮的立体特异性分子内环化,生成手性黄烷酮。所得黄烷酮骨架由两个芳香环(A环和B环)围绕一个杂环C环排列而成(图1)。
微生物合成黄酮类化合物为植物提取提供了可规模化的替代方案。然而,在微生物系统中实现这些化合物的结构多样化仍具挑战性,因为黄烷酮B环的修饰通常依赖下游修饰酶。另一种策略是利用经典黄烷酮生物合成通路的内在底物宽泛性,在早期阶段引入结构变异。
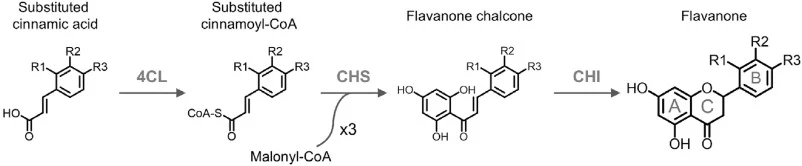
本研究旨在通过系统利用通路底物宽泛性来改善多种黄烷酮的微生物生产。通过构建包含4CL、CHS和CHI的组合通路库,将一组环取代肉桂酸前体转化为十种天然和非天然黄烷酮。同时建立了基于转录调控因子FdeR的基因编码生物传感器,并验证其对全部十种黄烷酮的响应性。利用该生物传感器进行高通量筛选,对来自大麦(Hordeum vulgare)和拟南芥(Arabidopsis thaliana)的查尔酮合酶进行定向进化,鉴定出可改善O-甲基化黄烷酮(包括异樱花素、橙皮素和高圣草酚)以及氟取代黄烷酮生产的酶变体。此外,研究还证明大麦CHS的特定变体可促进推测的异阿魏酰衍生脱轨产物的形成。
研究方法
2.1 菌株、化学品和培养基
大肠杆菌NEB 5-alpha(New England Biolabs)用于质粒扩增和克隆。大肠杆菌菌株SBC016072——大肠杆菌K-12 MG1655的衍生物,经优化用于黄酮类生物合成——用于本研究的所有其他实验。本工作中使用的环取代肉桂酸和黄烷酮分析标准品列于表S1。用作黄烷酮生物合成底物的环取代肉桂酸储备液新鲜配制于乙醇中。常规实验室操作中,大肠杆菌在溶菌肉汤(LB)中培养。对于FdeR生物传感器的验证和涉及黄烷酮生物合成的实验,大肠杆菌在磷酸盐缓冲的Terrific Broth(Formedium)中培养,补充0.4%(w/v)甘油(以下称生产培养基)。需要时,抗生素按以下终浓度添加:氯霉素(25 μg/mL)和卡那霉素(50 μg/mL)。
【数据】菌株:大肠杆菌NEB 5-alpha、SBC016072;培养基:LB、磷酸盐缓冲Terrific Broth+0.4%(w/v)甘油;抗生素浓度:氯霉素25 μg/mL、卡那霉素50 μg/mL;底物储备液:乙醇配制
2.2 质粒和菌株构建
寡核苷酸引物由Integrated DNA Technologies(IDT)合成,列于表S2。基因部件使用PartsGenie设计,编码序列针对大肠杆菌进行密码子优化,核糖体结合位点翻译起始速率设为20,000。基因部件由TWIST Bioscience合成,其序列见表S3。质粒DNA使用QIAprep Spin Miniprep Kit(Qiagen)提取。用于克隆的DNA片段通过PCR使用Q5 High-Fidelity 2X Master Mix(NEB)扩增,并用Zymoclean Gel DNA Recovery Kit(Zymo Research)凝胶纯化。质粒通过限制性内切酶克隆或HiFi DNA Assembly构建。限制性内切酶、T4 DNA连接酶和NEBuilder HiFi DNA Assembly Master Mix购自NEB,所有PCR、酶切、连接和组装反应均按制造商说明进行。各质粒构建的详细描述见补充方法。所有质粒通过Sanger测序(Eurofins Genomics)或全质粒测序(Source BioScience)验证。本研究使用和生成的质粒完整列表见表S4。质粒通过热激法转化到化学感受态大肠杆菌细胞中。
【数据】引物合成商:IDT;基因合成商:TWIST Bioscience;RBS翻译起始速率:20,000;质粒提取试剂盒:QIAprep Spin Miniprep Kit;PCR试剂:Q5 High-Fidelity 2X Master Mix;凝胶纯化试剂盒:Zymoclean Gel DNA Recovery Kit;连接酶:T4 DNA ligase;组装试剂:NEBuilder HiFi DNA Assembly Master Mix;验证方法:Sanger测序、全质粒测序
2.3 菌株培养
常规实验室操作中,大肠杆菌在37 °C、200 rpm轨道振荡下培养。对于FdeR生物传感器验证和小规模黄烷酮生物合成实验,使用新鲜转化的大肠杆菌单菌落接种1 mL补充了相应抗生素的生产培养基。培养在96孔深孔板(DWP)中进行,用透气封口膜密封。种子培养在30 °C、80%湿度、850 rpm轨道振荡下孵育18 h。主培养通过将种子培养物以1:200稀释到新鲜生产培养基(1 mL)的96孔DWP中制备,在相同条件下孵育。生长6 h后,当培养物达到OD600为1.0–2.0时,以适当浓度添加黄烷酮配体(用于生物传感器验证)或环取代肉桂酸底物(用于黄烷酮生物合成)。可选地,添加IPTG至终浓度0.1 mM以诱导黄烷酮生物合成通路酶的表达。随后将培养物放回振荡培养箱,24 h后收集样品。黄烷酮5,7,2′-三羟基黄烷酮、2′-氟-5,7-二羟基黄烷酮、3′-氟-5,7-二羟基黄烷酮和4′-氟-5,7-二羟基黄烷酮的大规模生产、纯化和结构验证见补充方法。
【数据】常规培养温度:37°C;振荡转速:200 rpm;种子培养温度:30°C;湿度:80%;振荡转速:850 rpm;时间:18h;主培养稀释比:1:200;诱导时OD600:1.0–2.0;生长时间:6h;IPTG浓度:0.1 mM;取样时间:24h
2.4 样品制备和靶标化合物定量
用于UPLC-DAD、LC-MS/MS和LC-QTof MS分析的目标化合物分析确认和定量样品,通过将50 μL细菌培养物转移到96孔微孔板中并加入150 μL甲醇制备。样品随后储存在−80 °C。分析当天,样品在室温解冻,4,000 rpm离心10 min,无细胞上清液在分析前用40%甲醇按需稀释。橙皮素、异樱花素和高圣草酚的定量通过LC-MS/MS分析进行。所有其他目标化合物使用UPLC-DAD定量。LC-MS/MS分析使用Waters ACQUITY UPLC I-Class二元系统与Waters Xevo TQ-XS三重四极杆质谱仪联用,配备Waters ACQUITY BEH C18柱(50 × 2.1 mm,1.7 μm)。柱温维持在45 °C。分离在0.5 mL/min流速下使用由溶剂A(含0.1%甲酸的H₂O)和溶剂B(含0.1%甲酸的乙腈)组成的二元流动相实现。梯度洗脱程序如下:0–1.0 min,15% B;1.0–4.5 min,15%至95% B线性梯度;4.5–4.9 min,保持95% B;4.9–5.0 min,回到15% B;5.0–6.0 min,15% B再平衡。样品在自动进样器中维持10 °C,进样体积为1 μL。MS参数和多反应监测(MRM)跃迁见表S5。峰面积使用Waters MassLynx软件积分。UPLC-DAD分析使用Agilent 1290 Infinity II LC系统与二极管阵列检测器联用,测量275、290和320 nm处吸光度。色谱方法与上述LC-MS/MS方法相同,只是溶剂B使用甲醇代替乙腈,进样体积为5 μL。峰面积使用Agilent OpenLab软件积分。代谢物浓度使用已知浓度标准品生成的校准曲线确定。
【数据】样品制备:50 μL培养物+150 μL甲醇;储存温度:−80°C;离心条件:4,000 rpm、10 min;稀释液:40%甲醇;LC-MS/MS柱温:45°C;流速:0.5 mL/min;进样体积:1 μL;自动进样器温度:10°C;UPLC-DAD检测波长:275、290、320 nm;UPLC-DAD进样体积:5 μL;流动相A:H₂O+0.1%甲酸;流动相B:乙腈+0.1%甲酸(LC-MS/MS)或甲醇(UPLC-DAD)
2.5 LC-QTof MS分析
准确质量测量和碎裂分析使用Waters ACQUITY UPLC I-Class系统与Waters离子迁移四极杆飞行时间质谱仪(Vion IMS-QToF)联用进行。色谱分离使用Waters ACQUITY BEH C18柱(50 × 2.1 mm,1.7 μm),柱温维持在45 °C。分离在0.5 mL/min流速下使用由溶剂A(含0.1%甲酸的H₂O)和溶剂B(甲醇)组成的二元流动相实现。梯度洗脱程序如下:0–1.0 min,15% B;1.0–7.0 min,15%至66% B线性梯度;7.0–7.1 min,66%至95% B线性梯度;7.1–9.0 min,保持95% B;9.0–9.1 min,回到15% B;9.1–10.0 min,15% B再平衡。电喷雾电离在负离子模式下进行,离子源温度为130 °C。质量扫描范围为50–1000 m/z,扫描时间为1 s。连续质量校准通过LockSpray分析含亮氨酸脑啡肽(50 ng/mL)的参比溶液实现,在色谱运行期间每3 min采集一次。数据以MSE模式采集,仪器在整个运行过程中交替使用低能量碰撞条件(6 eV)收集前体离子和高碰撞能量(15–40 eV梯度)生成产物离子。数据使用Waters UNIFI软件处理和分析。推测的产物离子使用Waters UNIFI软件和CFM-ID(4.0版)预测。
【数据】色谱柱温度:45°C;流速:0.5 mL/min;进样体积:原文未详述;流动相A:H₂O+0.1%甲酸;流动相B:甲醇;离子源温度:130°C;质量扫描范围:50–1000 m/z;扫描时间:1 s;亮氨酸脑啡肽浓度:50 ng/mL;校准采集间隔:3 min;低能量碰撞:6 eV;高碰撞能量梯度:15–40 eV
2.6 荧光测量
为定量红色荧光蛋白(RFP)报告基因输出,将15 μL细菌培养物转移到含135 μL磷酸盐缓冲盐水(PBS)的96孔微孔板(黑色透明底;Greiner Bio-One)中。RFP荧光和600 nm光密度(OD600)使用CLARIOstar Plus酶标仪(BMG Labt
【数据】培养物体积:15 μL;PBS体积:135 μL;微孔板类型:96孔黑色透明底板(Greiner Bio-One);检测仪器:CLARIOstar Plus酶标仪(BMG Labtech)
研究结果
3.1 FdeR响应广泛的黄烷酮
为建立适用于筛选结构多样化黄烷酮生物合成通路并实现高通量定向进化的稳健生物传感器平台,我们首先评估了转录调控因子FdeR是否能感知其先前表征配体柚皮素之外的黄烷酮。这种响应广度对于FdeR生物传感器应用于发现和优化产生天然及非天然黄烷酮的通路至关重要。为此,我们构建了一个生物传感器回路,包含fdeR基因和来自Herbaspirillum seropedicae的fdeR与fdeA之间的天然基因间区,该区域同时含有组成型fdeR启动子和诱导型fdeA启动子。fdeA启动子与rfp报告基因转录连接,使得黄烷酮依赖性的报告基因转录激活可通过荧光输出定量(图2A)。所得生物传感器质粒导入大肠杆菌菌株SBC016072——大肠杆菌K-12 MG1655的衍生物,经优化用于黄酮类生物合成。生物传感器性能最初通过向培养物补充终浓度0.1 mM的十种黄烷酮面板并定量24 h后荧光输出来评估。测试化合物包括天然存在的黄烷酮——松属素、5,7,2′-三羟基黄烷酮、柚皮素、异樱花素、圣草酚、橙皮素和高圣草酚——以及非天然氟化类似物,包括2′-、3′-和4′-氟-5,7-二羟基黄烷酮。所有测试黄烷酮均引发可测量的生物传感器响应,尽管报告基因诱导幅度在配体间差异显著(图2B)。高圣草酚触发最强响应,相对于未诱导对照,归一化荧光增加约150倍。相比之下,2′-氟-5,7-二羟基黄烷酮产生较温和但清晰可辨的16倍诱导。重要的是,补充本研究中使用的11种环取代肉桂酸(表1)中的每一种均未相对于未诱导对照增加归一化荧光(图S1)。这些结果表明FdeR生物传感器对这些化合物无响应。为进一步表征生物传感器性能,在一系列胞外黄烷酮浓度范围内定量生物传感器输出,并生成各配体特异性剂量响应曲线(图S2)。所得剂量响应数据使用Hill函数拟合,从中计算EC₁₀、EC₅₀和EC₉₀值(表S6)。生物传感器表现出配体依赖性的操作范围差异,反映为EC₁₀和EC₉₀值之间的浓度区间。松属素显示最窄操作范围(10.6–57.4 μM),在相对较小的配体浓度变化下达到接近最大生物传感器输出。相比之下,柚皮素和3′-氟-5,7-二羟基黄烷酮显示最宽操作范围(分别为24.9–219.9 μM和21.1–222.3 μM)。需要指出的是,柚皮素观察到的操作范围与先前报道的FdeR生物传感器一致。观察到的生物传感器性能差异可能反映配体–FdeR亲和力、胞内配体可用性或两者组合的差异,但目前数据无法区分这些潜在机制。尽管存在这些定量差异,所有测试黄烷酮均激活生物传感器这一观察结果表明FdeR具有显著的配体宽泛性。重要的是,FdeR能够感知和响应一系列结构相关的黄烷酮,涵盖天然植物代谢物如柚皮素和带有氟取代的非天然类似物。这种响应广度确立了FdeR作为适用于监测多种黄烷酮骨架生物合成的通用生物传感器,并支撑其在下游通路筛选和酶工程中的应用。
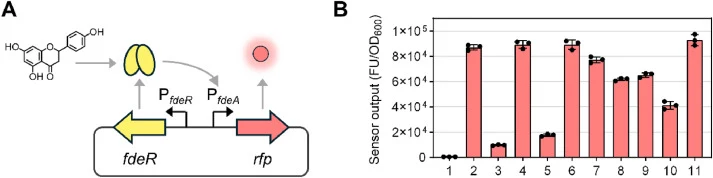
【数据】生物传感器质粒:SBC016239;调控因子:FdeR(来源H. seropedicae);报告基因:RFP;测试黄烷酮浓度:0.1 mM;响应时间:24h;高圣草酚诱导倍数:约150倍;2′-氟-5,7-二羟基黄烷酮诱导倍数:16倍;松属素操作范围:10.6–57.4 μM;柚皮素操作范围:24.9–219.9 μM;3′-氟-5,7-二羟基黄烷酮操作范围:21.1–222.3 μM;肉桂酸响应:无显著诱导
3.2 跨多种底物的黄烷酮生物合成优化
结构多样化黄烷酮的微生物生产主要通过两种并行策略实现。一种方法专注于最大化门户黄烷酮柚皮素的生物合成,随后通过专用修饰酶对B环进行结构修饰。第二种方法利用经典三酶黄烷酮生物合成通路的内在宽泛性,使用环取代肉桂酸作为起始底物获取较少见的天然或非天然黄烷酮,包括氟化衍生物。虽然通过酶筛选和通路优化已实现令人印象深刻的柚皮素滴度,但其在微生物宿主中的后续多样化仍具挑战性,通常需要羟基化和甲基化反应并产生复杂的黄酮类产物混合物。相比之下,利用第二种策略——系统结合通路优化与酶宽泛性,仅使用核心4CL–CHS–CHI通路实现结构更复杂黄烷酮高效生物合成——的研究相对较少。为探索后一种方法,我们试图鉴定能够在大肠杆菌中高效生物合成广泛B环修饰黄烷酮的酶组合,涵盖非O-甲基化、O-甲基化和氟化化合物。具体而言,我们旨在系统剖析三酶黄烷酮生物合成通路中每一步的酶身份如何影响11种环取代肉桂酸底物面板(表1)的产物形成。为此,我们构建了包含八个黄烷酮生物合成通路的组合库,核心通路每一步包含两个酶同源物(图3A)。该库包括来自大豆(Glycine max)的4CL1(Gm4CL1,UniProt: Q8S564)或4CL4(Gm4CL4,UniProt: P31687),来自拟南芥的CHS(AtCHS,UniProt: P13114)或来自大麦的CHS2(HvCHS2,UniProt: Q96562),以及来自拟南芥的CHI2(AtCHI2,UniProt: Q9FKW3)或来自紫花苜蓿(Medicago sativa)的CHI1(MsCHI1,UniProt: P28012)。HvCHS2酶携带表面残基替换Q232P和D234V,先前报道可增强高圣草酚和橙皮素生产。基因顺序和启动子元件保留自先前优化的松属素和柚皮素生产构建体。此外,所有通路质粒均携带FdeR生物传感器。酶同源物的选择基于先前对底物范围和通路性能的观察。Gm4CL4、AtCHS和AtCHI2的组合已被报道可产生高滴度的柚皮素、松属素和圣草酚,但对O-甲基化底物如阿魏酸和4-甲氧基肉桂酸表现不佳。相比之下,HvCHS2已被证明可容纳甲氧基取代的肉桂酰-CoA中间体,包括阿魏酰-CoA和异阿魏酰-CoA。我们还纳入了Gm4CL1,据报道其可接受较大体积的环取代肉桂酸衍生物,以及MsCHI1,已成功用于相关异源系统中O-甲基化黄烷酮如高圣草酚和橙皮素的生产。所有八个通路变体转化到大肠杆菌菌株SBC016072中,并在补充0.5 mM相应环取代肉桂酸后进行评估。底物消耗、产物滴度(在有可靠标准品可用时)和FdeR生物传感器输出在底物添加后24 h定量。
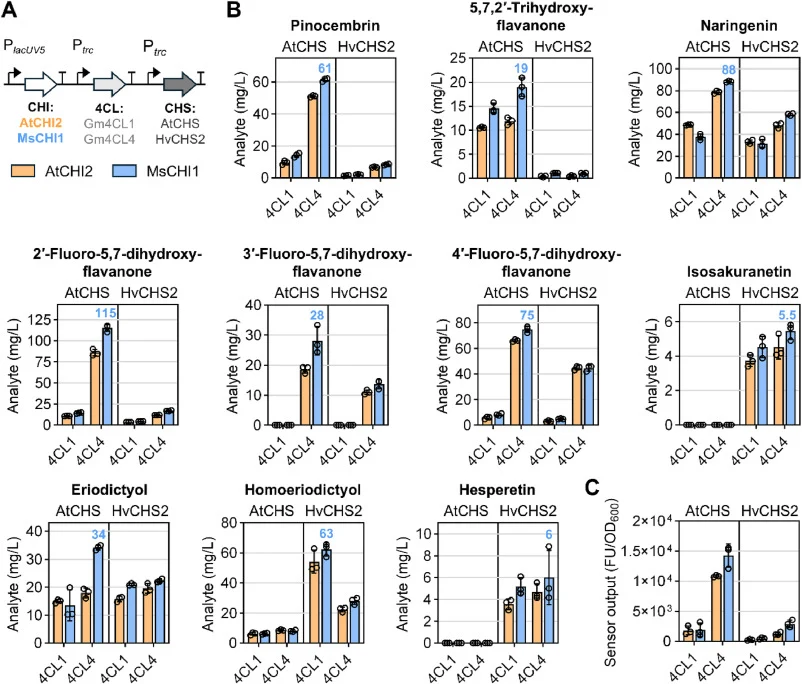
【数据】通路库变体数:8;4CL同源物:Gm4CL1(Q8S564)、Gm4CL4(P31687);CHS同源物:AtCHS(P13114)、HvCHS2(Q96562,含Q232P/D234V替换);CHI同源物:AtCHI2(Q9FKW3)、MsCHI1(P28012);底物浓度:0.5 mM;底物数量:11种环取代肉桂酸;定量时间:24h;宿主菌株:SBC016072
3.3 生物传感器输出与黄烷酮滴度的相关性
组合通路库中生物传感器输出与黄烷酮滴度之间的相关性分析显示,各数据点代表三次生物学重复的均值,误差棒表示标准差(图4)。Pearson相关系数
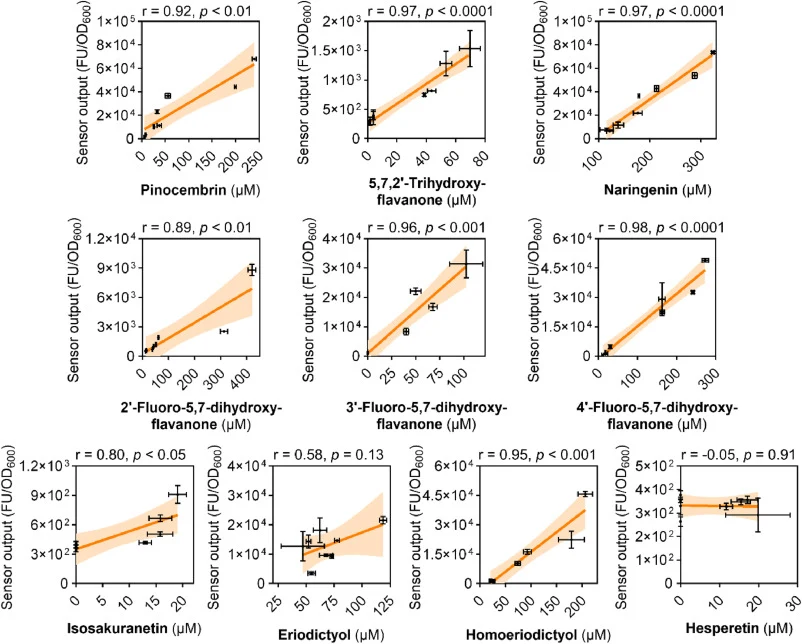
【数据】重复数:3次生物学重复;误差棒:标准差;相关性分析方法:Pearson相关系数
3.4 HvCHS2的定向进化
HvCHS2的定向进化从活性位点和底物通道分析入手。图5A展示了HvCHS2与圣草酚(橙色)和CoA(紫色)复合物的活性位点和底物通道(PDB: 8B3C)。从链A(灰色卡通)选择用于突变的残基以浅蓝色显示。M139来自与另一条链的二聚体界面
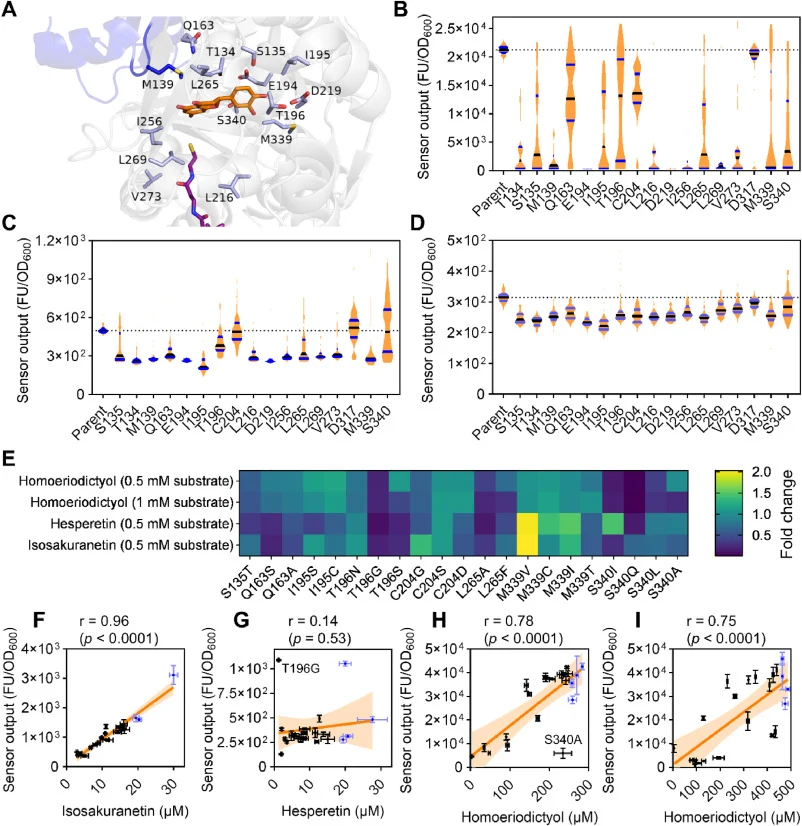
【数据】PDB编号:8B3C;配体:圣草酚(橙色)、CoA(紫色);突变残基来源:链A;M139来源:二聚体界面
3.5 HvCHS2对异阿魏酰衍生脱轨产物的生物合成
图6A展示了亲本HvCHS2菌株和S340L、S340I、S340Q及S340A变体培养物提取物的代表性UPLC-DAD色谱图(290 nm)。虚线表示异阿魏酸、橙皮素和脱轨产物的保留时间
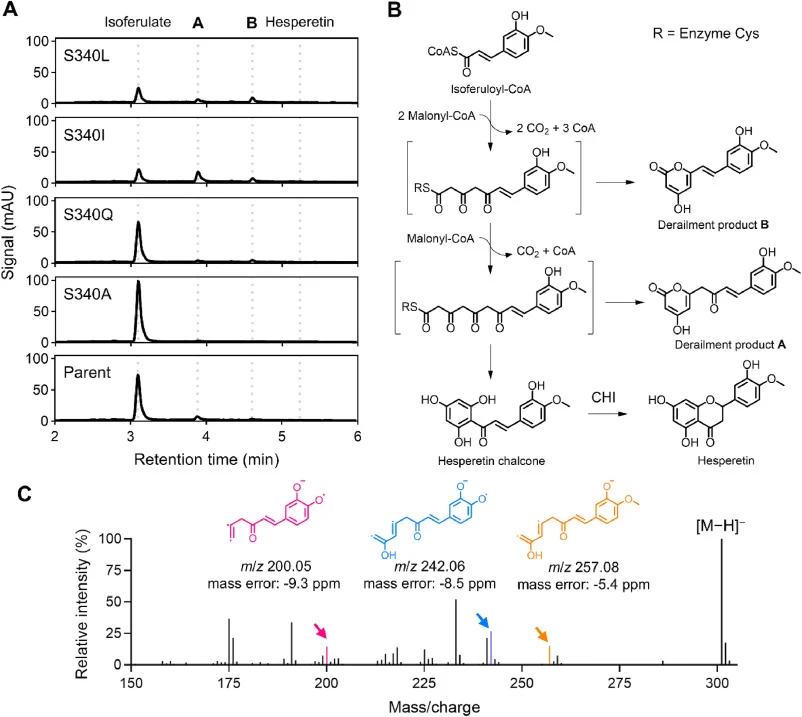
【数据】检测波长:290 nm;分析方法:UPLC-DAD;变体:S340L、S340I、S340Q、S340A;参照物:异阿魏酸、橙皮素、脱轨产物
3.6 AtCHS的定向进化
图7A和7B展示了AtCHS变体库的生物传感器输出,分别在补充0.5 mM 3-氟肉桂酸(A)或4-氟肉桂酸(B)后24 h测量。中位生物传感器输出用黑线表示,下四分位数和上四分位数用蓝色显示(n = 96)
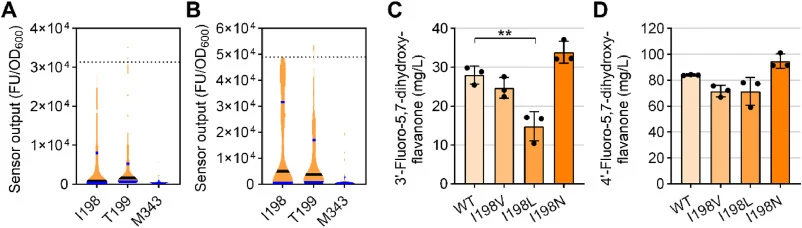
【数据】底物浓度:0.5 mM;底物:3-氟肉桂酸(A)、4-氟肉桂酸(B);测量时间:24h;样本量:n = 96;统计量:中位数、下四分位数、上四分位数
讨论与解读
本研究将组合通路优化与生物传感器引导的酶工程相结合,提升了结构多样化黄烷酮的微生物生产。通过系统评估4CL、CHS和CHI的组合,鉴定出能够将环取代肉桂酸高效转化为天然和非天然黄烷酮的通路配置。通路性能分析揭示了底物依赖性的通路控制转移:CHS是对位O-甲基化黄烷酮生产的主要决定因素,而4CL对几种氟取代黄烷酮的生物合成影响更大。同时,建立了FdeR生物传感器作为广泛响应且多功能的工具,用于监测黄烷酮生物合成并实现高通量筛选。利用该平台,对来自大麦和拟南芥的查尔酮合酶进行定向进化,鉴定出增强O-甲基化和氟取代黄烷酮生产的变体,以及促进推测异阿魏酰衍生脱轨产物形成的变体。本工作表明,通过利用通路宽泛性进行早期多样化,可在不依赖下游修饰酶的情况下有效获取结构多样的黄烷酮。生物传感器引导筛选与组合通路设计的整合建立了一个通用
编译者解读:该研究巧妙地将通路组合筛选与生物传感器高通量筛选耦合,把黄烷酮结构多样化的瓶颈从下游修饰酶前移到核心三酶通路的底物宽泛性利用上。FdeR传感器对10种黄烷酮的广谱响应是方法学亮点——一个传感器覆盖天然与非天然配体,省去了逐化合物建立分析方法的成本。局限在于传感器响应幅度与产物滴度之间的定量关系尚未完全解析(图4的相关性数据在节选中未完整呈现),且脱轨产物的结构鉴定仍为"推测"级别。未来若能将传感器响应函数与绝对定量更紧密锚定,该平台可推广至更多黄酮亚类的进化工程。
参考来源
期刊:Metabolic Engineering, 2026
DOI: 10.1016/j.ymben.2026.102564
DOI: 10.1016/j.ymben.2026.102564