来源:Synergistic engineering of monoterpenoid synthase and metabolic pathways to enhance α-terpineol production in Saccharomyces cerevisiae(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
α-松油醇是一种广泛应用于食品、化妆品和制药行业的高价值单萜化合物。微生物合成为其可持续生产提供了替代方案,但产量长期偏低。本研究以酿酒酵母为底盘,通过结构导向的酶工程改造、甲羟戊酸通路强化、耐受性基因过表达及二倍体构建等组合策略,将α-松油醇产量从初始的0.05 mg/L提升至5 L生物反应器中的81.78 mg/L,较出发菌株提高1635.6倍。
研究背景
α-松油醇是一种具有愉悦香气和多种生物活性的单萜化合物,在香精、香料、制药和化妆品行业应用广泛。目前其主要依赖植物提取,受季节波动、回收率低和环保问题制约;化学合成虽可行,但常需有毒溶剂和苛刻反应条件。微生物生产因此成为可持续制造α-松油醇及其他"天然"萜类化合物的有前景的替代途径。
在微生物中,α-松油醇由GPP合成,GPP来源于天然类异戊二烯通路。在酿酒酵母中,表达来自葡萄的截短α-松油醇合酶(tVvTS)并结合甲羟戊酸通路工程可实现α-松油醇的从头合成,但已报道的产量仍然较低——摇瓶中为3.32 mg/L,5 L生物反应器中为21.88 mg/L。这表明微生物α-松油醇生物合成距离工业化水平仍有很大差距。
三个主要瓶颈制约着该过程:植物来源VvTS/tVvTS在酵母中催化效率低、异源性能差;与内源甾醇生物合成竞争共同前体GPP;α-松油醇的细胞毒性损害细胞生长和生产。
研究方法
2.1 菌株与培养基
本研究使用的菌株和引物分别列于表S3和表S4。酿酒酵母BY4741和BY4742作为亲本菌株,保存于本实验室菌种保藏中。来自葡萄的VvTS基因(GenBank登录号:NM_001281287)由GENEWIZ(中国苏州)化学合成,并针对酿酒酵母表达进行了密码子优化。大肠杆菌DH-5α用于质粒构建,在LB培养基(5 g/L酵母提取物、10 g/L胰蛋白胨、10 g/L NaCl)中、添加100 mg/L氨苄青霉素、37 °C条件下培养。酵母提取物-蛋白胨-葡萄糖(YPD)培养基(20 g/L蛋白胨、10 g/L酵母提取物、20 g/L葡萄糖)和合成定义(SD)培养基(20 g/L葡萄糖、6.7 g/L含硫酸铵的酵母氮源碱、2 g/L合成完全氨基酸缺陷培养基,外加20 g/L琼脂粉)用于酿酒酵母的生长和筛选,并配以适当的营养缺陷型选择。
【数据】菌株:酿酒酵母BY4741、BY4742、大肠杆菌DH-5α;培养基:LB(5 g/L酵母提取物、10 g/L胰蛋白胨、10 g/L NaCl)、YPD(20 g/L蛋白胨、10 g/L酵母提取物、20 g/L葡萄糖)、SD(20 g/L葡萄糖、6.7 g/L酵母氮源碱、2 g/L氨基酸缺陷培养基、20 g/L琼脂);抗生素:100 mg/L氨苄青霉素;温度:37°C(大肠杆菌)、30°C(酵母);基因:VvTS(GenBank NM_001281287)
2.2 同源建模与分子对接
由于VvTS的晶体结构尚未通过实验解析,我们通过SWISS-MODEL(https://swissmodel.expasy.org/)进行同源建模,生成三维(3D)模型。选择柠檬烯合酶晶体结构(PDB ID:5ua0.1.A)作为建模模板。使用两个关键参数评估生成的VvTS模型质量:序列同一性(即氨基酸序列相似性)和全局模型质量估计(GMQE)。序列同一性超过30%时,模型通常被认为可靠。GMQE评分范围为0至1,值越高表明模型可靠性越高。我们还从NCBI PubChem数据库(https://www.ncbi.nlm.nih.gov/pubchem/)检索了小分子配体GPP的3D结构。VvTS蛋白和GPP底物均使用AutoDock软件进行预处理,包括去除水分子、添加氢原子和分配电荷。随后使用AutoDock Vina 1.1.2进行分子对接计算。在生成的对接构象中,选择结合能最低的构象进行后续分析,并使用PyMOL软件可视化对接结果。
【数据】模板:柠檬烯合酶晶体结构(PDB ID:5ua0.1.A);序列同一性:55.91%;GMQE评分:0.82;软件:SWISS-MODEL、AutoDock、AutoDock Vina 1.1.2、PyMOL;配体:GPP(来自NCBI PubChem);关键残基标准:距配体结合口袋4 Å以内
2.3 摇瓶培养中单萜产量测定
工程酿酒酵母菌株首先在补充适当营养缺陷的SD培养基中培养24 h。随后将培养物接种到含20 mL YPD培养基和2 mL肉豆蔻酸异丙酯的锥形瓶中。培养物在30 °C、200 rpm振荡条件下培养5天。本研究选择IPM作为有机覆盖层,因为其挥发性相对较低且在长期培养中具有良好的生物相容性。所有摇瓶发酵均进行生物学三重重复。统计分析使用Student's t检验,p < 0.05认为具有统计学显著性。
【数据】培养基:SD(24 h预培养)、YPD(20 mL);有机覆盖层:2 mL肉豆蔻酸异丙酯(IPM);温度:30°C;转速:200 rpm;时间:5天;重复:生物学三重重复;统计方法:Student's t检验;显著性阈值:p < 0.05
2.4 MLS-GFP荧光显微镜定位
为评估来自酵母细胞色素c氧化酶亚基IV的线粒体定位信号(MLS)的线粒体靶向能力,我们通过荧光显微镜观察了共表达ATM1-mCherry(一种ATP结合盒Fe/S簇前体转运蛋白,用作线粒体标记)和MLS-GFP的酵母细胞。使用共聚焦荧光显微镜(Olympus FV1000)进行落射荧光显微镜观察。
【数据】仪器:共聚焦荧光显微镜(Olympus FV1000);标记物:ATM1-mCherry(线粒体标记)、MLS-GFP;MLS来源:酵母细胞色素c氧化酶亚基IV
2.5 分批与补料分批培养
菌株WB11用于在含2 L YPD培养基的5 L生物反应器(上海宝兴生物工程,中国)中进行分批和补料分批发酵。补料分批方案实施如下:初始生物反应器培养基为YPD,碳氮比(C/N)为7:1(即20 g/L蛋白胨、10 g/L酵母提取物、62.03 g/L葡萄糖)。将菌株WB11的活化单菌落接种到4 mL YPD培养基中,在30 °C(200 rpm)培养16 h,生成一级种子培养物。随后将一级种子培养物以10%(v/v)接种比例转移到含20 mL YPD培养基的100 mL锥形瓶中,培养20 h,制备成熟的二级种子培养物。接着将二级种子培养物转移到含200 mL YPD培养基的500 mL锥形瓶中(10% v/v接种比例),培养20 h,获得成熟的三级种子培养物。将三级种子培养物以10%(v/v)接种到5 L生物反应器(含2 L培养基)中,初始OD600为4.3。发酵参数控制如下:温度30 °C;空气流速3 vvm;溶解氧(DO)维持在30%以下(搅拌速度与DO偶联);pH稳定在约5.5。发酵开始时(0 h),添加15 mL金属离子-维生素混合物。在发酵12 h和24 h时分别补充250 mL肉豆蔻酸异丙酯。由于葡萄糖和乙醇在24 h时耗尽,进行葡萄糖补料,补料速率与OD600偶联。在168 h发酵期间共添加1 L葡萄糖补料培养基。
【数据】菌株:WB11;生物反应器:5 L(上海宝兴生物工程);培养基体积:2 L YPD;C/N比:7:1(20 g/L蛋白胨、10 g/L酵母提取物、62.03 g/L葡萄糖);一级种子:4 mL YPD、30°C、200 rpm、16 h;二级种子:20 mL YPD、10% v/v接种、20 h;三级种子:200 mL YPD、10% v/v接种、20 h;接种后初始OD600:4.3;温度:30°C;空气流速:3 vvm;DO:<30%;pH:~5.5;金属离子-维生素混合物:15 mL(0 h);IPM补充:250 mL(12 h)、250 mL(24 h);葡萄糖补料:1 L(168 h);补料速率:与OD600偶联
2.6 α-松油醇的提取、鉴定与定量
酿酒酵母菌株发酵后,取2 mL上层有机相转移到2 mL Eppendorf(EP)管中,12,000 rpm离心10 min。小心吸取澄清的上层有机相(避免杂质)到干净的2 mL EP管中,再次12,000 rpm离心5 min。用1 mL注射器提取有机相,通过0.22 μm有机膜过滤。将澄清滤液转移到HPLC样品瓶内衬管中,当天通过气相色谱-质谱联用(GC-MS)分析。α-松油醇检测在配备DB-5MS毛细管柱(Agilent;30 m × 0.25 mm × 0.25 μm)的Shimadzu GCMS-QP2010 Plus GC-MS系统上进行。检测条件设置如下:柱温箱温度250 °C;进样口温度300 °C;载气为氦气(流速1.0 mL/min);分流进样模式(进样体积1 μL;分流比10:1)。GC温度程序从80 °C开始,以20 °C/min升至280 °C,在280 °C保持28 min。MS扫描范围为45–750 m/z。通过制备不同浓度梯度的α-松油醇标准溶液,建立α-松油醇浓度与峰面积的校准曲线。
【数据】离心:12,000 rpm、10 min(两次,第二次5 min);过滤:0.22 μm有机膜;仪器:Shimadzu GCMS-QP2010 Plus;色谱柱:DB-5MS(30 m × 0.25 mm × 0.25 μm);柱温:250°C;进样口温度:300°C;载气:氦气、1.0 mL/min;进样体积:1 μL;分流比:10:1;GC程序:80°C起始,20°C/min升至280°C,保持28 min;MS扫描范围:45–750 m/z
2.7 培养基组分优化
在YPD培养基中,葡萄糖作为主要碳源,而酵母提取物和蛋白胨作为主要氮源。C/N的计算公式如下:C/N = [X/180.156 g·mol⁻¹ × 6] / [(10.9% × Y + 15.4% × Z)/14 g·mol⁻¹],其中X、Y和Z分别代表葡萄糖、酵母提取物和蛋白胨的浓度(g/L)。葡萄糖分子量取180.156 g/mol,每个葡萄糖分子含六个碳原子。酵母提取物和蛋白胨的总氮含量分别假定为10.9%和15.4%。氮原子量取14 g/mol。培养基优化考虑四个因素:(i)C/N比,(ii)初始pH,(iii)Mg²⁺浓度,(iv)有机覆盖层体积分数。使用DPS软件中的U6(64)方案生成包含6个实验运行的均匀设计(表S2),4因素6水平,其他参数设为默认值。该设计确保在最小化实验工作量的同时近乎均匀地覆盖因素空间。所有六种设计组合均进行三重重复。
【数据】C/N计算公式:C/N = [X/180.156 × 6] / [(10.9% × Y + 15.4% × Z)/14];葡萄糖分子量:180.156 g/mol;酵母提取物总氮含量:10.9%;蛋白胨总氮含量:15.4%;氮原子量:14 g/mol;优化因素:C/N比、初始pH、Mg²⁺浓度、有机覆盖层体积分数;实验设计:U6(64)均匀设计、6次运行、4因素6水平;重复:三重重复
研究结果
3.1 结构导向工程改造tVvTS提高α-松油醇产量
我们将tVvTS(去除N端28个氨基酸信号肽)导入酿酒酵母BY4742,构建菌株WB01。WB01发酵证实tVvTS在α-松油醇生物合成中具有功能(图S1)。然而,初始产量较低,仅达到0.05 mg/L(图1B)。为克服异源萜类合酶在体内表观性能低的问题,采用了半理性设计方法。由于VvTS缺乏晶体结构,我们使用SWISS-MODEL构建了高置信度同源模型。所得模型显示55.91%的序列同一性和0.82的GMQE评分,表明可靠性高。我们使用AutoDock软件对tVvTS蛋白和GPP配体进行预处理,然后用AutoDock Vina进行分子对接,并使用PyMOL可视化最佳对接构象。对酶功能关键的关键氨基酸残基通常位于结合口袋内或附近。因此,我们将距tVvTS配体结合口袋4 Å以内的残基鉴定为潜在关键残基。从对接构象中,我们选择了底物结合位点、结合口袋入口和其他相关区域的氨基酸残基进行进一步表征(图1A)。
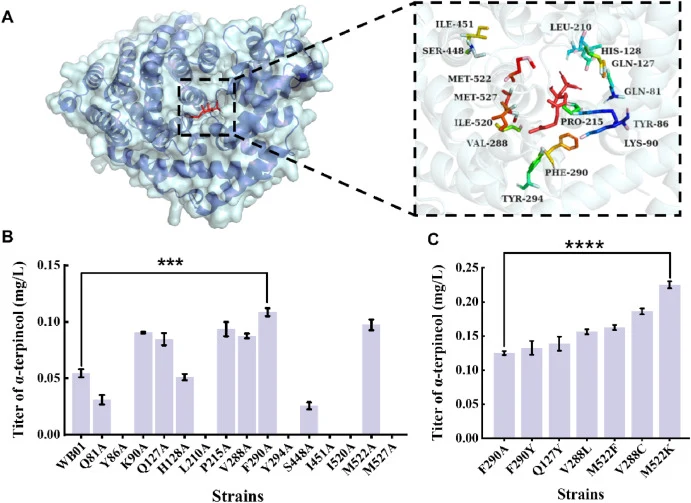
鉴定出的残基为Q81、Y86、K90、Q127、H128、L210、P215、V288、F290、Y294、S448、I451、I520、M522和M527。我们通过突变这些残基来改造tVvTS。首先,我们进行丙氨酸扫描以评估这些选定残基在tVvTS全细胞生产表型中的作用。每个残基单独替换为丙氨酸,将所得突变体构建体转化到酿酒酵母BY4742中。发酵结果见图1B。α-松油醇产量用作在相同宿主和培养条件下测试的tVvTS变体的全细胞功能输出,而非内在酶活性的直接测量。野生型tVvTS作为对照。丙氨酸扫描结果显示,15个突变体中有6个提高了α-松油醇产量:K90A、Q127A、P215A、V288A、F290A和M522A。在丙氨酸替换变体中,F290A突变体表现出最显著的增强,与菌株WB01相比,α-松油醇产量提高了120%(图1B)。由于所有酶变体均在相同宿主背景和相同培养条件下评估,相对产量提供了其表观体内功能性能的比较读数,尽管不能区分内在催化效应与表达、稳定性或细胞环境的差异。这些残基因此被确定为提高α-松油醇产量的关键位点,并被选用于第二轮饱和突变。我们在这6个关键位点进行了随机饱和突变。在所得突变体中,另有6个变体进一步改善了α-松油醇生物合成。M522K突变体表现最佳,α-松油醇产量比F290A突变体高1.77倍,比菌株WB01高4.60倍(图1C)。对接模型的结构检查表明,残基M522位于活性位点腔的外围,靠近GPP的焦磷酸部分。将中性疏水性甲硫氨酸替换为带正电荷的赖氨酸可能增加局部极性并加强与二磷酸基团的静电相互作用,这可能有利于生产性环化。此外,M522K替换似乎改变了残基522与对接GPP分子之间的空间关系,这可能影响底物定位和/或产物释放(图S2)。
【数据】菌株:WB01(BY4742 + tVvTS);初始产量:0.05 mg/L;同源模型:55.91%序列同一性、GMQE 0.82;关键残基:Q81、Y86、K90、Q127、H128、L210、P215、V288、F290、Y294、S448、I451、I520、M522、M527;丙氨酸扫描有效突变体:K90A、Q127A、P215A、V288A、F290A、M522A(6/15);F290A提升:120%(vs WB01);M522K提升:1.77倍(vs F290A)、4.60倍(vs WB01)
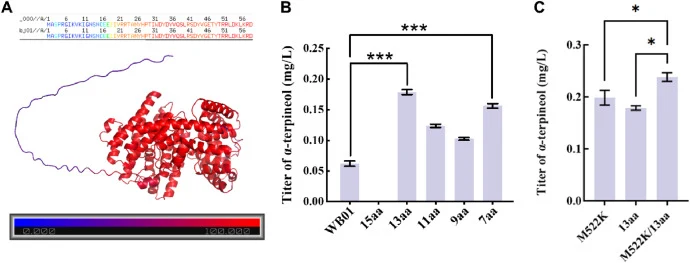
基于同源模型的结构分析显示,N端区域(前15个氨基酸)表现出较低的模型置信度评分(较高的预测局部误差),表明存在显著的结构柔性或无序(图2A)。在晶体学中,这种无序通常意味着这些区域对催化核心的稳定性并非必需。我们假设这条无序的N端尾部可能在酵母胞质中使蛋白质不稳定或空间阻碍底物进入。因此,我们设计了渐进截短(15aa、13aa、11aa、9aa和7aa),以避免损害全长蛋白的全细胞生产性能。渐进N端截短显示,去除13个氨基酸(tVvTS13aa)产生最佳全细胞生产表型,α-松油醇产量达到0.18 mg/L,比菌株WB01高3倍(图2B)。然而,截短15个氨基酸后未检测到α-松油醇。值得注意的是,截短15个氨基酸导致可检测的α-松油醇产量完全丧失,而截短13个氨基酸产生最高活性。这种急剧的边界效应表明残基13–15可能位于柔性N端尾部与催化核心之间的结构界面。过度截短后可检测产量的突然丧失表明,这些残基可能对维持生产性结构环境很重要,而非仅仅作为柔性延伸。随后我们进行组合突变,将两个最有效的变体(tVvTSM522K和tVvTS 13氨基酸截短)组合构建菌株WB02。该组合突变体进一步将α-松油醇产量提高到0.24 mg/L,较单个突变策略产生的突变体有显著改善。产量比菌株WB01高4.8倍(图2C)。
【数据】N端截短变体:15aa、13aa、11aa、9aa、7aa;最佳截短:13aa(tVvTS13aa),产量0.18 mg/L(3倍 vs WB01);15aa截短:未检测到α-松油醇;组合突变体WB02(M522K + 13aa截短):产量0.24 mg/L(4.8倍 vs WB01)
3.2 强化前体供应提高α-松油醇产量
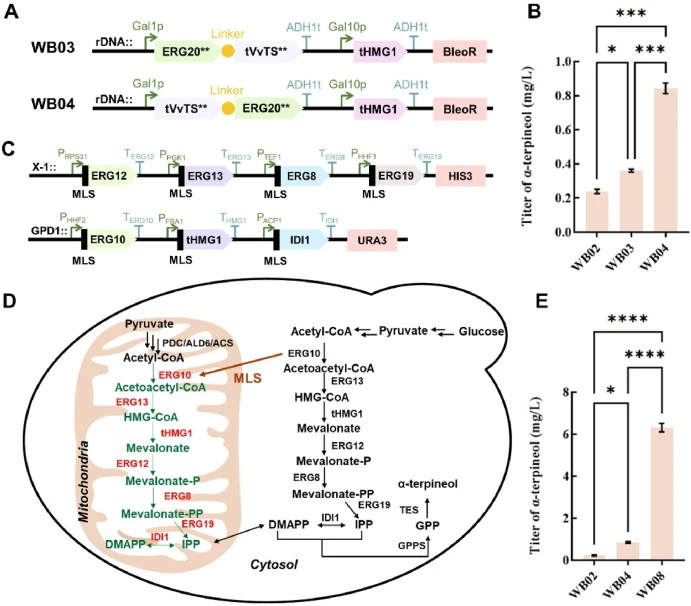
HMG-CoA还原酶是萜类生物合成的限速酶,表达其截短变体(tHMG1)已被证明可提高萜类产量。为增强α-松油醇前体供应,我们在酵母中表达tHMG1以将代谢流重定向至萜类合成(图3A)。GPP是α-松油醇的直接前体,也是Erg20催化的法尼基焦磷酸(FPP)合成的中间体。Erg20对GPP的亲和力高于tVvTSM522K/13aa,从而限制了tVvTSM522K/13aa的表观体内性能。为减轻Erg20介导的GPP消耗并确保单萜合酶有足够的前体,我们改造了Erg20F96W/N127W突变体(降低了对GPP的亲和力)。代谢通路中连续酶的空间邻近有利于底物通道效应并提高通量效率。因此,我们研究了将ERG20F96W/N127W与tVvTSM522K/13aa融合是否能提高α-松油醇产量。融合策略旨在潜在促进GPP生成酶(ERG20F96W/N127W)与GPP消耗型α-松油醇合酶之间更有效的中间体转移,从而减少胞质扩散和内源通路对GPP的竞争性消耗。酿酒酵母中的先前研究表明,融合表达在某些情况下可以优于单独共表达用于单萜生产。我们通过连接肽(GS)5分别将ERG20F96W/N127W融合到tVvTSM522K/13aa的N端和C端。这些融合构建体被整合到BY4742基因组的多拷贝rDNA位点,生成菌株WB03和WB04(图3A)。这些策略共同改善了α-松油醇生产。菌株WB04的α-松油醇产量增加更为显著,达到0.84 mg/L。该产量比亲本菌株WB02高3.5倍(图3B)。值得注意的是,这种3.5倍的产量提升与融合设计的可能益处一致,尽管本研究未包含严格的匹配单独表达对照来直接解析其潜在机制。tVvTS同源模型的结构分析表明,N端位于靠近柔性区域的位置——
【数据】菌株:WB03(ERG20F96W/N127W-(GS)5-tVvTSM522K/13aa)、WB04(tVvTSM522K/13aa-(GS)5-ERG20F96W/N127W);连接肽:(GS)5;整合位点:多拷贝rDNA位点;WB04产量:0.84 mg/L(3.5倍 vs WB02);tHMG1:HMG-CoA还原酶截短变体
讨论与解读
合成生物学已使多种植物来源单萜在酿酒酵母中生产成为可能,但α-松油醇的产量历史上一直落后于柠檬烯和芳樟醇等其他萜类。这一差距主要归因于α-松油醇合酶复杂的环化机制和前体GPP分支点的严格调控。本研究建立了一个组合工程框架,针对三个协同瓶颈:催化效率低下、前体分流和细胞毒性。最终菌株WB11在5 L生物反应器中实现了81.78 mg/L的产量,较初始菌株提高了1635.6倍。
在自然界中,单萜主要在植物质体中合成,单萜合酶通常在N端带有质体靶向转运肽。先前研究已证明,VvTS转运肽的截短对其在酿酒酵母中的催化活性不可或缺。在此前截短策略的基础上,我们进一步鉴定了tVvTS中的冗余序列。随后对tVvTS的截短实验表明,额外去除13个N端氨基酸使α-松油醇产量提高两倍,是测试条件下表现最佳的截短变体。值得注意的是,截短15个氨基酸导致α-松油醇水平无法检测。
编译者解读:本研究的方法论价值在于将计算辅助的半理性设计与系统的代谢通路工程相结合——从酶活性位点残基的丙氨酸扫描和饱和突变,到N端截短的精细边界探索,再到酶融合和线粒体区室化策略。1635.6倍的产量提升令人印象深刻,但81.78 mg/L的绝对产量仍远低于工业化需求。局限在于:融合策略缺乏严格的单独表达对照;产量提升主要依赖多拷贝整合和发酵优化,对酶催化效率本身的提升有限。未来或可结合定向进化与高通量筛选进一步突破催化瓶颈。
参考来源
期刊:Synthetic and Systems Biotechnology, 2026
DOI: 10.1016/j.synbio.2026.03.017
DOI: 10.1016/j.synbio.2026.03.017