来源:Identification of integration site library for the development of plasmid-free microbial cell factory in Bacillus subtilis(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
枯草芽孢杆菌是酶制剂生产的核心底盘,但其可用整合位点数量远少于启动子、RBS等表达元件,制约了无质粒稳定菌株的开发。本研究在基因组必需基因之间、两个反向非必需基因的3′-UTR区域筛选候选位点,构建了覆盖全基因组的36个位点整合文库。以GFP为报告基因评估后发现,12个位点表达强度与细胞生长均优于常用位点amyE,最高位点spxA表达量达amyE的1.89倍。该文库在LNTII、番茄红素和分泌型β-半乳糖苷酶生产中分别实现95%、83%和101%的产量或酶活提升。
研究背景
枯草芽孢杆菌(Bacillus subtilis)是一种革兰氏阳性细菌,被发现已近200年。作为最早完成基因组测序的细菌之一,其遗传背景与生理特性得到了广泛研究,并被美国食品药品监督管理局(FDA)授予“公认安全”(GRAS)地位。凭借优异的蛋白分泌能力,枯草芽孢杆菌最重要的应用领域是淀粉酶、蛋白酶和脂肪酶等酶制剂的生产。此外,它也是发酵工业中维生素B2生产的主要宿主,并随着合成生物学的进展正被开发为生产其他高附加值化学品的有效底盘。
作为应用广泛的模式细菌,枯草芽孢杆菌在合成生物学领域备受关注。启动子、RBS、终止子和复制子等遗传元件是合成生物学的基本构建模块,已针对枯草芽孢杆菌进行了表征和设计。这些遗传元件支撑了基于质粒的基因表达系统的开发与应用。利用基于质粒的表达系统,CRISPR-Cas9/Cas9 nickase/Cpf1基因编辑方法逐步在枯草芽孢杆菌中建立,加速了工程菌株的开发与基因表达调控。然而,质粒表达系统存在固有缺陷——质粒在传代过程中的丢失、抗生素抗性标记的依赖以及代谢负担等问题,使得染色体整合表达成为构建稳定无质粒细胞工厂的必然选择。但与表达元件相比,已鉴定的整合位点数量较少,限制了枯草芽孢杆菌的发展。本研究旨在开发一套枯草芽孢杆菌整合位点文库,以加速稳定、无质粒细胞工厂的构建。
研究方法
2.1 菌株、培养基与试剂
本研究使用的所有菌株列于表1。大肠杆菌DH5α或BL21(DE3)用于质粒构建。枯草芽孢杆菌168用于GFP的表达以及LNTII、番茄红素和β-半乳糖苷酶的生产。大肠杆菌和枯草芽孢杆菌168均在Luria Bertani(LB)培养基(10 g/L NaCl、10 g/L蛋白胨、5 g/L酵母提取物)中培养。用于番茄红素生产的发酵培养基含有:6 g/L蛋白胨、12 g/L酵母提取物、60 g/L葡萄糖、6 g/L (NH4)2SO4、12 g/L K2HPO4·3H2O、2.5 g/L KH2PO4、3 g/L MgSO4·7H2O、1.5 g/L尿素。用于LNTII生产时,向发酵培养基中添加20 g/L乳糖。LB培养基用于β-半乳糖苷酶的生产。必要时,添加奇霉素(50 μg/mL)用于质粒构建。添加氯霉素(5 μg/mL)或奇霉素(100 μg/mL)用于枯草芽孢杆菌转化子的筛选。PCR使用Takara PrimeSTAR® Max DNA Polymerase。质粒和凝胶提取试剂盒购自Yeasen(上海,中国),Smart Assembly Cloning Kit(Smart-Lifescience,常州,中国)用于质粒构建。LNTII和番茄红素标准品分别购自Yuanye(上海,中国)和Solarbio(北京,中国)。β-半乳糖苷酶检测试剂盒(Beyotime Biotechnology,上海,中国)和邻硝基苯酚(Aladdin,上海,中国)用于测定分泌型β-半乳糖苷酶的酶活。
【数据】菌株:大肠杆菌DH5α/BL21(DE3)、枯草芽孢杆菌168;培养基:LB(10 g/L NaCl、10 g/L蛋白胨、5 g/L酵母提取物);发酵培养基:6 g/L蛋白胨、12 g/L酵母提取物、60 g/L葡萄糖、6 g/L (NH4)2SO4、12 g/L K2HPO4·3H2O、2.5 g/L KH2PO4、3 g/L MgSO4·7H2O、1.5 g/L尿素;LNTII添加:20 g/L乳糖;抗生素:奇霉素50 μg/mL(质粒构建)、氯霉素5 μg/mL或奇霉素100 μg/mL(转化子筛选);温度:原文未详述;时间:原文未详述
2.2 质粒构建
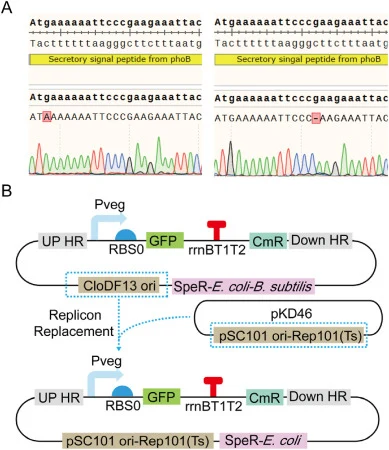
本研究使用的所有引物和质粒分别列于表S1和表S2。基因DNA序列(NmlgtA,GenBank:AAF42258.1;PacrtE,GenBank:BAA14124.1;PagcrtB,GenBank:AAA64982.1;BtcrtI,GenBank:AAX20903.1)经密码子优化后由Sangon Biotech(上海,中国)合成。EclacY(GenBank:NP_414877.1)和EclacZ(GenBank:AAA24053.1)从大肠杆菌基因组中扩增。分泌信号肽SPphoB从枯草芽孢杆菌基因组中扩增。所有质粒均采用Gibson组装方法构建。为构建GFP的位点整合质粒,从枯草芽孢杆菌基因组中扩增候选整合位点约700 bp的同源臂(tatCY和abrB位点的上游同源臂分别为400 bp和300 bp),并与GFP表达盒、氯霉素抗性基因及穿梭质粒骨架重组,后者从质粒pDG1662-loxp-Pveg-GFP-rrnBT1T2(补充表S2)中扩增。用于测试lacA、thrC、sacA、gltA和pyrD的同源臂扩增参考了文献[24,25]。启动子Pzwf和PlepA从枯草芽孢杆菌基因组中扩增。为构建NmlgtA、EclacY、PacrtE、PagcrtB、BtcrtI和EclacZ的位点整合质粒,首先构建相关整合位点的空质粒,即将GFP CDS替换为BsaI限制性位点,然后这些空质粒经BsaI线性化后与目标基因重组。为构建分泌蛋白的优化质粒,从pKD46中扩增pSC101复制子,并与不含奇霉素抗性基因的枯草芽孢杆菌空质粒骨架重组。
【数据】同源臂长度:约700 bp(tatCY和abrB上游同源臂分别为400 bp和300 bp);基因来源:NmlgtA(GenBank:AAF42258.1)、PacrtE(GenBank:BAA14124.1)、PagcrtB(GenBank:AAA64982.1)、BtcrtI(GenBank:AAX20903.1)、EclacY(GenBank:NP_414877.1)、EclacZ(GenBank:AAA24053.1);质粒骨架:pDG1662-loxp-Pveg-GFP-rrnBT1T2;复制子:pSC101(来自pKD46);方法:Gibson组装;限制性酶:BsaI;其他:原文未详述
2.3 菌株构建
枯草芽孢杆菌感受态细胞按照文献[7]的方法制备。为将目标基因整合到枯草芽孢杆菌染色体中,向感受态细胞中加入500 ng整合质粒,于37 °C孵育1.5 h,然后涂布于含5 mg/L氯霉素的LB平板。使用克隆PCR验证整合。将辅助质粒pDR244Cre转化到整合菌株中,菌株在30 °C培养36 h以充分表达Cre重组酶并移除氯霉素筛选标记。随后,经PCR验证的菌株在无抗生素LB培养基中于37 °C培养48 h以消除辅助质粒。
【数据】质粒用量:500 ng;孵育温度:37 °C;孵育时间:1.5 h;氯霉素浓度:5 mg/L;Cre重组酶表达温度:30 °C;Cre表达时间:36 h;辅助质粒消除温度:37 °C;消除时间:48 h
2.4 荧光与生物量测定
用于评估候选整合位点的构建菌株在2 mL LB中于37 °C过夜培养,然后将200 μL种子培养液转移到含20 mL LB的100 mL摇瓶中,于37 °C培养24 h。为测定GFP荧光强度,将100 μL细胞培养液注入96孔黑色板中,使用酶标仪(Agilent BioTek Synergy H1)测定。GFP荧光强度的激发波长为490 nm,发射波长为530 nm,增益值为50。使用紫外-可见分光光度计测定600 nm处细胞光密度以指示生物量。相对荧光单位(RFU)定义为每OD600的GFP荧光强度(GFP荧光强度/OD600)。
【数据】种子培养:2 mL LB、37 °C、过夜;转接量:200 μL至100 mL摇瓶(20 mL LB);培养温度:37 °C;培养时间:24 h;荧光检测:100 μL、激发波长490 nm、发射波长530 nm、增益值50;OD检测:600 nm;RFU定义:GFP荧光强度/OD600
2.5 摇瓶发酵
对于LNTII和番茄红素的生产,工程菌株在2 mL LB中于37 °C过夜培养,然后将种子培养液转移到含20 mL发酵培养基的100 mL摇瓶中,初始OD600为0.1,LNTII于37 °C发酵48 h,番茄红素于37 °C发酵72 h。对于β-半乳糖苷酶的生产,工程菌株在2 mL LB中于37 °C过夜培养,然后将1%(v/v)种子培养液转移到含20 mL LB培养基的100 mL摇瓶中,发酵48 h。所有发酵实验均设三个平行。
【数据】种子培养:2 mL LB、37 °C、过夜;初始OD600:0.1;LNTII发酵:20 mL发酵培养基、37 °C、48 h;番茄红素发酵:20 mL发酵培养基、37 °C、72 h;β-半乳糖苷酶发酵:1%(v/v)接种量、20 mL LB、48 h;平行数:3
2.6 样品制备与分析
LNTII的样品制备过程参考先前报道的方法[26]。使用配备蒸发光散射检测器(ELSD,Waters 2424)和酰胺柱(250 mm × 4.6 mm,0.50 μm)的高效液相色谱(HPLC,Waters 2695)对LNTII进行定性和定量分析,HPLC的详细参数设置与葡萄糖检测相同[27]。取500 μL番茄红素发酵培养液,12000 rpm离心5 min收集细胞沉淀,然后加入等体积含1%丁基羟基甲苯的丙酮与细胞沉淀混合,按先前描述的方法提取胞内番茄红素[28]。番茄红素的定性和定量分析使用配备C18柱(250 mm × 4.6 mm,0.50 μm)的超高效液相色谱(UHPLC,Thermo Scientific Dionex Ultimate 3000)。HPLC的详细参数设置参考先前方法[29]。
【数据】LNTII检测:HPLC(Waters 2695)、ELSD(Waters 2424)、酰胺柱(250 mm × 4.6 mm,0.50 μm);番茄红素提取:500 μL培养液、12000 rpm、5 min、等体积丙酮(含1%丁基羟基甲苯);番茄红素检测:UHPLC(Thermo Scientific Dionex Ultimate 3000)、C18柱(250 mm × 4.6 mm,0.50 μm)
2.7 β-半乳糖苷酶酶活分析
为测定分泌型β-半乳糖苷酶的酶活,取500 μL β-半乳糖苷酶发酵培养液,12000 rpm离心5 min,将10 μL上清液与40 μL ddH2O和50 μL反应试剂混合,于37 °C孵育30 min。孵育后,向样品中加入150 μL终止试剂,在420 nm处测定反应产物邻硝基苯酚的光密度,并根据邻硝基苯酚标准曲线定量。分泌型β-半乳糖苷酶的酶活(U)定义为1 mL上清液在1 min内产生的邻硝基苯酚量(1U = 1 nmol邻硝基苯酚/min/mL)。
【数据】离心:500 μL、12000 rpm、5 min;反应体系:10 μL上清+40 μL ddH2O+50 μL反应试剂;孵育:37 °C、30 min;终止试剂:150 μL;检测波长:420 nm;酶活定义:1U = 1 nmol邻硝基苯酚/min/mL
研究结果
3.1 枯草芽孢杆菌整合位点文库的构建
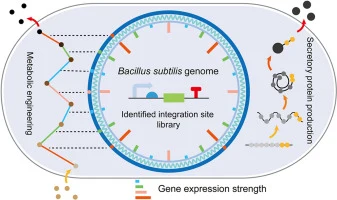
合适的候选整合位点选择应兼顾整合基因的稳定性和对内源基因的影响。当使用重复的启动子、CDS或终止子在两个或多个整合位点表达目标基因时,这些位点可能发生同源重组介导的等位基因替换,增加工程菌株的不稳定性。为确保多个整合位点的稳定使用,候选整合位点选在必需基因之间,这样不稳定菌株会因必需基因缺失而自动消除(图1A)[30]。此外,为避免整合基因对内源基因的破坏并尽量减少对必需基因表达的影响,候选整合位点进一步选在两个反向非必需基因的3′-UTR区域(图1B)。因此,根据上述特征构建了一个整合位点文库,包含全基因组范围内的36个候选位点。
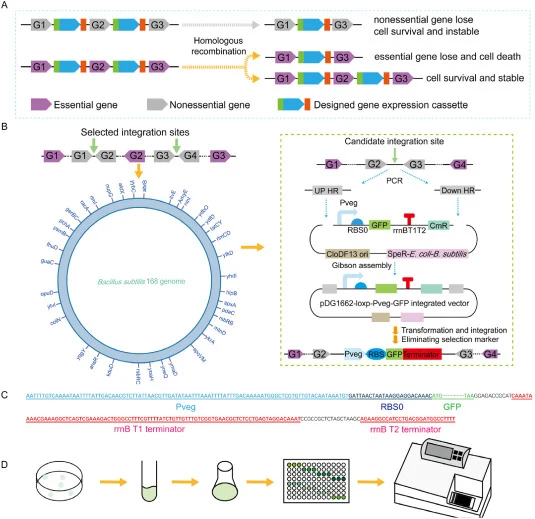
为评估整合位点文库的性能,将绿色荧光蛋白(GFP)整合到候选位点中,并在强组成型启动子Pveg的控制下表达(图1C)[7]。为分析基因表达水平和细胞生长,测定了相对荧光强度(RFU)和OD600,并以常用整合位点amyE作为对照(图1D)。如图2A所示,所有候选位点均可用于整合和表达GFP,且候选位点间的相对荧光强度和OD600存在显著差异。19个候选位点的RFU高于amyE位点,最高RFU出现在spxA位点,为amyE位点的1.89倍,且与在amyE位点表达GFP的菌株相比,高GFP表达并未影响相关菌株的生长。17个候选位点的RFU低于amyE位点,其中ansR位点RFU最低,仅为amyE位点表达量的63.3%(图2B)。
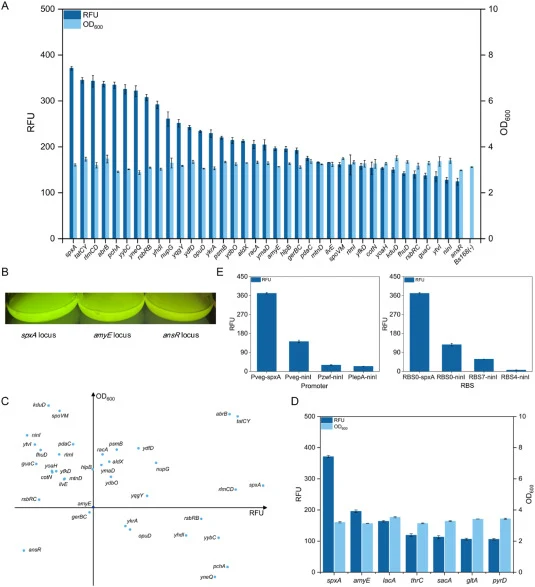
基因表达水平和菌株生长状态均是整合位点的重要评价参数。因此,以RFU和OD600为X轴和Y轴构建二维坐标系,直观比较候选整合位点与amyE位点的性能。如图2C所示,在所选位点中,12个位点(spxA、tatCY、rlmCD、abrB、nupG、yqgY、ydfD、psmB、ydbO、aldX、racA和ymaD)不仅RFU高于amyE位点,而且细胞密度也更高,这些位点适合需要相对高表达的基因整合。与amyE位点相比,整合位点hlpB的RFU相似但细胞密度更高,可作为amyE位点的替代用于基因整合和表达。此外,14个位点(pdaC、mtnD、ilvE、spoVM、rlmI、yfkD、cotN、yoaH、kduD、fhuD、rsbRC、guaC、ninI和ytvI)的RFU低于amyE位点但细胞密度更高,这些位点适合需要相对低表达的基因整合。其余9个位点的细胞密度较低,意味着当目标基因整合在这些位点时细胞生长会受到抑制。
为进一步评估所鉴定位点spxA在已报道的枯草芽孢杆菌整合位点中的表达水平,选取了另外五个已报道的整合位点lacA、thrC、sacA、gltA和pyrD[24,25]进行比较。结果显示,所鉴定位点spxA的基因表达水平高于所有测试的对照位点,该位点具有在基因组中高表达基因的潜力(图2D)。使用所鉴定的整合位点文库,在不改变启动子和RBS的情况下可实现3倍的基因表达范围,通过将所鉴定整合位点与另一个启动子(PlepA)或RBS(RBS4)[7]组合,基因表达范围可进一步扩展至15.3倍或54.6倍(图2E)。所鉴定的整合位点文库不仅可用于通过平衡目标蛋白产量和细胞生长来生产分泌蛋白,还可用于代谢工程,通过调控代谢网络和通量来提高有价值化合物的产量。
【数据】候选位点总数:36个;RFU高于amyE的位点数:19个;最高RFU位点:spxA(为amyE的1.89倍);RFU低于amyE的位点数:17个;最低RFU位点:ansR(为amyE的63.3%);RFU和细胞密度均优于amyE的位点数:12个(spxA、tatCY、rlmCD、abrB、nupG、yqgY、ydfD、psmB、ydbO、aldX、racA、ymaD);RFU相似但细胞密度更高的位点:hlpB;RFU低但细胞密度高的位点数:14个(pdaC、mtnD、ilvE、spoVM、rlmI、yfkD、cotN、yoaH、kduD、fhuD、rsbRC、guaC、ninI、ytvI);细胞密度低的位点数:9个;基因表达范围(不换启动子/RBS):3倍;与PlepA组合:15.3倍;与RBS4组合:54.6倍
3.2 利用所鉴定整合位点构建枯草芽孢杆菌细胞工厂生产有价值化学品
枯草芽孢杆菌是最常见的微生物底盘之一,已被开发为生产有价值化学品的细胞工厂。选取胞外和胞内分子综合评估所鉴定整合位点在枯草芽孢杆菌细胞工厂开发中的可用性。人乳寡糖(HMOs)是一类复杂的寡糖,对婴儿生长具有有益作用[31]。乳-N-三糖II(LNTII)是乳-N-四糖和乳-N-新四糖(LNnT)的关键前体[32],被选作目标胞外分子以验证利用所鉴定整合位点构建枯草芽孢杆菌细胞工厂的可行性。
为生产LNTII,需向枯草芽孢杆菌中引入β-1,3-N-乙酰氨基葡萄糖转移酶(lgtA)和乳糖通透酶(lacY),以将乳糖转运进入细胞并与UDP-N-乙酰氨基葡萄糖缩合产生LNTII(图3A)。因此,将来自大肠杆菌的lacY(EclacY)和来自脑膜炎奈瑟菌的lgtA(NmlgtA)分别整合到guaC和amyE位点,在Pveg启动子控制下表达。所得菌株BSLNTII-1产生146.8 mg/L LNTII,表明所鉴定整合位点guaC可与常用整合位点amyE并行使用。据报道LgtA是LNTII生物合成中的限速酶,LgtA的过量产生会显著增加LNnT的产量[26]。为提高LNTII产量,将NmlgtA转移到本研究中鉴定的高表达整合位点abrB,所得菌株BSLNTII-2产生287.1 mg/L LNTII,为BSLNTII-1的1.95倍。该结果证实,相对于常用整合位点amyE,abrB位点可实现整合基因的更高表达。关键基因的多拷贝整合是克服代谢工程限速步骤的常用策略。因此,将另一个拷贝的NmlgtA整合到BSLNTII-2的amyE位点以构建BSLNTII-3。工程菌株BSLNTII-3最终产生463.6 mg/L LNTII,比BSLNTII-1高2.1倍。这些为LNTII开发的工程菌株表明,所鉴定整合位点可用于构建枯草芽孢杆菌细胞工厂以生物合成胞外产物。
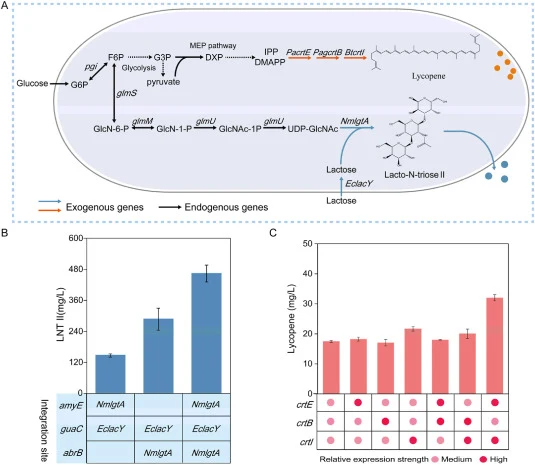
由于存在强大的前体生物合成能力,枯草芽孢杆菌在萜类化合物生物合成方面比大肠杆菌更具优势[33]。番茄红素是一种胞内代谢物,是类胡萝卜素的关键前体,对人体健康有多种益处[34]。因此,我们利用所鉴定整合位点改造枯草芽孢杆菌生产番茄红素,以评估其生产胞内化学品的能力。为生物合成番茄红素,需向枯草芽孢杆菌中引入三个异源基因——牻牛儿基牻牛儿基焦磷酸合酶(crtE)、八氢番茄红素合酶(crtB)和八氢番茄红素脱饱和酶(crtI),以将异戊烯基焦磷酸(IPP)和二甲基烯丙基焦磷酸(DMAPP)转化为番茄红素。因此,将来自菠萝泛菌的crtE(PacrtE)、来自成团泛菌的crtB(PagcrtB)和来自三孢布拉霉的crtI(BtcrtI)分别整合到所鉴定位点ydfD、psmB和aldX,在Pveg启动子控制下表达以构建BS。
【数据】LNTII产量:BSLNTII-1 = 146.8 mg/L;BSLNTII-2 = 287.1 mg/L(为BSLNTII-1的1.95倍);BSLNTII-3 = 463.6 mg/L(比BSLNTII-1高2.1倍);整合位点:guaC(EclacY)、amyE(NmlgtA)、abrB(NmlgtA)、amyE(NmlgtA第二拷贝);番茄红素基因整合位点:ydfD(PacrtE)、psmB(PagcrtB)、aldX(BtcrtI);启动子:Pveg
3.3 利用所鉴定整合位点构建产分泌型β-半乳糖苷酶的枯草芽孢杆菌细胞工厂
讨论与解读
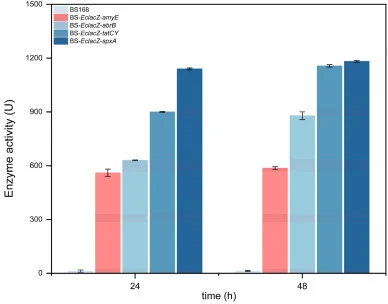
本研究开发了一套枯草芽孢杆菌整合位点文库。所有整合位点选在两个反向非必需基因的3′-UTR区域,以避免破坏内源基因的启动子或CDS,并通过必需基因分隔,确保多个位点同时使用时的稳定性。12个整合位点表现出更高的基因表达强度和更低的细胞生长影响,最高基因表达出现在spxA位点,比amyE位点高89%。利用所开发的整合位点文库,在不替换启动子和RBS的情况下可实现3倍的基因表达范围,通过结合启动子或RBS设计可进一步扩展至15.3倍或54.6倍。当整合文库用于构建枯草芽孢杆菌细胞工厂时,LNTII和番茄红素的产量分别提高了95%和83%。此外,构建了一个新的整合型穿梭载体,使在大肠杆菌中具有高转录活性的强组成型启动子能够用于枯草芽孢杆菌分泌蛋白的生产。基于该新穿梭载体,使用所鉴定整合位点spxA的分泌型β-半乳糖苷酶酶活比整合在amyE位点的提高了101%。所开发的整合位点文库可丰富枯草芽孢杆菌的遗传元件,加速无质粒枯草芽孢杆菌细胞工厂的开发。
编译者解读:该研究的核心价值在于将整合位点从“经验性选择”推进到“文库化筛选”。以必需基因作为基因组稳定性屏障、以双向非必需基因3′-UTR作为安全港的策略,在合成生物学中兼顾了整合安全性与表达可调性。3倍至54.6倍的表达调控范围意味着研究者可以在不更换启动子的前提下精细调节代谢通量,这对多基因途径的平衡优化尤为实用。局限在于,文库目前仅在GFP和少数产物中验证,位点在不同遗传背景或胁迫条件下的稳定性仍有待更系统的评估。
参考来源
期刊:Synthetic and Systems Biotechnology, 2027
DOI: 10.1016/j.synbio.2026.04.042
DOI: 10.1016/j.synbio.2026.04.042