来源:Enhanced production of l-histidine in Escherichia coli through systematic metabolic engineering and CER controlled fermentation(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
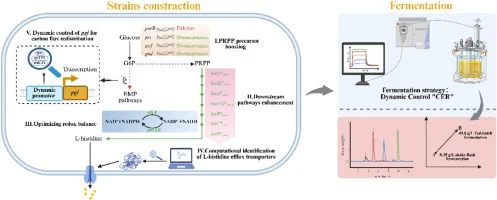
L-组氨酸是医药与营养领域的重要必需氨基酸,微生物发酵法替代化学合成已成为趋势。本研究以大肠杆菌MG1655为底盘,从粘质沙雷氏菌高产突变株中挖掘抗反馈抑制的hisG*与整套突变his操纵子,结合前体供给强化、氧化还原平衡调控、机器学习预测外排转运蛋白Cgl1374、生长阶段依赖型pgi动态调控,以及基于CO₂释放速率(CER)的补料分批发酵控制策略,在5 L生物反应器中实现49.8 g/L的L-组氨酸产量,葡萄糖得率0.265 g/g,为已报道工程化大肠杆菌的最高水平。
研究背景
L-组氨酸兼具生物活性与多功能性,广泛用于健康补充剂、动物饲料和药物领域。作为必需氨基酸,成人与婴儿均需外源补充。其衍生代谢物——麦角硫因、肌肽和组胺——参与代谢调节、免疫应答,并可作为癌症与帕金森病的治疗剂。超过40%的已批准单克隆抗体(mAb)制剂中含组氨酸或盐酸组氨酸以保障稳定性。
传统L-组氨酸制造依赖化学合成或蛋白质水解,两者均有局限。化学合成产生外消旋混合物并伴随环境污染风险;蛋白质水解法受限于天然蛋白质资源的可获得性。微生物发酵因此成为更可持续、成本更低的大规模生产替代方案。
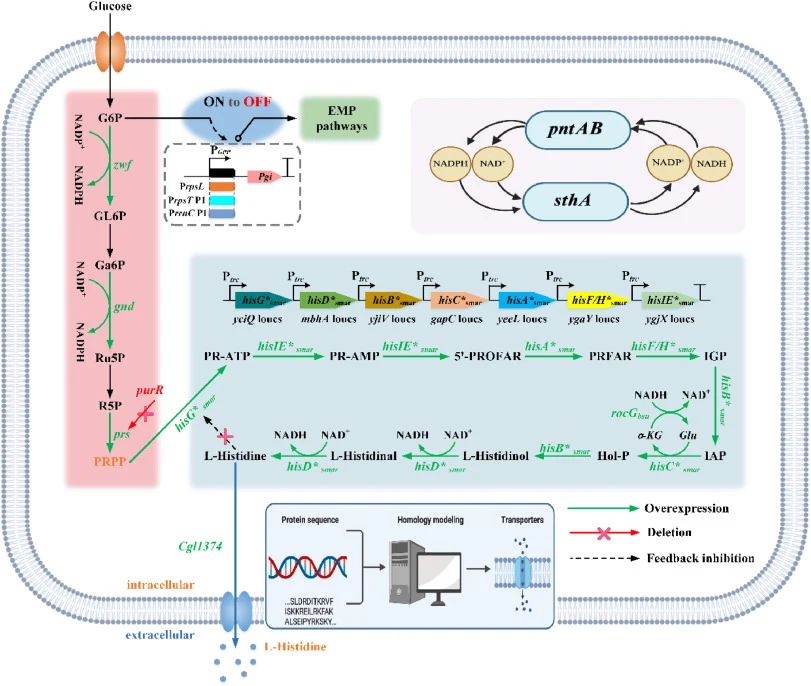
L-组氨酸生物合成途径普遍分布于细菌、真菌和古菌中。以磷酸核糖焦磷酸(PRPP)和三磷酸腺苷(ATP)为前体,该途径经his操纵子编码的九种酶催化十步酶促反应完成(图1)。
研究方法
2.1 菌株、培养基与试剂
本研究使用的所有细菌菌株和质粒列于补充材料中。大肠杆菌MG1655作为构建L-组氨酸细胞工厂的亲本菌株。大肠杆菌DH5α用于质粒构建,谷氨酸棒杆菌ATCC 13032和枯草芽孢杆菌168用作基因来源。大肠杆菌细胞在Luria–Bertani(LB)培养基中培养,必要时补充壮观霉素(100 μg/mL)或氨苄青霉素(100 μg/mL)。重组菌株根据需要在32、37或42 °C下培养。异丙基-β-D-1-硫代吡喃半乳糖苷(IPTG)和L-阿拉伯糖作为诱导剂分别以0.2 mmol/L和2 g/L的浓度添加。种子培养基包含25 g/L葡萄糖、5 g/L酵母提取物、1 g/L蛋白胨、1 g/L柠檬酸、1.8 g/L K₂HPO₄·3H₂O、0.5 g/L MgSO₄·7H₂O、10 mg/L MnSO₄·H₂O、10 mg/L FeSO₄·7H₂O和1 mg/L维生素B混合物(pH 6.5−7.5)。发酵培养基包含20 g/L葡萄糖、4 g/L酵母提取物、2 g/L柠檬酸、3.5 g/L K₂HPO₄·3H₂O、1.8 g/L MgSO₄·7H₂O、0.2 g/L甲硫氨酸、10 mg/L MnSO₄·H₂O、20 mg/L FeSO₄·7H₂O、1 g/L谷氨酸钠和2 mg/L维生素B混合物(pH 6.5−7.5)。维生素B混合物含1 g/L VB1、1 g/L VB3、1 g/L VB5和1 g/L VB12。摇瓶发酵期间添加酚红(8 mg/L)。PrimeSTAR HS DNA聚合酶、PCR试剂和DNA纯化试剂盒购自Takara(北京,中国)。酵母提取物和蛋白胨购自Lesaffre(上海,中国)。无机盐购自国药集团化学试剂有限公司(上海,中国)。抗生素和氨基酸购自阿拉丁(上海,中国)。
【数据】壮观霉素:100 μg/mL;氨苄青霉素:100 μg/mL;培养温度:32/37/42 °C;IPTG:0.2 mmol/L;L-阿拉伯糖:2 g/L;种子培养基葡萄糖:25 g/L;发酵培养基葡萄糖:20 g/L;酚红:8 mg/L;pH:6.5−7.5
2.2 CRISPR/Cas9基因组编辑系统
补充材料中列出了本研究使用的引物。基因缺失和整合使用基于CRISPR/Cas9的基因编辑系统完成[22]。用于CRISPR/Cas9介导基因编辑系统的质粒pREDCas9和pGRB由天津大学陈涛教授惠赠[23]。以gnd与假基因rph位点的整合为参考,含yciQ同源臂和P_trc-hisG_smar-T_trc的供体DNA通过重叠PCR获得。以大肠杆菌MG655为模板,使用引物对yciQ−U–S/yciQ-U-A、hisG_smar-S/hisG*_smar-A和yciQ-D-S/yciQ-D-A。为构建质粒pGRB-yciQ,靶向yciQ的序列使用P-yciQ-S和P-yciQ-A退火形成双链DNA。线性化pGRB载体通过引物pGRB-S和pGRB-A经PCR获得。然后,靶向yciQ的序列通过同源重组与线性化pGRB载体连接。将pGRB-yciQ质粒和供体DNA共转化至感受态ZL4中。在LB培养基中培养1 h后,将细胞涂布于含100 μg/mL氨苄青霉素和50 μg/mL壮观霉素的LB琼脂平板上。使用菌落PCR筛选阳性克隆,并通过DNA测序鉴定。
【数据】壮观霉素:50 μg/mL;氨苄青霉素:100 μg/mL;培养时间:1 h;培养温度:原文未详述
2.3 全基因组测序
粘质沙雷氏菌CGMCC No. 19116的基因组DNA使用GenElute细菌DNA试剂盒(Sigma-Aldrich,德国)按照制造商方案提取。粘质沙雷氏菌CGMCC No. 19116的基因组DNA在广州基迪奥生物科技有限公司(广州,中国)使用RS II平台(PACB,Pacific Biosciences,美国)和NovaSeq 6000(Illumina,美国)测序。三代测序reads使用Falcon软件组装。二代测序reads使用Pilon(版本1.23)比对到组装后的基因组序列,并根据软件默认参数校正基因组结果。野生型菌株粘质沙雷氏菌SM39和先前获得的高产L-组氨酸突变株粘质沙雷氏菌CGMCC No.19116的基因组使用LASTZ(http://www.bx.psu.edu/miller_lab/dist/README.lastz-1.02.00/)和MUMMer软件(http://mummer.sourceforge.net/)进行比较[24]。以粘质沙雷氏菌SM39完整基因组作为参考序列(NCBI参考序列:AP013063.1)。
【数据】测序平台:PacBio RS II和Illumina NovaSeq 6000;组装软件:Falcon;校正软件:Pilon版本1.23;比较软件:LASTZ和MUMMer;参考基因组:AP013063.1
2.4 转运蛋白预测
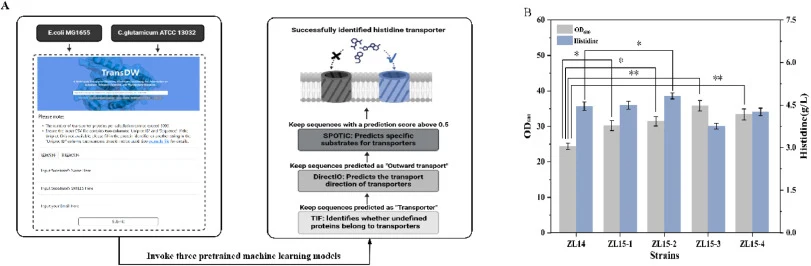
大肠杆菌MG1655和谷氨酸棒杆菌ATCC13032的蛋白质组数据集从NCBI下载。蛋白质序列使用内部Python脚本处理以生成CSV预测文件。L-组氨酸底物信息以InChI格式编码。TransDW网络服务器(https://www.mtc-lab.cn/TransDW)使用三种预训练模型预测转运蛋白:i)UTP模型(识别所有转运蛋白);ii)DirectIO模型(预测底物转运蛋白的方向);iii)SPOTIC模型(预测转运蛋白与特定底物结合的可能性)。计算完成后,服务器将生成综合预测报告并发送至用户浏览器。
【数据】蛋白质组数据集来源:NCBI;底物编码格式:InChI;预测模型:UTP、DirectIO、SPOTIC;服务器地址:https://www.mtc-lab.cn/TransDW
2.5 摇瓶发酵
产L-组氨酸菌株接种到含30 mL种子培养基的500 mL摇瓶中,在37 °C(180 rpm)下培养至OD₆₀₀约10。将种子培养液(3 mL)转移至含30 mL发酵培养基的500 mL挡板摇瓶中,在37 °C、180 rpm下培养28 h。发酵过程中,使用氨水(25% v/v)将pH维持在6.5 ± 0.2(基于培养基颜色变化),当葡萄糖耗尽时添加1 mL葡萄糖溶液(60% w/v)。
【数据】摇瓶体积:500 mL;种子培养基体积:30 mL;接种量:3 mL;发酵培养基体积:30 mL;温度:37 °C;转速:180 rpm;发酵时间:28 h;pH:6.5 ± 0.2;氨水浓度:25% v/v;葡萄糖溶液:60% w/v,1 mL
2.6 5 L生物反应器补料分批发酵
在琼脂斜面培养的重组菌株转移至含2.5 L发酵培养基的5 L生物反应器(平行生物反应器系统,上海,中国)中,在37 °C下培养至OD₆₀₀达到15–20。随后,将400 mL种子培养液接种至另一个含2.5 L发酵培养基的5 L生物反应器中。温度和溶解氧分别维持在34 °C和15–45%。整个发酵过程中,pH值(7.1–7.3)使用氨水自动维持。当初始培养基中葡萄糖耗尽时,自动供给无菌葡萄糖溶液(80%,w/v)。
【数据】生物反应器体积:5 L;发酵培养基体积:2.5 L;种子培养温度:37 °C;种子OD₆₀₀:15–20;接种体积:400 mL;发酵温度:34 °C;溶解氧:15–45%;pH:7.1–7.3;补料葡萄糖浓度:80% w/v
2.7 分析方法
细胞密度在600 nm(OD₆₀₀)下使用紫外分光光度计测定。培养上清液离心后,L-组氨酸使用日立L-8900氨基酸分析仪(日立,日本)定量,色谱柱为4.6 × 60 mm(3 μm树脂)。流速:0.4 mL/min;衍生化温度:135 °C;检测波长:570 nm和440 nm。
【数据】检测波长:570 nm和440 nm;流速:0.4 mL/min;衍生化温度:135 °C;色谱柱:4.6 × 60 mm,3 μm树脂
2.8 统计分析
所有实验均进行三次重复,数据以平均值 ± 标准差(SD)表示。使用GraphPad Prism 8.3.0通过双尾Student's t检验评估统计显著性,p < 0.05。
【数据】重复次数:3;显著性阈值:p < 0.05;软件:GraphPad Prism 8.3.0
研究结果
3.1 粘质沙雷氏菌高产L-组氨酸突变株中his操纵子突变的鉴定
近年来,合成生物学的进步使得结合诱变、高通量筛选和比较基因组学的整合方法成为可能,为优化微生物细胞工厂提供了有效策略[25]。比较基因组学尤其能够在全基因组范围内比较野生型与工程菌株,以鉴定理想表型背后的突变,指导理性的代谢工程改造。在前期工作中,本实验室通过ARTP诱变和筛选野生型粘质沙雷氏菌SM39获得了高产L-组氨酸突变株粘质沙雷氏菌CGMCC No.19116,并作为实验室保藏菌株保存。本研究中,该突变株用于全基因组重测序和比较基因组分析。CGMCC No.19116在5 L生物反应器中产生20.3 g/L L-组氨酸。为揭示该表型的遗传基础,我们使用PacBio(三代)和Illumina(二代)平台进行混合基因组测序,关键基因组特征总结于表1。与粘质沙雷氏菌SM39参考基因组比较,揭示了his操纵子中多个与L-组氨酸生物合成密切相关的突变。具体而言,在操纵子的全部九个基因(hisG、hisD、hisB、hisC、hisA、hisF/H和hisIE)中鉴定到非同义替换和一个插入,表明酶活性改变可能有助于该菌株的高产表型(表2)。这些结果鉴定了可验证的遗传元件,可支持大肠杆菌基L-组氨酸生产菌株的理性途径工程。
【数据】产量:20.3 g/L(5 L生物反应器);测序平台:PacBio和Illumina;突变基因数:9个(hisG、hisD、hisB、hisC、hisA、hisF/H、hisIE);突变类型:非同义替换和1个插入
3.2 大肠杆菌中L-组氨酸核心生物合成途径的改造
#### 3.2.1 HisG变体的筛选以提高L-组氨酸产量
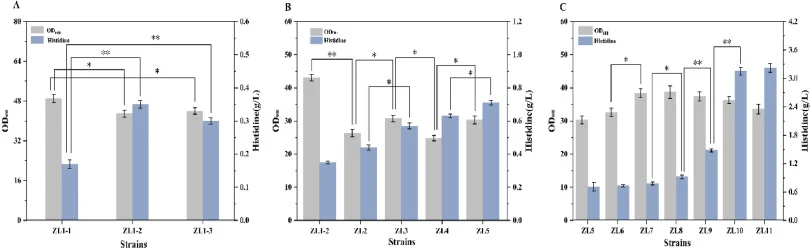
在大肠杆菌中,ATP磷酸核糖基转移酶(HisG)催化L-组氨酸生物合成的第一步,并受L-组氨酸的反馈抑制[26]。为缓解这一限速约束,已开发出降低对L-组氨酸结合敏感性的工程化HisG突变体[27]。先前对来自大肠杆菌(HisGeco)或谷氨酸棒杆菌(HisGcgl)的五个HisG变体的系统评估鉴定出HisGcgl S143F能够实现最大L-组氨酸产量[17]。本研究筛选了三种HisG酶:来自粘质沙雷氏菌的野生型HisGsmar、来自粘质沙雷氏菌CGMCC No.19116的突变体HisGsmar,以及谷氨酸棒杆菌HisGcgl S143F。编码这些酶的基因由trc启动子控制,分别整合到大肠杆菌ZL1的yciQ染色体位点,生成重组菌株ZL1-1、ZL1-2和ZL1-3。如图2A所示,这些hisG变体的过表达显著影响了L-组氨酸产量和细胞生长。表达hisGsmar的菌株ZL1-2产生0.35 g/L L-组氨酸,相比ZL1-1和ZL1-3分别增加105%和16.7%。此外,携带野生型hisGsmar的菌株ZL1-1虽然最终OD₆₀₀最高,但L-组氨酸产量最低。为进一步评估hisGsmar的优越性能是否与细胞水平上对反馈压力敏感性降低有关,进行了外源L-组氨酸补充实验。当向发酵培养基中添加递增浓度的L-组氨酸(0–5 mM)时,所有三株菌的L-组氨酸产量均下降。然而,在递增的胞外组氨酸浓度下,菌株ZL1-2始终维持比ZL1-1和ZL1-3更高的L-组氨酸滴度(表S5)。特别是,ZL1-2在反馈压力下保留了更大比例的生产能力,而ZL1-1下降最为显著。此外,为初步了解hisGsmar性能改善的结构基础,我们基于已报道的结核分枝杆菌ATP磷酸核糖基转移酶晶体结构(MtATP-PRT;PDB ID:1NH7)[28]比较了HisGsmar和HisGsmar的预测结构,其中参与L-组氨酸介导的变构抑制的残基已被实验表征。分析表明,HisGsmar中几个参与组氨酸识别的推定残基(Glu246、Thr252和Ala286)比HisGsmar中距离推定组氨酸结合区域更远,这可能部分解释了其对L-组氨酸介导的反馈抑制敏感性降低的原因(图S2)。这些结果表明,hisG*smar是本研究使用的工程化大肠杆菌背景中提高L-组氨酸产量的优越HisG变体。
【数据】ZL1-2产量:0.35 g/L;相比ZL1-1增加:105%;相比ZL1-3增加:16.7%;外源L-组氨酸浓度:0–5 mM;关键残基:Glu246、Thr252、Ala286;PDB ID:1NH7
#### 3.2.2 PRPP前体增强
在大肠杆菌中,L-组氨酸生物合成始于HisG催化的磷酸核糖基从PRPP转移至ATP的腺嘌呤环,形成磷酸核糖基-ATP(PR-ATP)[29]。PRPP作为L-组氨酸碳骨架的唯一供体,是触发合成途径的关键底物[18]。因此,通过优化prs表达[30]、解除反馈抑制[31]或强化磷酸戊糖途径(PPP)[23]等策略增强PRPP供给,构成提高L-组氨酸产量的代谢工程核心方法。PRPP生物合成主要依赖PRPP合成酶(由prs基因编码),该酶催化核糖-5-磷酸(R5P)和ATP缩合生成PRPP[32]。然而,prs基因表达受PurR蛋白转录抑制,限制了PRPP合成。为解决这一限制,本研究首先敲除大肠杆菌ZL1-2中的purR基因,获得菌株ZL2。随后,将P_trc启动子控制的prs基因整合到yghx位点,构建菌株ZL3。摇瓶发酵结果(图2B)显示,与ZL1-2相比,ZL2的L-组氨酸滴度增加25.7%至0.44 g/L,但OD₆₀₀下降38.8%。ZL3的L-组氨酸滴度进一步增加至0.57 g/L。细胞生长受损可能是由于PRPP合成增强导致R5P和ATP过度消耗,引起代谢资源分配失衡。为确保充足的R5P供给并缓解其合成途径的碳通量瓶颈,我们在ZL3中依次过表达zwf和gnd基因,生成菌株ZL4和ZL5。结果(图2B)表明,ZL4的L-组氨酸滴度(0.63 g/L)和生物量分别比ZL3高10.5%和19.2%。ZL5的L-组氨酸滴度进一步增加(0.71 g/L),生物量分别增加12.7%和22.1%。这表明强化PPP通过提升PRPP供给协同改善了L-组氨酸生产和细胞生长。
【数据】ZL2滴度:0.44 g/L(增加25.7%);ZL2 OD₆₀₀下降:38.8%;ZL3滴度:0.57 g/L;ZL4滴度:0.63 g/L(比ZL3高10.5%);ZL4生物量增加:19.2%;ZL5滴度:0.71 g/L(增加12.7%);ZL5生物量增加:22.1%
#### 3.2.3 下游途径增强
在前体供给优化后,我们假设下游途径转化效率不足将成为限制因素。因此,为解决这一问题,将来自粘质沙雷氏菌CGMCC No.19116的七个his操纵子基因(hisDsmar、hisBsmar、hisCsmar、hisAsmar、hisF/Hsmar和hisIEsmar),每个由P_trc控制,依次整合到大肠杆菌ZL5的指定位点,生成菌株ZL6–ZL11。如图2C所示,表达全部七个操纵子基因的菌株ZL11产生3.22 g/L L-组氨酸,相比ZL5滴度增加4.53倍,生物量增加10.8%,证实了下游途径增强的益处。值得注意的是,分阶段整合揭示了不同的贡献:ZL8、ZL9和ZL10的滴度依次达到0.92、1.48和3.15 g/L,生物量变化不大,表明hisC、hisA和hisF/H表达的累积效益。hisCsmar、hisAsmar和hisF/Hsmar的整合共同贡献了总滴度增加的82.7%。
【数据】ZL11产量:3.22 g/L;相比ZL5增加:4.53倍;生物量增加:10.8%;ZL8滴度:0.92 g/L;ZL9滴度:1.48 g/L;ZL10滴度:3.15 g/L;hisC+hisA+hisF/H*贡献:总滴度增加的82.7%
3.3 转氢酶系统改造与NADH/NADPH氧化还原平衡调控验证
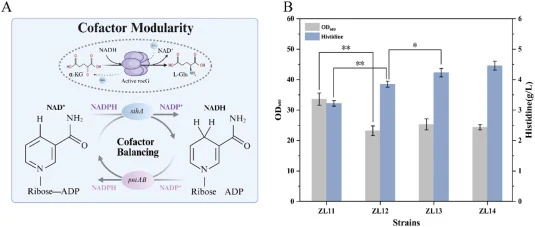
L-组氨酸生物合成需要消耗大量NADH/NADPH。为维持胞内氧化还原平衡,本研究对转氢酶系统进行了工程化改造,建立胞内NADH/NADPH氧化还原循环(图3A)。通过平衡谷氨酸再生与氧化还原通量,评估了其对组氨酸生产和细胞生长的影响(图3B)。
【数据】原文未详述具体数值
3.4 基于计算平台的L-组氨酸外排转运蛋白鉴定
为缓解胞内产物积累对细胞的毒性并促进产物外排,本研究利用基于机器学习的TransDW平台预测L-组氨酸外排转运蛋白(图4A)。构建了分别携带不同转运蛋白的菌株ZL15-1、ZL15-2、ZL15-3和ZL15-4,并评估其对L-组氨酸生产的影响(图4B)。其中,表达Cgl1374的菌株将L-组氨酸滴度提升至4.82 g/L。
【数据】Cgl1374表达菌株滴度:4.82 g/L;菌株编号:ZL15-1、ZL15-2、ZL15-3、ZL15-4
3.5 关键代谢节点碳通量重定向
为在关键代谢节点重新分配碳通量,使用生长阶段依赖型启动子替换天然pgi启动子,以在指数生长期维持高表达、在稳定期减弱表达,从而将碳通量重定向至PPP和组氨酸合成途径(图5A)。所用启动子包括rps等。通过动态调控pgi表达,在摇瓶中实现了5.49 g/L的L-组氨酸产量。
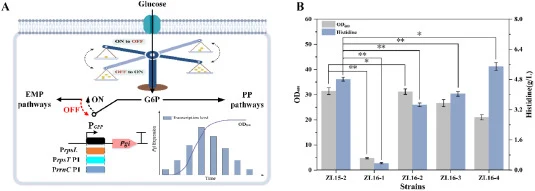
【数据】摇瓶产量:5.49 g/L;启动子类型:生长阶段依赖型(rps等)
3.6 5 L生物反应器中CER控制下的补料分批发酵
在5 L生物反应器中,对优化菌株ZL16-4进行CER控制下的补料分批发酵(图6)。使用CER动态指标监测发酵过程中的CER水平(图6A)。在不同CER设定点下监测OD₆₀₀时间曲线(图6B)和L-组氨酸滴度时间曲线(图6C)。最终,优化菌株在5 L生物反应器中实现了49.8 g/L的L-组氨酸产量,葡萄糖得率为0.265 g/g。
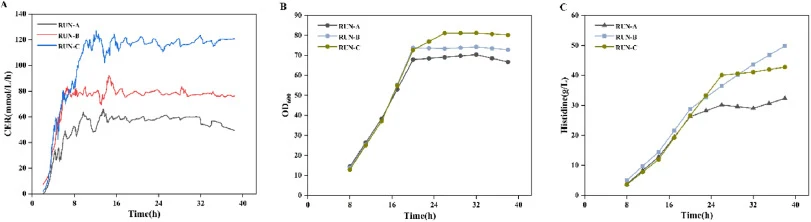
【数据】L-组氨酸产量:49.8 g/L;葡萄糖得率:0.265 g/g;生物反应器体积:5 L;菌株:ZL16-4
讨论与解读
本研究展示了一种整合策略,通过结合比较基因组学、代谢工程和工艺优化实现L-组氨酸的高效生产。关键突变从粘质沙雷氏菌引入大肠杆菌以解除反馈抑制,同时系统优化了前体供给、下游通量和氧化还原平衡。机器学习鉴定出转运蛋白Cgl1374增强产物外排,生长阶段响应型pgi调控改善了碳分配。CER引导的发酵策略最小化了溢流代谢,在5 L生物反应器中实现49.8 g/L L-组氨酸,葡萄糖得率0.265 g/g。该工作为构建微生物细胞工厂提供了实用的代谢工程策略和可规模化方法,为L-组氨酸的工业化生产铺平了道路。
编译者解读:该研究的方法论价值在于将非模式菌株的基因组资源挖掘与计算工具(TransDW)和实时生理反馈控制(CER)串联成完整闭环。从合成生物学视角看,hisG*smar和整套突变his操纵子的跨物种移植证明了非模式微生物作为基因元件供体的潜力。然而,研究依赖ARTP诱变获得起始突变株,突变谱的系统解析仍不完整;CER控制策略虽在5 L规模验证,向更大规模放大时其普适性有待检验。
参考来源
期刊:Synthetic and Systems Biotechnology, 2026
DOI: 10.1016/j.synbio.2026.04.038
DOI: 10.1016/j.synbio.2026.04.038