来源:Inducible flocculation in Komagataella phaffii enables enhanced biomass separation for biopharmaceutical production(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
库德里亚兹毕赤酵母(Komagataella phaffii)高密度发酵中,40%–50%的细胞密度使收获环节成为工艺瓶颈。本研究利用CRISPR/Cas9基因组编辑技术,将酿酒酵母絮凝基因ScFLO1整合至K. phaffii基因组,构建了甲醇诱导型和去阻遏型两种可诱导絮凝系统。絮凝细胞在低转速离心或自然重力沉降后上清浊度显著降低,且表达多价NANOBODY® VHH分子时产量与质量未受影响。这是K. phaffii中首个与重组蛋白生产兼容的基因工程絮凝系统。
研究背景
K. phaffii(曾称Pichia pastoris)是生物制药领域重要的真核表达系统。它能达到高细胞密度,并拥有甲醇诱导型AOX1启动子等强效可控启动子,以及近年开发的非甲醇表达系统,从而实现异源基因的高水平表达。作为甲基营养型酵母,它兼具原核与高等真核宿主的优势,尤其适合生产复杂重组蛋白。
K. phaffii在蛋白加工方面的卓越能力已通过多种菌株工程手段得到优化。糖基化领域进展显著,已实现人源化糖基化模式的改造;通过共表达辅助蛋白和激活分子伴侣,二硫键形成和蛋白折叠效率也得到大幅提升。这些优势使K. phaffii成为生物制药生产的理想平台。
然而,高细胞密度发酵带来的生物质分离问题尚未得到充分解决。典型的高密度培养中,细胞密度可达40%–50%,给收获操作带来显著的操作、技术和经济挑战。酵母细胞聚集(絮凝)通过增大颗粒尺寸加速细胞沉降,从而在自然重力沉降和(连续)离心操作中改善生物质-上清液分离效率。本研究旨在K. phaffii中工程化可诱导絮凝表型,并验证其与重组蛋白生产的兼容性。
研究方法
2.1 质粒构建
为构建质粒pBSY5Z_NANOBODY® VHH B,以pBSY5Z质粒(bisy GmbH, Graz)作为起始构建体,该质粒赋予对Zeocin抗生素的抗性。NANOBODY® VHH B编码序列由GeneArt(Thermo Fisher Scientific)合成,作为合成DNA构建体位于酿酒酵母α交配因子(aMF)信号肽序列下游并与其同框,并克隆至pMA-RQ质粒骨架中。两个质粒均按制造商说明用SapI(NEB)酶切,以去除填充序列(pBSY5Z)或释放编码aMF-NANOBODY® VHH B融合蛋白的DNA片段。pBSY5Z质粒骨架(3068 bp)和aMF-NANOBODY® VHH B编码DNA片段(2148 bp)经凝胶回收纯化(QIAquick凝胶回收试剂盒,Qiagen),并通过连接反应组装(Quick连接试剂盒,NEB)。
质粒pBB3Zi_086、pBB3Hi_095、pBB3Hi_095和pBB3Zi_098通过Golden Gate组装方法生成。pBB1基础Golden Gate模块(pBB1_PDF_12、pBB1_PDC_12、pBB1_MIT1_23、pBB1_MXR1_23、pBB1_ScRPL3TT_34)由GeneArt(Thermo Fisher Scientific)合成。介导Zeocin(Zi)和潮霉素(Hi)抗性的入口载体骨架(pBB3)从pBSYBiE1(Zi)和pBSYBiE1H(Hi)(bisy GmbH)克隆而来。这些载体经SmiI/BamHI酶切后,通过Gibson组装(NEBuilder, NEB)插入受体盒(由GeneArt合成),生成pBB3Zi_14和pBB3Hi_14。作为PCR生成供体DNA模板的质粒pBB1_mNG_23和pBB1_PGAP_12购自GeneArt(Thermo Fisher Scientific)。CRISPR/Cas9质粒的克隆在下方单独章节描述。所有用于克隆和供体DNA生成的寡核苷酸列于表S1。本研究中使用的和生成的所有质粒列于表S2。
【数据】质粒骨架:pBSY5Z(3068 bp);插入片段:aMF-NANOBODY® VHH B(2148 bp);限制酶:SapI、SmiI/BamHI;组装方法:连接反应、Golden Gate组装、Gibson组装;抗生素:Zeocin、潮霉素
2.2 酵母菌株与菌株构建
本研究中所有酵母菌株均为NRRL Y-11430或NRRL Y-11430 + HAC1的衍生株,后者是在去阻遏型CTA1/CAT1启动子控制下过表达内源性Hac1蛋白的K. phaffii NRRL Y-11430菌株。制备电感受态K. phaffii细胞时,将100 mL摇瓶中的20 mL YPD培养基用相应菌株接种,于28 °C、180 rpm过夜培养。从此预培养物中,将300 mL摇瓶中的50 mL YPD培养基接种至OD600约0.2。主培养于28 °C培养4.25 h,直至OD600达到约0.8。细胞通过离心收集(500 × g,5 min,4 °C)。弃去上清,将细胞重悬于9 mL冰预冷BEDS溶液(1 M山梨醇,10 mM bicine,3%乙二醇,5% DMSO)中,并加入1 mL 1 M DTT。该悬浮液在室温孵育5 min。随后制备800 μL等分试样,于−80 °C冻存至用于转化。
电穿孔时,将一份感受态细胞等分试样在冰上解冻。酵母细胞通过离心沉淀(500 × g,5 min,4 °C)。用移液器吸去上清并弃去。细胞重悬于80 μL冰预冷BEDS溶液中,将细胞悬浮液转移至电穿孔比色皿中,与脱盐DNA混合。细胞-DNA混合物在冰上孵育2–5 min。电穿孔参数为2 kV、25 μF、200 Ω。电脉冲后立即加入1 M山梨醇与YPD培养基的1:1混合物。细胞在50 mL锥形管中于28 °C、120 rpm振荡孵育2 h以恢复。将培养物等分试样涂布于补充潮霉素(200 μg/mL)的YPD琼脂平板进行筛选,于28 °C培养3天。本研究中使用的和生成的所有酵母菌株列于表S3。
【数据】菌株:NRRL Y-11430、NRRL Y-11430 + HAC1;培养基:YPD;温度:28 °C;转速:180 rpm(预培养)、120 rpm(恢复);OD600:0.2(接种)、0.8(收集);离心:500 × g,5 min,4 °C;电穿孔参数:2 kV,25 μF,200 Ω;潮霉素浓度:200 μg/mL;培养时间:3天
2.3 CRISPR-Cas9辅助的K. phaffii基因组操作
基因组工程基于先前发表的CRISPR/Cas9质粒R_C2_gRNAgut1_kan的修改版本,其中抗GUT1 sgRNA被替换为SapI位点侧翼的大肠杆菌ccdB反向选择标记。该设计允许基于寡核苷酸的sgRNA靶序列克隆(图S1A)。此外,抗生素抗性改为hygR。编码SapI侧翼ccdB填充序列的序列通过PCR扩增(Q5, NEB),使用引物O56和O57。R_C2_gRNAgut1_kan骨架通过PCR扩增为两个片段,使用引物对O52/O53和O54/O55。三个PCR产物通过Gibson组装(NEBuilder, NEB)组装,得到pCas9Gc_ccdB。为交换pCas9Gc_ccdB中的选择标记,质粒骨架通过PCR扩增(Q5, NEB)为两个片段,使用引物对O53/O58和O55/O59。编码潮霉素抗性标记的序列购自GeneArt(Thermo Fisher)。填充序列通过PCR扩增(Q5, NEB),使用引物O60和O61。三个PCR产物按制造商说明通过Gibson组装(NEBuilder, NEB)。所得质粒命名为pCas9Hc_ccdB。
为将sgRNA靶序列引入pCas9Hc_ccdB,将编码靶序列的正向和反向寡核苷酸(各10 pmol)及相应突出端在50 μL退火缓冲液(50 mM NaCl,10 mM Tris,1 mM EDTA)中杂交,在热循环仪中加热至95 °C 5 min,然后以0.1 °C/s冷却至4 °C。将1 μL双链寡核苷酸溶液用T4 DNA Quick连接酶(NEB)连接至50 ng SapI酶切的pCas9Hc_ccdB中。以下寡核苷酸(见表S1)分别退火以靶向指定位点:O39/O40(AOX1)、O41/O42(P AOX1)、O43/O44(int6位点)、O45/O46(int18位点)、O47/O48(PNSII-4位点)、O49/O50(PNSI-2位点)。用于位点特异性基因组整合的供体DNA通过PCR从模板DNA生成,引物突出端添加80 bp同源序列至PCR产物以进行同源定向整合。表S4列出了引物和模板DNA。PCR产物通过硅胶柱纯化脱盐(QIAquick, QIAGEN)。
为引入基因组修饰,将电感受态K. phaffii菌株通过电穿孔转化供体DNA(>1 μg)和300 ng靶向相应位点的pCas9Hc质粒。表S5列出了用于菌株工程的起始菌株和CRISPR系统组件。基因组整合和缺失通过菌落PCR验证,使用扩增重组事件边界的引物(表S5)。菌落材料重悬于20 μL水中,在热循环仪中加热至95 °C 10 min。取2 μL悬浮液作为模板。在成功基因组修饰的情况下,延伸时间根据预期扩增子长度调整。从阳性克隆中提取基因组DNA(Puregene细胞试剂盒,QIAGEN),用作PCR模板,使用扩增跨越所有重组位点的全长整合DNA元件的引物(表S5)。PCR产物纯化后(QIAquick, QIAGEN),进行Oxford Nanopore测序验证(PlasmidEZ, Azenta)。
【数据】质粒:pCas9Gc_ccdB、pCas9Hc_ccdB;sgRNA靶位点:AOX1、P AOX1、int6、int18、PNSII-4、PNSI-2;寡核苷酸用量:10 pmol;退火条件:95 °C 5 min,0.1 °C/s冷却至4 °C;连接用量:50 ng SapI酶切质粒;供体DNA用量:>1 μg;Cas9质粒用量:300 ng;菌落PCR裂解:95 °C 10 min;测序方法:Oxford Nanopore
2.4 24孔深孔板培养
对于小规模表达测试,菌株在24孔深孔板(Riplate, Ritter Plastic)中培养,含2 mL复合培养基(10 g/L酵母提取物,10 g/L蛋白胨,1%(w/v)甘油),于28 °C培养72 h(80%湿度,280 rpm,Kuhner摇床)。对于含甲醇诱导型启动子的构建体,在72 h后通过添加1%(v/v,终浓度)MeOH诱导絮凝或mNeonGreen(mNG)表达。荧光测量和Bradford assay样品在72 h(第3天)和96 h(第4天)收集。用于视觉絮凝体大小比较的样品在75 h、78 h或96 h收集。
【数据】培养板:24孔深孔板;培养基:10 g/L酵母提取物,10 g/L蛋白胨,1%(w/v)甘油;温度:28 °C;时间:72 h;湿度:80%;转速:280 rpm;诱导剂:1%(v/v)MeOH;取样时间点:72 h、75 h、78 h、96 h
2.5 通用补料分批发酵条件
高细胞密度补料分批发酵在0.25 L规模进行(Ambr250生物反应器)……
【数据】发酵规模:0.25 L;生物反应器:Ambr250;原文未详述后续具体参数
研究结果
3.1 在K. phaffii中建立ScFlo1介导的絮凝表型
我们首先旨在在K. phaffii NRRL Y-11430衍生菌株中重现先前在K. phaffii KM71菌株中描述的ScFlo1介导的絮凝表型。为此,我们计划将单个ScFLO1表达盒位点特异性地整合至基因组中,以控制转基因的拷贝数和整合位点。靶向位点特异性整合被认为是可重复表征絮凝表型的关键基础。由于ScFLO1基因尺寸大(4614 bp)且序列高度重复,我们预计其难以通过经典克隆方法操作。为避免中间克隆步骤,我们使用CRISPR辅助的靶向整合将PCR扩增的ScFLO1基因整合至K. phaffii天然AOX1位点。该策略将ScFLO1置于内源性醇氧化酶1基因的甲醇诱导型启动子(P AOX1)控制下。在第二个编辑步骤中,我们将P AOX1替换为PGAP(图1B),以实现组成型ScFLO1表达。基因组操作使用已发表的K. phaffii CRISPR/Cas9系统版本,我们对其进行了修改以兼容快速sgRNA克隆方法(图S1A)。此外,我们建立了具有80 bp同源臂的线性双链DNA供体高效整合方案(图1B)。
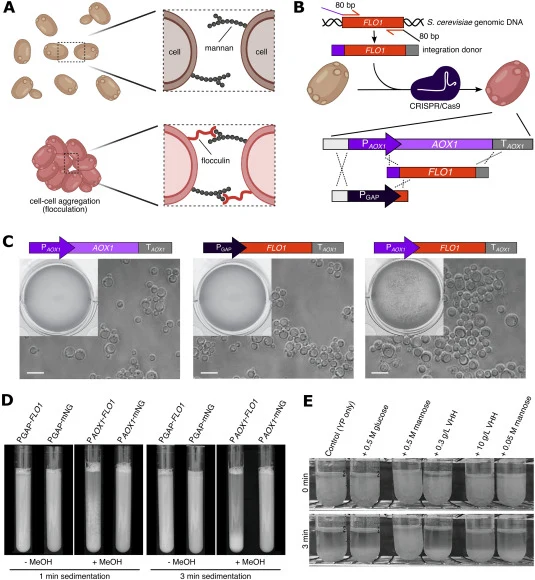
在NRRL Y-11430衍生菌株(yEIA018)中从PGAP表达ScFLO1导致在复合YPD培养基中发生细胞聚集(图S1B),与未工程化菌株相比,在摇瓶和培养管中细胞沉降略快。然而,我们观察到两个使用不同供应商蛋白胨制备的YPD批次之间絮凝强度存在显著差异,其中培养基2完全不支持絮凝。该培养基2中检测不到Ca²⁺离子(低于检测限)(图S1C),缺乏重要的ScFlo1激活辅因子。添加CaCl₂(约10 mM或1.1 g/L终浓度)确实强烈增强了该培养基中的絮凝,突显了Ca²⁺离子对高效絮凝的重要性以及仔细选择支持絮凝的生长培养基的必要性。
受这些结果鼓舞,我们试图通过增加ScFLO1表达水平进一步增强絮凝。因此,我们测试了ScFLO1处于AOX1启动子(P AOX1)控制下的菌株(yEIA010)的絮凝。在相应激活条件下,P AOX1的转录活性比PGAP高1.5至2倍。在初始碳源(葡萄糖)耗尽后通过添加MeOH诱导ScFLO1表达。与PGAP-ScFLO1菌株相比,絮凝体尺寸显著增大,肉眼即可宏观可见。摇瓶和培养管中的沉降也显著增加(图S1B)。
【数据】菌株:yEIA018(PGAP-ScFLO1)、yEIA010(P AOX1-ScFLO1);ScFLO1基因大小:4614 bp;同源臂长度:80 bp;CaCl₂浓度:约10 mM或1.1 g/L;P AOX1转录活性:比PGAP高1.5–2倍;诱导剂:MeOH;培养基:YPD
3.2 测试絮凝与重组蛋白生产的兼容性
K. phaffii中的蛋白质糖基化因免疫原性调节和药代动力学问题给生物制药生产带来挑战。虽然N-糖基化容易通过蛋白质工程消除,但O-糖基化通常表现为短线性甘露糖链,其频率可变且以产物依赖的不可预测方式出现。由于絮凝素结合酵母细胞壁中的甘露糖链以介导细胞-细胞粘附,我们研究了上清液中高浓度O-糖基化重组蛋白是否能竞争性抑制絮凝。我们通过将絮凝细胞(P AOX1-ScFLO1,yEIA004,用1% MeOH诱导)重悬于含游离d-甘露糖和d-葡萄糖或代表性O-糖基化五价NANOBODY® VHH分子的培养基中进行絮凝抑制试验。NANOBODY® VHH A的O-糖基化程度通过质谱测定为19%至20%(单O-己糖基化(1x):11%,2x:2.5%,3x:0.7%,4x:0.3%)。阳性对照处理(0.5 M d-甘露糖)定量抑制了絮凝,而添加等浓度d-葡萄糖(阴性对照)无效果。这些结果与先前ScFlo1竞争性结合抑制的表征一致。值得注意的是,在10 g/L糖基化NANOBODY® VHH A(对应约0.028 mM游离甘露糖当量)存在下未观察到絮凝抑制(图1E)。
为在更接近生物制药生产的条件下测试絮凝系统,我们将NANOBODY® VHH B表达盒基因组整合至已装备ScFLO1表达盒的菌株中。NANOBODY® VHH B表达盒由PDF启动子和编码酿酒酵母全长α交配因子分泌前导序列与NANOBODY® VHH B编码序列同框融合的序列组成。去阻遏型PDF启动子是汉逊酵母甲酸脱氢酶启动子的623 bp片段,在K. phaffii中碳源限制条件下介导高水平表达。它还可被甲醇激活,允许与来自PGAP(yIEA038)或P AOX1(pEIA024)的ScFLO1表达完全兼容。使用CRISPR/Cas9系统将两个表达盒分别整合至每个菌株的2号染色体(ChrII:17928–17947 = int6)和4号染色体(ChrIV:733170–733189 = int18)位点。与上述结果一致,这些菌株中P AOX1驱动ScFLO1表达的细胞-细胞聚集程度显著强于PGAP(图1C)。一致地,P AOX1-ScFLO1细胞表现出增强的沉降速率:将细胞悬浮液转移至培养管后3 min,这些细胞即实现与上清液的近乎完全分离(图1D)。将ScFLO1替换为荧光报告基因mNeonGreen(mNG)的非絮凝参考菌株(P AOX1: yEIA025)在相同时间段内未观察到明显沉降。从PGAP表达ScFLO1的细胞沉降速度未显著快于相应的mNG表达参考细胞(PGAP: yIEA039)(图1D)。在96孔深孔板中对这些菌株进行表达试验,结果表明mNG参考菌株和絮凝菌株产生相似水平的NANOBODY® VHH B(图S2A、B和图S3)。因此,絮凝对菌株生产力没有任何负面影响。
【数据】菌株:yEIA004(P AOX1-ScFLO1)、yIEA038(PGAP-ScFLO1 + PDF-NANOBODY® VHH B)、pEIA024(P AOX1-ScFLO1 + PDF-NANOBODY® VHH B)、yEIA025(P AOX1-mNG)、yIEA039(PGAP-mNG);NANOBODY® VHH A O-糖基化:19%–20%(1x: 11%,2x: 2.5%,3x: 0.7%,4x: 0.3%);d-甘露糖浓度:0.5 M;NANOBODY® VHH A浓度:10 g/L(约0.028 mM游离甘露糖当量);PDF启动子大小:623 bp;整合位点:ChrII:17928–17947(int6)、ChrIV:733170–733189(int18);沉降时间:3 min
3.3 利用遗传放大器增强诱导型絮凝表型
与我们目前观察到的絮凝相比,先前在其他酵母物种中的研究显示ScFLO1过表达可产生显著更强的絮凝。这促使我们研究是否可通过进一步增加ScFLO1表达来增强P AOX1-ScFLO1菌株的絮凝。为此,我们将额外的遗传放大器模块基因组整合至基因组中,包含MIT1(ScFLO1: yEIA042,mNG: yEIA044)或MXR1(ScFLO1: yEIA043,mNG: yEIA045),两者均处于P AOX1调控下。两种设计均创建了合成正反馈回路(图2A),因为转录激活因子Mit1和Mxr1上调P AOX1启动子,而该启动子驱动其自身表达,同时激活P AOX1驱动的ScFLO1表达。此类遗传放大器已被证明可在MeOH诱导后显著增强重组蛋白表达水平。为评估遗传放大器构建体对P AOX1介导表达的影响,我们构建了mNG表达由AOX1启动子驱动的报告菌株。确实,MeOH诱导的过表达……
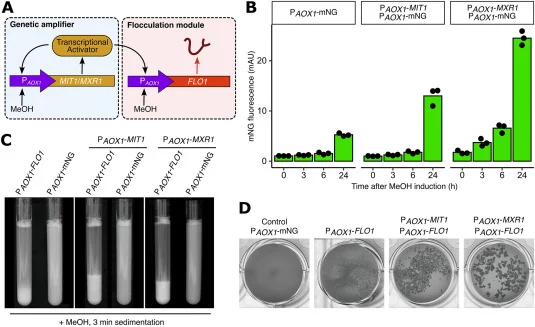
【数据】菌株:yEIA042(ScFLO1 + MIT1)、yEIA044(mNG + MIT1)、yEIA043(ScFLO1 + MXR1)、yEIA045(mNG + MXR1);放大器基因:MIT1、MXR1;调控元件:P AOX1;诱导剂:MeOH;原文未详述过表达具体数值
3.4 开发非甲醇依赖的诱导型絮凝系统
为满足无甲醇生产需求,我们开发了替代系统以改造P AOX1为基础的ScFLO1表达,并利用去阻遏型PDF启动子,提供与生物制药生产设施更广泛的兼容性……
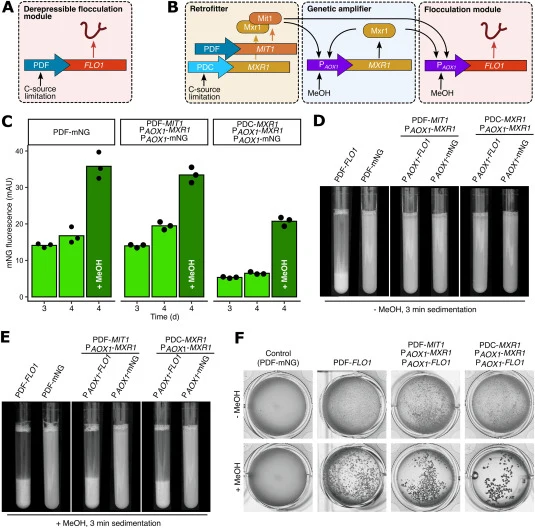
【数据】启动子:PDF(去阻遏型);原文未详述具体改造参数
3.5 絮凝菌株中NANOBODY® VHH B的生产
在Ambr250生物反应器培养中评估指定菌株的生长,通过氧摄取速率(OUR)测量。空菌株参考仅表达NANOBODY® VHH B,不含ScFLO1表达盒。各菌株培养……
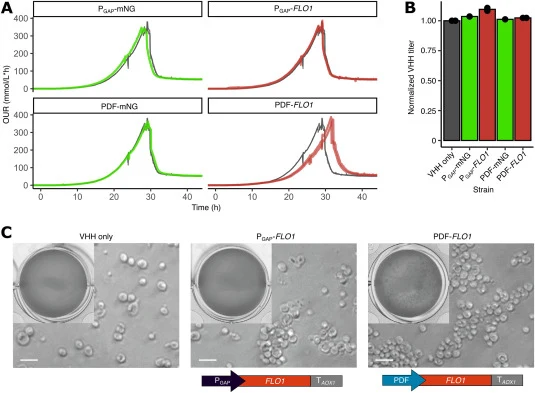
【数据】生物反应器:Ambr250;测量指标:氧摄取速率(OUR);表达产物:NANOBODY® VHH B;原文未详述具体OUR数值
3.6 沉降速度和效率分析
来自摇瓶或Ambr250生物反应器培养的细胞悬浮液转移至15 mL管(沉降)或50 mL锥形管(离心),在自然重力下沉降……
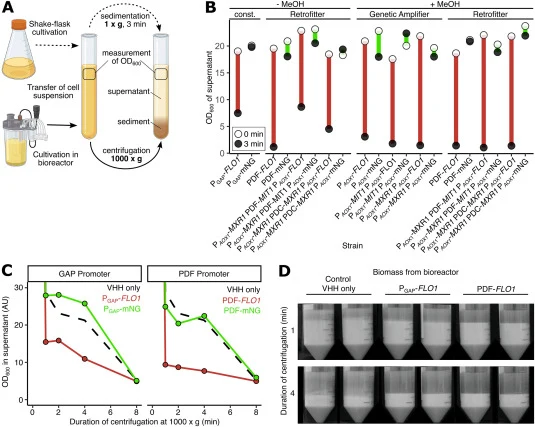
【数据】沉降管:15 mL;离心管:50 mL;原文未详述具体沉降速度和效率数值
讨论与解读
大多数改进重组表达宿主的研究聚焦于提高产量或产品质量。然而在工业环境中,高蛋白产量只是高效制造工艺的部分前提。K. phaffii能实现高蛋白生产力,将效率瓶颈转移至工艺稳健性和下游收率。特别是,从含产物的上清液中分离大量高密度生物质至今未得到充分解决。本研究工程化了K. phaffii菌株使其在诱导后絮凝,首次展示了基因工程细胞聚集与重组蛋白表达的结合,以促进产物与生物质的分离。我们利用受控生物反应器培养中产生的生物质成功证明了该方法的一般可行性,表明在自然重力和离心条件下均可实现增强的生物质分离,而不影响生产力或产品质量。这是通过表达一种复杂的药学相关蛋白验证的,确认了该技术对工业生物制药制造的适用性。虽然絮凝在酿造工业和废水处理中已成熟应用,但其整合至生物制药制造面临更严格的监管壁垒和苛刻的质量要求。化学絮凝剂……
编译者解读:本研究在K. phaffii中首次实现了可诱导絮凝与重组蛋白生产的兼容,方法设计巧妙——利用CRISPR/Cas9定点整合规避了ScFLO1大片段高重复序列的克隆难题,遗传放大器策略则展示了合成生物学回路在工业宿主改造中的实用价值。不过,甲醇诱导型系统在生物制药中的监管接受度有限,PDF去阻遏系统的实际诱导倍数和工业化放大后的絮凝均一性仍需验证。絮凝对下游层析步骤的潜在影响(如絮凝体堵塞层析柱)也值得进一步评估。
参考来源
期刊:Metabolic Engineering, 2026
DOI: 10.1016/j.ymben.2026.102523
DOI: 10.1016/j.ymben.2026.102523