来源:Genome Sequencing, Functional Annotation, and Fermentation Optimization of the Highly Efficient Feather-Degrading Strain Bacillus paralicheniformis DHSYa(Process Biochemistry)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
全球家禽业每年产生约800–900万吨羽毛废弃物,其角蛋白结构因大量二硫键而极难自然降解。本研究对一株从羽毛堆积场分离的高效降解菌DHSY进行了形态学与16S rRNA鉴定,确认为副地衣芽孢杆菌(Bacillus paralicheniformis),并完成全基因组测序与功能注释。基因组为4,448,127 bp的单一环状染色体,GC含量45.95%,注释到19个潜在角蛋白酶基因。经发酵优化后,72 h可溶性蛋白达8.09 mg/mL,96 h羽毛降解率达98.75%。
研究背景
全球家禽养殖规模快速扩张,羽毛废弃物随之大量产生,年产量估计达800–900万吨。羽毛是脊椎动物中结构最复杂的组织之一,主要成分为角蛋白,另含少量脂质、灰分和水分。角蛋白致密稳定的结构主要由大量二硫键、氢键和疏水相互作用维持,使羽毛在自然条件下难以降解。若管理不当,大量富含角蛋白的羽毛废弃物易腐败并引发二次微生物污染,造成环境问题。与此同时,羽毛角蛋白含量高、氨基酸和蛋白质丰富,具有可观的增值利用潜力——经适当加工后可广泛用于肥料、动物饲料、农业生产及日化工业。传统处理方法包括焚烧、填埋、堆肥以及酸碱水解、高温高压处理、溶剂萃取等理化工艺,但往往伴随资源浪费、必需氨基酸破坏和环境污染等问题。由于角蛋白结构高度稳定,开发温和高效的生物降解途径成为研究热点。
研究方法
2.1 菌株与培养基
#### 2.1.1 菌株
本研究所用菌株DHSY为本实验室此前从羽毛堆积场分离筛选获得的羽毛降解细菌,全程使用该菌株。纯培养物保存于添加20%甘油的LB肉汤中,于−80°C冻存。
【数据】菌株:DHSY;甘油浓度:20%;保存温度:−80°C;培养基:LB肉汤
#### 2.1.2 培养基
LB肉汤用于细菌活化与种子培养制备。用于发酵优化的基础培养基(100 mL)由2 g完整羽毛、0.4 g氯化钠、0.4 g磷酸氢二钠和0.03 g磷酸二氢钾组成,pH调至7.5。用于初步培养或筛选的固体培养基则以羽毛粉替代完整羽毛。优化实验中,向基础培养基分别补充不同碳源、氮源或金属离子。
【数据】基础培养基体积:100 mL;羽毛:2 g;氯化钠:0.4 g;磷酸氢二钠:0.4 g;磷酸二氢钾:0.03 g;pH:7.5
#### 2.1.3 微生物培养
将菌株DHSY划线接种于LB琼脂平板,45°C培养复苏。挑取单菌落接种至5 mL LB肉汤,45°C、200 r/min振荡培养,获得一级种子液。随后将1%(v/v)一级种子液转接至新鲜LB肉汤,相同条件下培养至指数期,所得培养物作为后续实验的种子液。
【数据】复苏温度:45°C;种子液体积:5 mL;转速:200 r/min;接种量:1%(v/v);培养基:LB肉汤
2.2 菌株DHSY的分类学鉴定
将菌株DHSY单菌落接种至5 mL LB肉汤,45°C、200 r/min振荡培养至对数生长期。离心收集菌体,使用细菌基因组DNA提取试剂盒(生工生物,上海,中国)提取基因组DNA。用NanoDrop 2000C分光光度计和琼脂糖凝胶电泳评估DNA浓度与质量。以提取的基因组DNA为模板,使用引物BSF8/20(5'-AGAGTTTGATCCTGGCTCAG-3')和BSR1541/20(5'-AAGGAGGTGATCCAGCCGCA-3')扩增菌株DHSY的16S rRNA基因。50 μL PCR反应体系含25.0 μL 2× Rapid Taq Master Mix、正向和反向引物各2.0 μL(10 μM)、1.0 μL模板DNA和20.0 μL无菌水。PCR程序为:95°C初始变性3 min;随后40个循环,每个循环95°C变性15 s、58°C退火15 s、72°C延伸25 s;最后72°C终延伸5 min。PCR产物经琼脂糖凝胶电泳验证后,送至生工生物(上海,中国)测序。所得16S rRNA基因序列提交至NCBI GenBank数据库,登录号为PZ245185。基于所得16S rRNA基因序列,从NCBI数据库检索23株参考菌株序列。使用MUSCLE算法进行序列比对,分析序列相似性百分比。采用邻接法构建系统发育树,并用MEGA11软件分析。此外,使用OrthoANIu算法计算菌株DHSY与11株具有完整基因组序列菌株之间的平均核苷酸一致性(ANI)。
【数据】菌株:DHSY;培养基:LB肉汤;温度:45°C;转速:200 r/min;PCR体系:50 μL;引物浓度:10 μM;模板DNA:1.0 μL;变性温度:95°C;退火温度:58°C;延伸温度:72°C;循环数:40;GenBank登录号:PZ245185;参考菌株数:23;ANI菌株数:11
2.3 全基因组测序、组装与注释
为获得用于全基因组测序的菌体,将1%(v/v)接种物转接至5 mL LB肉汤,培养至对数生长期。随后离心10 min,弃上清,收集菌体。用无菌水洗涤菌体以去除残留培养基成分,液氮冷冻后于−80°C保存。菌株DHSY的基因组由美吉生物医药科技有限公司(中国)使用PacBio和Illumina测序平台完成测序。生物信息学分析基于PacBio Sequel IIe和Illumina平台产生的数据进行,所有分析均在上海美吉云平台(http://cloud.majorbio.com)上完成。Illumina平台产生的原始数据以FASTQ格式存储。使用fastp v0.23.0进行质控,去除低质量序列、含有高比例模糊碱基(N)的reads以及修剪后过短的reads,获得高质量clean data。PacBio Sequel IIe平台产生的原始数据为HiFi reads。基于HiFi reads使用Flye v2.9.2进行基因组组装。随后,将质控后的Illumina短reads比对到组装基因组,并使用Pilon v1.22进行校正。使用Prodigal v2.6.3预测编码序列(CDSs),使用tRNAscan-SE v2.0鉴定tRNA基因,使用Barrnap v0.9(https://github.com/tseemann/barrnap)预测rRNA基因。使用序列比对工具(包括BLASTP、Diamond和HMMER)将预测的CDSs与NR、Swiss-Prot、Pfam、GO、COG、KEGG和CAZy数据库进行功能注释。从注释的CDSs中,结合肽酶相关结构域分配与信号肽(SignalP v6.0;https://services.healthtech.dtu.dk/services/SignalP-6.0/)和跨膜螺旋(TMHMM v2.0;https://services.healthtech.dtu.dk/services/TMHMM-2.0/)预测筛选候选角蛋白酶。使用ProtParam(https://web.expasy.org/protparam/)计算候选蛋白的分子量和等电点(pI),最终使用MEROPS肽酶数据库(http://www.ebi.ac.uk/merops/)对鉴定到的蛋白酶进行分类。
【数据】接种量:1%(v/v);培养基:LB肉汤;体积:5 mL;离心时间:10 min;保存温度:−80°C;测序平台:PacBio Sequel IIe、Illumina;组装软件:Flye v2.9.2;校正软件:Pilon v1.22;CDS预测:Prodigal v2.6.3;tRNA鉴定:tRNAscan-SE v2.0;rRNA预测:Barrnap v0.9;注释数据库:NR、Swiss-Prot、Pfam、GO、COG、KEGG、CAZy
2.4 菌株DHSY生长特性的测定
为探究菌株DHSY的生长特性,测定了最适生长温度和初始pH。最适生长温度:将种子液接种至LB肉汤,在不同温度(25°C、30°C、40°C、45°C、49°C、51°C、53°C、57°C和61°C)下以200 rpm振荡培养12 h,测定OD600值。最适初始pH:将LB肉汤初始pH调至6.0、6.5、7.0、7.5和8.0。灭菌接种后,于51°C、200 rpm振荡培养12 h,测定OD600值。
【数据】温度梯度:25°C、30°C、40°C、45°C、49°C、51°C、53°C、57°C、61°C;pH梯度:6.0、6.5、7.0、7.5、8.0;转速:200 rpm;时间:12 h;检测指标:OD600
2.5 发酵条件优化
#### 2.5.1 种子培养制备
从LB琼脂平板挑取单菌落接种至LB肉汤,在最适生长温度(51°C)下以200 rpm振荡过夜培养。所得培养物用作种子液。
【数据】温度:51°C;转速:200 rpm;培养基:LB肉汤;培养方式:过夜
#### 2.5.2 单因素实验优化发酵条件
为探究不同因素对产酶的影响,将种子液以1%(v/v)接种至含灭菌完整羽毛的羽毛培养基中,于51°C、200 rpm振荡培养48 h。以基础培养基(羽毛作为唯一碳氮源)为对照组(Control),作为所有优化实验的对照。碳源优化时,向基础培养基分别补充不同碳源;具体分组与缩写见表1。类似地,通过向基础培养基分别补充不同氮源或金属离子,建立氮源和金属离子优化的独立实验组。各处理缩写定义如下:氮源处理中,Casein为Cas,NH4Cl为Ach,(NH4)2HPO4为Adp,(NH4)2SO4为Asu,(NH4)2C2O4为Aox,Peptone为Pep,Beef extract为Bee。金属离子处理中,Mag为Mg2+,Cal为Ca2+,Zin为Zn2+,Pot为K+,Fer为Fe3+,Sod为Na+,Sta为Sn2+。发酵过程中定期取样,测定发酵液OD600以监测细菌生长。考察不同碳源(2%,w/v)、氮源(0.2%,w/v)和金属离子(5 mM)对菌株DHSY产酶和羽毛降解的影响,以角蛋白酶活……
【数据】接种量:1%(v/v);温度:51°C;转速:200 rpm;时间:48 h;碳源浓度:2%(w/v);氮源浓度:0.2%(w/v);金属离子浓度:5 mM;对照组:基础培养基
研究结果
3.1 羽毛降解菌DHSY的分类及羽毛降解能力评估
本研究使用的羽毛降解菌DHSY为本实验室此前从羽毛堆积场分离鉴定获得。为确定其系统发育地位,分析了该菌株的16S rRNA基因序列(GenBank登录号PZ245185)。如图1A所示,基于16S rRNA基因序列采用邻接法(NJ)构建系统发育树。结果表明,菌株DHSY与B. paralicheniformis AJVR1亲缘关系最近。为进一步确认其系统发育位置,使用NCBI数据库中11株全测序菌株的全基因组序列进行平均核苷酸一致性(ANI)分析(表S1)。ANI结果与基于16S rRNA的系统发育分析一致。特别是,DHSY与B. paralicheniformis FA6之间的ANI值为99.97%,进一步确认该菌株属于B. paralicheniformis种,因此命名为B. paralicheniformis DHSY。
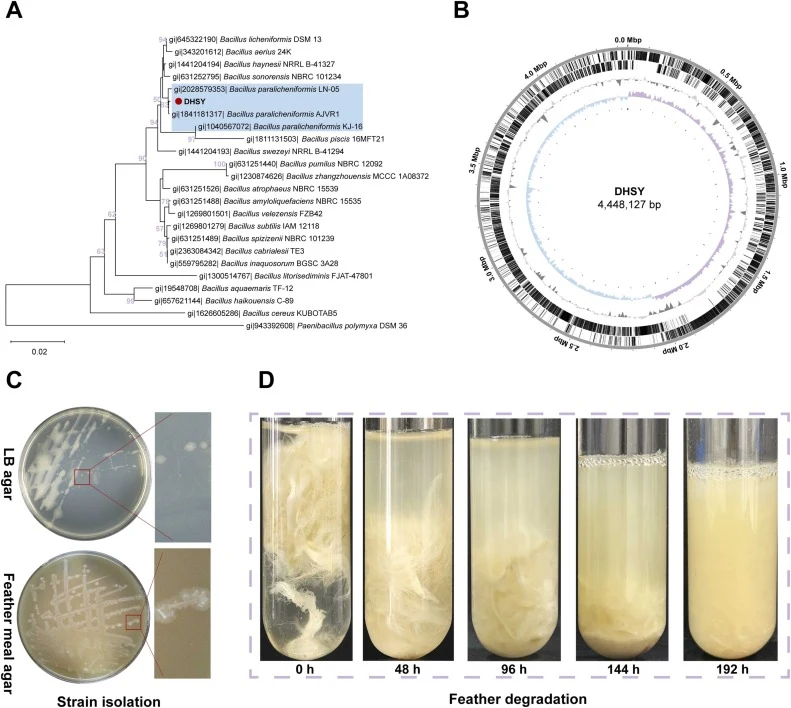
为评估菌株DHSY的羽毛降解能力,进行了进一步实验。如图1C所示,菌株DHSY在LB琼脂和羽毛粉琼脂培养基上均形成健壮菌落。羽毛粉琼脂上的菌落呈乳白色、湿润、有光泽,整体不透明。菌落表面粗糙,具有卷曲、不平整的结构和明显边缘,呈现局部不规则扩散。菌落周围出现清晰或疏松的透明圈,表明该菌株作用于羽毛粉底物,初步证明其羽毛降解能力。随后评估了对完整羽毛的降解情况(图1D)。孵育过程中,羽毛形态随时间发生显著变化,从完整的丝状结构逐渐变为疏松的絮状状态,伴随底物持续减少和培养液浊度逐渐增加。192 h后,羽毛基本失去原有形态,仅剩极少残留物,表明菌株DHSY在液体发酵条件下能高效降解羽毛。
菌株DHSY被鉴定为B. paralicheniformis。已有研究表明,B. paralicheniformis可促进植物生长、作为益生菌保护肠道屏障,并能产角蛋白酶和其他蛋白酶。然而,关于B. paralicheniformis降解羽毛能力的研究仍然有限。因此,本研究进行了全基因组分析和发酵条件优化,以全面评估菌株DHSY的羽毛降解潜力。
【数据】GenBank登录号:PZ245185;ANI菌株数:11;DHSY与FA6的ANI值:99.97%;降解时间:192 h;菌落特征:乳白色、湿润、有光泽
3.2 *B. paralicheniformis* DHSY的基因组分析
尽管此前研究已利用B. paralicheniformis进行羽毛废弃物的生物转化,但遗传背景差异导致不同菌株的羽毛降解能力不同。为丰富羽毛降解B. paralicheniformis菌株的基因组信息,并在遗传水平上为菌株特异性羽毛降解提供新见解,对菌株DHSY进行了全基因组测序和功能注释。全基因组测序显示,菌株DHSY的基因组由一条环状染色体组成,总长度为4,448,127 bp(图1B),共包含4375个蛋白编码基因(编码序列,CDSs)、106个sRNA、81个tRNA、24个rRNA、101个重复DNA序列、4个前噬菌体和2个CRISPR区域(表2)。
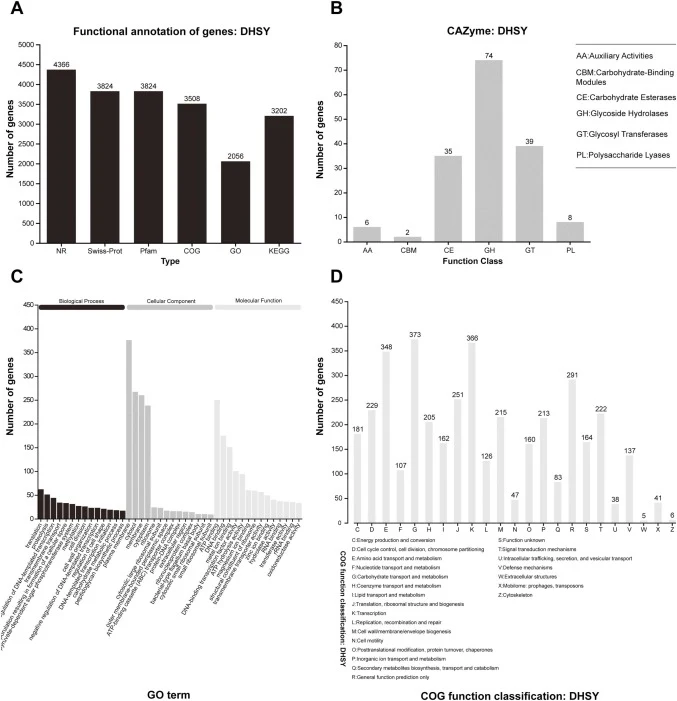
为进一步表征该基因组的功能潜力,使用多个生物信息学数据库对菌株DHSY的基因组进行注释。NR、Swiss-Prot、Pfam、COG和KEGG注释的功能基因分别占全部基因的99.79%、87.41%、80.18%、46.99%和73.19%(图2A)。基于CAZy数据库注释,在DHSY基因组中共鉴定到164个碳水化合物活性酶(CAZyme)基因(图2B和表S2)。这些包括分布于32个家族的74个糖苷水解酶(GHs)、39个糖基转移酶(GTs)、35个碳水化合物酯酶(CEs)、8个多糖裂合酶(PLs)、6个辅助活性酶(AAs)和2个碳水化合物结合模块(CBMs),共同表明该菌具有丰富的碳水化合物降解酶库。此外,其他B. paralicheniformis菌株中也有丰富的碳水化合物活性酶记录。
基因本体(GO)注释用于定义和描述基因及蛋白质的功能。如图2C所示,B. paralicheniformis DHSY中共有2056个基因获得GO注释,占全部基因的46.99%。其中,分子功能(Molecular Function)包含最多注释基因(1683个),其次是细胞组分(Cellular Component,1299个基因)和生物学过程(Biological Process,1227个基因)。在GO功能分类中,“ATP结合”、“质膜”和“翻译”分别是分子功能、细胞组分和生物学过程中最具代表性的条目。其中,生物学过程下的“蛋白水解”反映了该菌株的蛋白质水解能力,而“跨膜转运”提示其具有摄取和利用水解产物的潜力。此外,GO注释揭示DHSY基因组编码55个参与蛋白水解的基因(表S3),包括丝氨酸蛋白酶、金属蛋白酶和半胱氨酸蛋白酶等多个蛋白酶家族成员。其中,丝氨酸蛋白酶是参与羽毛角蛋白降解的关键酶。特别是,S8和S9丝氨酸蛋白酶家族成员已被报道在羽毛降解中发挥重要作用。
COG数据库基于同源性分类对预测蛋白质进行功能注释。B. paralicheniformis DHSY中共有3508个基因被分配到COG类别,占全部基因的80.18%,分布于23个功能类别(图2D)。其中,基因主要富集于三个功能类别:碳水化合物转运与代谢(373个)、转录(366个)和氨基酸转运与代谢(348个)。连同翻译和无机离子转运与代谢,这些多样化功能共同赋予菌株DHSY强大的代谢多功能性和环境适应性。其中,氨基酸代谢类别尤为富集,表明其具有强大的氮同化能力和代谢灵活性。这与其他羽毛降解微生物一致。Wu等发现羽毛降解菌株KD-1的基因组也编码多个与氨基酸代谢相关的途径。Zhou等通过转录组分析进一步证明,羽毛降解过程中大量参与氨基酸转运与代谢的基因显著上调。此外,大量基因被分配到功能未知的类别,提示需要进一步研究以确定这些基因是否参与羽毛降解。已鉴定基因的COG综合注释汇总于补充表S4。总体而言,这些发现为菌株DHSY的生长代谢和羽毛降解提供了分子层面的见解。
【数据】基因组大小:4,448,127 bp;GC含量:45.95%;蛋白编码基因:4375个;sRNA:106个;tRNA:81个;rRNA:24个;重复DNA序列:101个;前噬菌体:4个;CRISPR区域:2个;NR注释率:99.79%;Swiss-Prot注释率:87.41%;Pfam注释率:80.18%;COG注释率:46.99%;KEGG注释率:73.19%;CAZyme基因:164个;GHs:74个(32个家族);GTs:39个;CEs:35个;PLs:8个;AAs:6个;CBMs:2个;GO注释基因:2056个(46.99%);分子功能基因:1683个;细胞组分基因:1299个;生物学过程基因:1227个;蛋白水解相关基因:55个;COG注释基因:3508个(80.18%);碳水化合物转运与代谢:373个;转录:366个;氨基酸转运与代谢:348个
3.3 DHSY基因组中角蛋白酶基因分析
在上述基因组概览基础上,进一步聚焦于菌株DHSY中特异性负责角蛋白降解的遗传决定因子。羽毛降解被认为并非由单一蛋白酶介导,而是多种酶的协同作用。为促进从富含角蛋白的废弃物中酶法回收氨基酸,初始破坏二硫键对于去稳定化致密角蛋白结构并暴露肽链至……
【数据】原文未详述
讨论与解读
本研究证实,B. paralicheniformis DHSY具有强大的羽毛降解能力,而该应用在该物种中此前鲜有报道。全基因组分析鉴定到19个潜在角蛋白酶编码基因,分属多个MEROPS蛋白酶家族,包括S1、S8、M16、M14、M28、M55、M3和M32,另有55个蛋白水解相关基因以及大量参与氨基酸转运与代谢的基因。这些基因组特征为羽毛角蛋白的蛋白水解降解及降解产物的后续利用提供了遗传基础。此外,通过单因素实验与正交设计相结合,系统优化了发酵条件,揭示了温度、pH、羽毛浓度、酪蛋白浓度及关键金属离子(Mg2+和Na+)对细菌生长、角蛋白酶活性和羽毛降解的影响。在优化条件下,羽毛降解率达98.75% ± 0.73%,发酵液中可溶性蛋白含量达8.09 mg/mL,超过此前报道的多个羽毛降解菌株。此外,菌株DHSY对中性至碱性环境的强适应性和耐热特性有利于液体发酵过程中维持持续的生长和代谢活性。未来研究将聚焦于已鉴定角蛋白酶候选基因的实验验证,特别是参与关键降解步骤的蛋白酶。
编译者解读
该研究将全基因组测序与经典发酵优化相结合,为羽毛废弃物的生物转化提供了一株有应用潜力的菌株。其亮点在于从基因组层面系统梳理了角蛋白酶基因谱,并给出了98.75%降解率和8.09 mg/mL可溶性蛋白的量化指标。局限在于角蛋白酶候选基因尚未逐一进行异源表达或敲除验证,降解机制仍停留在注释与推测层面。从合成生物学角度看,后续可将关键角蛋白酶基因在底盘细胞中重构表达,构建人工多酶协同体系,实现羽毛角蛋白向高值氨基酸产品的定向转化。
参考来源
期刊:Process Biochemistry, 2026
DOI: 10.1016/j.procbio.2026.09.014
DOI: 10.1016/j.procbio.2026.09.014