来源:Characterization of a novel strain of Bacillus subtilis and its antimicrobial activity against Clostridium perfringens(Microbiological Research)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
产气荚膜梭菌是危害畜禽养殖的重要病原菌,抗生素生长促进剂的限用催生了对益生菌替代方案的迫切需求。本研究从高盐湖环境中分离到一株新型枯草芽孢杆菌L5,系统评估了其耐酸耐胆盐能力、对猪肠道上皮细胞IPEC-J2的黏附与免疫调控作用,以及对产气荚膜梭菌A型和G型的拮抗效果。结合代谢组学与全基因组测序,揭示了L5的抗菌物质基础与代谢响应特征,为开发抗产气荚膜梭菌的益生菌制剂提供了菌株资源和分子依据。
研究背景
产气荚膜梭菌是一种革兰氏阳性、产芽孢的厌氧病原菌,在饲料储存不当等有利条件下可快速增殖,已知可分泌20种以上的毒力毒素,数十年来一直与人类和动物的肠道疾病相关。在中国,23.4%的鸡和72%的猪肠道中检测到该菌,给家禽和养猪业带来越来越大的经济损失。根据分泌毒素的组合,产气荚膜梭菌分为A至G七个类型,各型对应特定的宿主和疾病。其中A型是食物中毒和食源性疾病的主要病因,也是新生仔猪腹泻的常见原因;G型是 newly identified 的毒素型,产生NetB毒素,是鸡坏死性肠炎的主要致病因子,对全球家禽业构成重大威胁。目前治疗产气荚膜梭菌感染主要依赖抗生素,但存在导致抗生素耐药的高风险。随着多重耐药超级细菌的出现和疾病传播风险的加剧,许多国家已禁止在畜禽生产中将抗生素用作饲料添加剂。在探索中的各类抗生素替代品中,益生菌因其调节免疫系统、肠道菌群组成及宿主营养消化的能力而备受重视。新型益生菌菌株的筛选标准严格,要求具备耐低pH和胆盐环境的能力,以及有效定殖肠道的能力,以确保足够数量的活菌能在消化系统中存活并发挥作用。基于这些标准,本研究鉴定了一株枯草芽孢杆菌L5,其在低pH和高盐条件下表现出耐受性,并在体外对IPEC-J2细胞展现出强定殖能力。
研究方法
2.1 细菌培养
枯草芽孢杆菌L5此前从加拿大萨斯卡通的一个高盐湖中分离,保存于加拿大圭尔夫大学本实验室。作为额外对照,使用一株市售枯草芽孢杆菌菌株(CS)进行比较分析。两株菌均在Luria-Bertani(LB)液体肉汤或LB琼脂平板上、37℃、摇床培养箱中、好氧条件下培养。本研究中使用的产气荚膜梭菌G型(CP315)和A型(CP343)购自加拿大圭尔夫大学动物健康实验室,在Fluid thioglycollate medium(FT)中或Tryptose sulfite cycloserine琼脂(TSC)平板上、37℃、厌氧条件下培养。
【数据】菌株:枯草芽孢杆菌L5、市售枯草芽孢杆菌CS、产气荚膜梭菌G型CP315、A型CP343;培养基:LB液体/琼脂、FT、TSC;温度:37℃;条件:L5/CS好氧,CP315/CP343厌氧;原文未详述其他参数
2.2 细胞系培养
猪肠道上皮细胞系(IPEC-J2)最初来源于新生仔猪空肠,购自美国典型培养物保藏中心(ATCC;弗吉尼亚州,美国)。IPEC-J2细胞在Dulbecco改良Eagle培养基/Ham营养混合物F-12(DMEM/F12)1:1混合液中培养,含10%胎牛血清(FBS)和1%青霉素/链霉素(P/S),在5% CO₂、95%好氧气氛、90%湿度、37℃条件下培养。
【数据】细胞系:IPEC-J2;培养基:DMEM/F12(1:1);血清:10% FBS;抗生素:1% P/S;CO₂:5%;湿度:90%;温度:37℃;原文未详述其他参数
2.3 枯草芽孢杆菌L5对酸和胆盐的耐受性
枯草芽孢杆菌L5在高酸性环境和高胆盐中的耐受性按照Sudan等人先前报道的方法并稍作修改进行评估(Sudan et al., 2022a)。简言之,LB肉汤用2 M HCl调整至pH 2、3和6.8(对照),或含有0%(对照)、0.3%、0.5%和1%的胆盐(Merck,货号48305,新泽西州,美国)。将30微升L5过夜培养物与70 μL不同pH或胆盐浓度的LB肉汤在96孔微孔板中混合,分别在37℃下孵育1、3和5小时。在每个孵育时间点,使用细菌计数比色测定试剂盒(Bio Vision Technologies,美国)按照制造商方案通过分光光度法测量细菌活力。随后使用Cytation 5多功能酶标仪(Biotek,Winooski,VT,美国)读取OD 600 nm。每个实验进行三次重复。
【数据】菌株:枯草芽孢杆菌L5;pH:2、3、6.8;胆盐浓度:0%、0.3%、0.5%、1%;接种量:30 μL过夜培养物+70 μL LB;温度:37℃;时间:1、3、5 h;检测:OD 600 nm;重复:三次
2.4 枯草芽孢杆菌L5-IPEC-J2黏附试验
为检测L5对IPEC-J2细胞的黏附能力,按照先前描述并稍作修改的方法进行细胞表面黏附试验(Sudan et al., 2021a)。简言之,将IPEC-J2细胞以4 × 10⁵个/孔接种于24孔板。使用含10% FBS和1% P/S的DMEM/F12培养基,在5% CO₂、95%好氧气氛、90%湿度、37℃条件下培养细胞24小时。用预温的PBS洗涤细胞两次,用补充10% FBS的CO₂非依赖性培养基更换培养基,并在进行细菌共培养试验前将细胞在培养箱中平衡至少30分钟。测量L5和CS培养物的600 nm光密度(OD 600 nm=1)。取1 mL细菌培养物,5000 × g离心10分钟,弃上清,将细菌沉淀重悬于1 mL CO₂非依赖性完全培养基中,然后向每孔细胞中加入100 μL含10⁷ CFU的细菌。将细菌细胞在37℃培养箱中孵育3小时。孵育结束后,移除培养基,用PBS冲洗细胞两次以去除未黏附的细菌。向每孔加入300 μL 0.05%胰蛋白酶-EDTA,室温孵育10分钟。加入700 μL含10% FBS的DMEM培养基中和胰蛋白酶,充分混匀后总体积为1000 μL。取15 μL细胞悬液,与等体积台盼蓝混合,进行IPEC-J2细胞计数。同时,将细胞悬液的系列稀释液涂布于LB琼脂平板,在37℃好氧条件下过夜培养,以计数黏附的细菌。
【数据】细胞接种量:4 × 10⁵个/孔;培养时间:24 h;细菌接种量:100 μL含10⁷ CFU;共培养时间:3 h;胰蛋白酶:0.05%胰蛋白酶-EDTA 300 μL;中和:700 μL DMEM+10% FBS;台盼蓝:15 μL细胞悬液+等体积;涂布:LB琼脂,37℃过夜;原文未详述其他参数
2.5 IPEC-J2细胞中免疫应答相关基因的相对mRNA表达
为确定L5对IPEC-J2细胞中免疫应答相关基因表达的影响,按照L5细胞表面黏附试验进行共培养实验。在37℃共培养6小时后,使用Norgen总RNA纯化试剂盒(Norgen Biotec,货号:17200,Thorold,安大略省,加拿大)从细胞中分离总RNA。使用NanoDrop 8000(Thermo Fisher,货号:ND8000-GL,Waltham,MA,美国)评估总RNA的浓度和260/280比值。使用iScript逆转录SuperMix试剂盒(Bio-rad Laboratories,Ltd.,Berkeley,加拿大)将总RNA逆转录为互补DNA。使用Bio-Rad CFX Connect实时系统进行定量实时PCR(qRT-PCR)。引物按先前描述设计(Sudan et al., 2022b),由Integrated DNA Technologies(IDT,Guelph,安大略省,加拿大)合成。引物信息列于表1。对于基因表达归一化,使用GAPDH作为参考基因。qRT-PCR在95°C下激活酶3分钟;95°C变性5秒;然后在60°C退火20秒。反应重复40个循环。相对mRNA表达结果以使用2-ΔΔCT方法计算的倍数变化表示。
【数据】共培养时间:6 h;温度:37℃;RNA纯化:Norgen试剂盒;浓度检测:NanoDrop 8000;逆转录:iScript试剂盒;qRT-PCR:95°C 3 min激活,95°C 5 s变性,60°C 20 s退火,40循环;参考基因:GAPDH;方法:2-ΔΔCT;原文未详述其他参数
2.6 抗菌活性检测
枯草芽孢杆菌L5和CS菌株分别在LB肉汤中、37℃、800 rpm振荡、好氧条件下独立培养。对于每个独立的CFS制备,将过夜培养物调整至OD600为1,并按1:100(体积/体积)稀释到新鲜LB中。培养物孵育16小时,然后在4℃下3000 × g离心15分钟收获。澄清的上清液通过无菌0.22 µm膜过滤器以获得无细胞上清液(CFS)。L5的抗菌活性使用琼脂点样法和代谢测定法评估,如先前描述并稍作修改(Kemme and Heinzel-Wieland, 2018; Sudan et al., 2022b)。对于琼脂点样法,将10⁸ CFU的CP315或CP343与20 mL TSC琼脂混合并加入培养皿中,在琼脂中打约8 mm直径的孔,向孔中加入10 μL L5 CFS、CS CFS及其蛋白酶K处理对应物(30 U/mL,55℃处理45分钟),平板在37℃厌氧条件下孵育。孵育24小时后,观察抑菌圈直径。对于代谢测定法,在FT肉汤中制备L5 CFS、CS CFS及其蛋白酶K处理对应物的两倍系列稀释液,最终工作浓度为25%(v/v),每孔加入100 μL。随后,向96孔微孔板的每孔中加入100 μL CP315或CP343悬浮肉汤(1 × 10⁷ CFU/mL),混合后最终浓度为5 × 10⁵ CFU/mL,在37℃厌氧条件下孵育24小时。孵育后,使用Cytation 5多功能酶标仪(Biotek,Winooski,VT,美国)读取每孔的600 nm光密度(OD 600 nm)。每个实验进行三次重复。
【数据】菌株:L5、CS、CP315、CP343;培养:LB,37℃,800 rpm,16 h;离心:3000 × g,15 min,4℃;过滤:0.22 µm;蛋白酶K:30 U/mL,55℃,45 min;琼脂点样:10⁸ CFU病原菌+20 mL TSC,孔直径~8 mm,10 μL CFS,37℃厌氧24 h;代谢测定:CFS终浓度25% (v/v),病原菌终浓度5 × 10⁵ CFU/mL,37℃厌氧24 h,OD 600 nm;重复:三次
研究结果
4.1 L5耐低pH和高胆盐培养条件
如图1所示,我们分离的枯草芽孢杆菌L5菌株能够在低pH和胆盐存在的条件下存活。尽管与pH 6.8条件相比有所延迟——在pH 6.8条件下L5在培养1小时时代谢活性即增加——但该益生菌在pH 2和pH 3条件下的代谢活性在孵育3小时后均显示出显著增加(图1A)。L5对高达1%浓度的胆盐表现出强耐受性,其OD600代谢活性在孵育5小时后开始增加(图1B)。
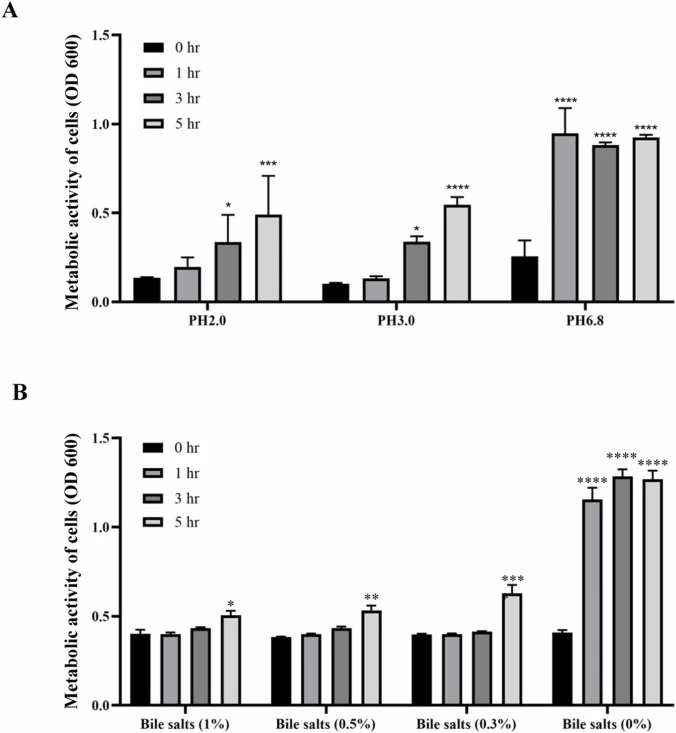
【数据】pH:2、3、6.8;胆盐浓度:0%、0.3%、0.5%、1%;代谢活性增加时间:pH 6.8为1 h,pH 2和3为3 h,1%胆盐为5 h;检测:OD600
4.2 L5对IPEC-J2细胞表面的黏附能力
与IPEC-J2细胞共培养3小时后,发现L5以相对较高的量附着于细胞表面,高于市售菌株(CS)益生菌。具体而言,L5处理组每个IPEC-J2细胞分离出超过2 CFU,而CS组分离出少于1 CFU(图2)。
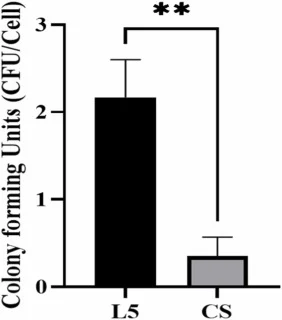
【数据】共培养时间:3 h;黏附量:L5 >2 CFU/细胞,CS <1 CFU/细胞
4.3 L5改变IPEC-J2中免疫应答相关基因表达模式
为进一步探究L5与宿主细胞可能的相互作用机制,检测了IPEC-J2与L5共孵育6小时后免疫应答相关基因的表达水平。如图3所示,L5处理显著降低了炎症相关基因IL-6和IL-8的表达水平,同时增加了细胞紧密连接相关基因CLDN1和OCLN1的表达水平。抗凋亡基因Bcl2被L5处理上调,而促凋亡基因CASP3被L5处理下调。
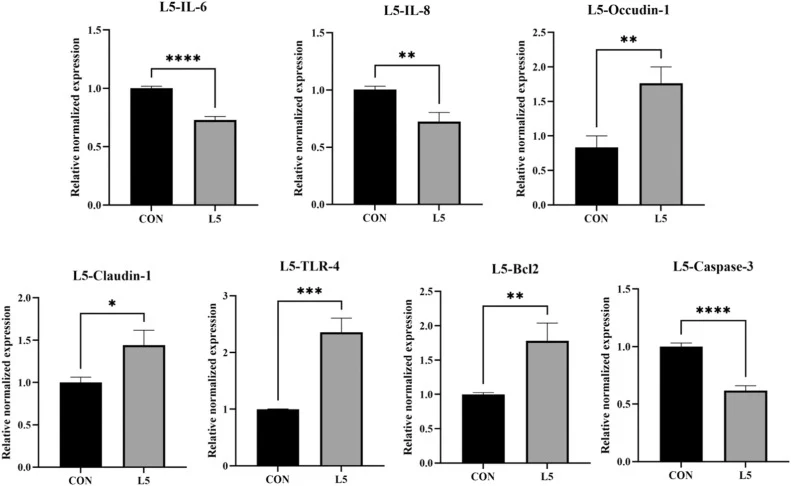
【数据】共孵育时间:6 h;IL-6:显著降低;IL-8:显著降低;CLDN1:显著增加;OCLN1:显著增加;Bcl2:上调;CASP3:下调;原文未详述具体倍数和p值
4.4 L5对产气荚膜梭菌的抗菌活性
进行琼脂点样法以评估L5 CFS对产气荚膜梭菌的拮抗能力。如图4所示,L5的CFS对在琼脂平板上生长的产气荚膜梭菌G型(CP315)和A型(CP343)显示出强抑制活性。为检验抗菌物质是否为蛋白类,在抗菌检测前将上清液与蛋白酶K孵育,L5组仍观察到清晰的抑菌圈,尽管抑菌圈直径相对小于未用蛋白酶K处理的组。相比之下,市售益生菌菌株的CFS对CP315生长平板显示出不明显的抑制效果,对CP343显示出轻微抑制活性,均弱于L5菌株。为进一步验证L5-CFS对产气荚膜梭菌的抗菌活性,对CP315和CP343菌株进行了代谢测定。结果证实,即使经过蛋白酶K处理,L5-CFS仍抑制两株菌的代谢活性(图5)。相比之下,CS-CFS在可比浓度下对两株菌均无抑制效果。
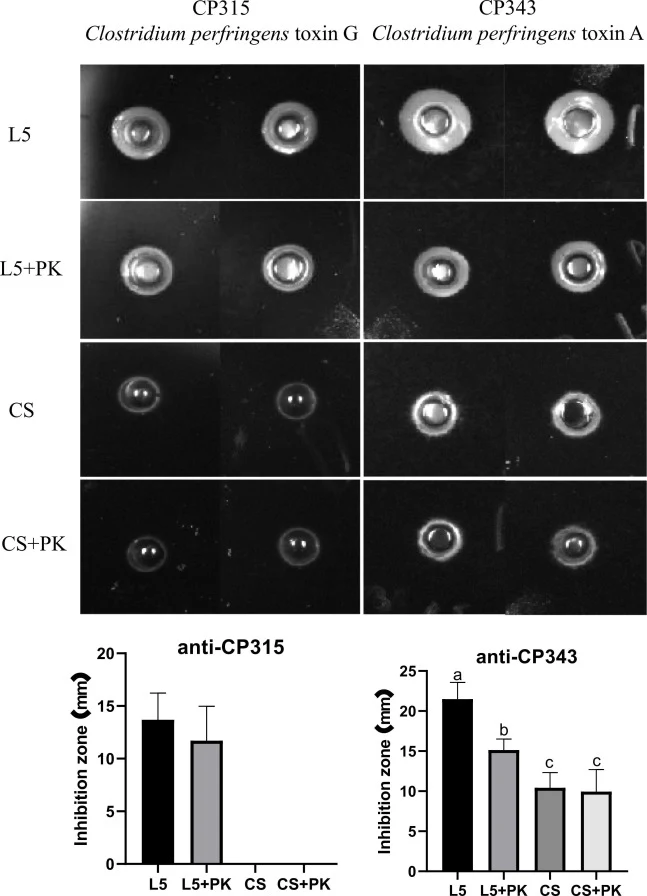
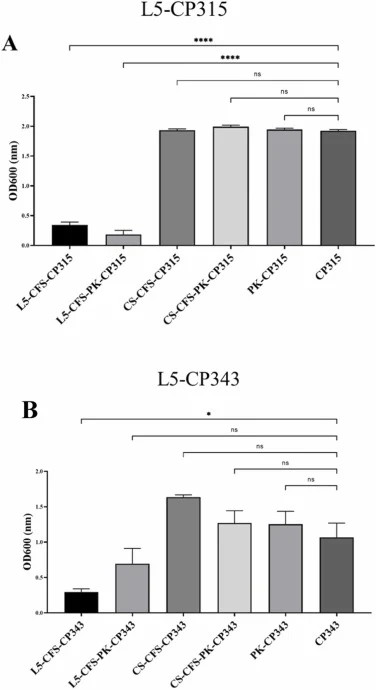
【数据】菌株:L5、CS、CP315、CP343;方法:琼脂点样法、代谢测定法;蛋白酶K处理:30 U/mL,55℃,45 min;L5 CFS:对CP315和CP343均有强抑制,蛋白酶K处理后仍有抑菌圈;CS CFS:对CP315不明显,对CP343轻微;代谢测定:L5-CFS抑制两株菌代谢活性,CS-CFS无抑制
4.5 L5降低产气荚膜梭菌毒素基因表达
为揭示L5与产气荚膜梭菌相互作用的潜在机制,检测了与L5共培养6小时后产气荚膜梭菌特定毒素基因的表达。我们的结果显示,L5能够下调CP315中netB的表达,但不影响plc的表达;然而,市售菌株上调了CP315中netB的表达(图6A)。在L5和CS处理组中,plc表达均显著降低(图6B)。
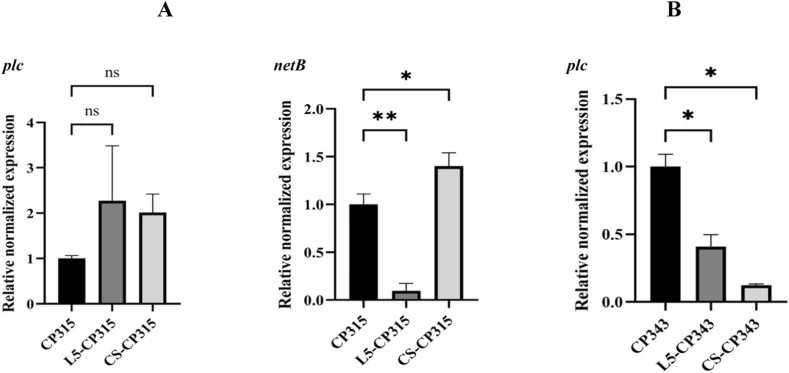
【数据】共培养时间:6 h;CP315 netB:L5下调,CS上调;CP315 plc:L5无影响;CP343 plc:L5和CS均显著降低
4.6 L5降低产气荚膜梭菌诱导的IPEC-J2细胞毒性
为研究L5对产气荚膜梭菌诱导的IPEC-J2细胞毒性的预防作用,进行了共孵育实验。与对照组(图7G)相比,仅与L5或CS菌株厌氧孵育6小时时,未观察到IPEC-J2细胞明显的形态学变化(图7A&D)。相比之下,与CP315或CP343孵育的IPEC-J2组在形态学上观察到严重的细胞皱缩甚至细胞脱落(图7H&I)。与L5共孵育后,CP315和CP343诱导的IPEC-J2细胞损伤均被减弱(图7B&C),与CS菌株相比效果更为显著(图7E&F)。总体而言,这些结果表明L5保护IPEC-J2细胞免受产气荚膜梭菌诱导的细胞毒性和细胞损伤。
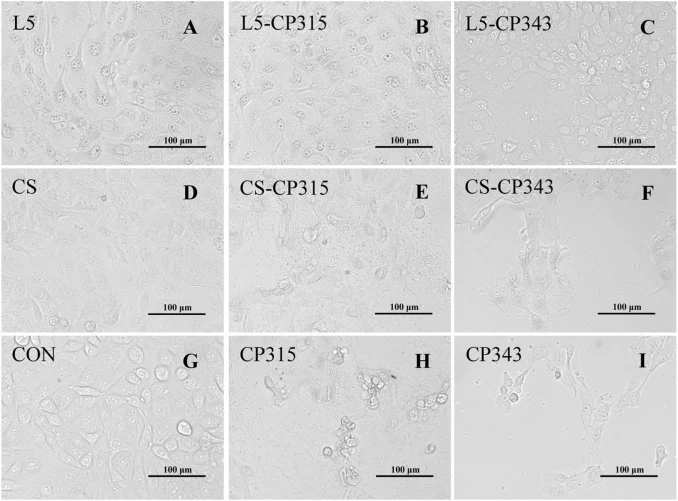
【数据】共孵育时间:6 h;条件:厌氧;L5/CS单独:无明显形态变化;CP315/CP343单独:严重细胞皱缩或脱落;L5+CP315/CP343:损伤减弱;CS+CP315/CP343:效果弱于L5
4.7 L5与产气荚膜梭菌共培养时分泌代谢谱发生变化
为阐明L5抑制产气荚膜梭菌活性的潜在机制,我们使用HPLC对L5和产气荚膜梭菌单培养和共培养的细菌培养上清液进行了非靶向代谢组学分析。对三个组的胞外代谢组谱进行了主成分分析(PCA)和偏最小二乘判别分析(PLS-DA)并比较。PCA和PLS-DA得分图显示共培养组分别与L5和产气荚膜梭菌单培养组明显分离(图8A&B)。C18柱共捕获1012个特征,HILIC柱捕获1052个特征。其中,C18柱鉴定的422个特征和HILIC柱鉴定的466个特征通过ChemSpider数据库成功注释(表S1)。值得注意的是,177个特征被两根色谱柱一致捕获。比较分析显示共培养的代谢组谱发生显著改变,如热图和聚类分析所示。在注释的代谢物中,我们特别关注那些在产气荚膜梭菌单培养中不存在、在L5单培养中水平较低、但在共培养中升高的化合物。这些特征可能代表L5菌株响应产气荚膜梭菌刺激的分泌产物,可能是发挥抗产气荚膜梭菌效果的主要化合物。结果还揭示了表面活性素样推定特征(表面活性素是一种已知抗菌化合物)的检测,以及众多未注释化合物,包括C₅₇H₈₆N₉O₅P(表3)。这些新检测到的化合物可能代表值得进一步研究的潜在抗菌剂。
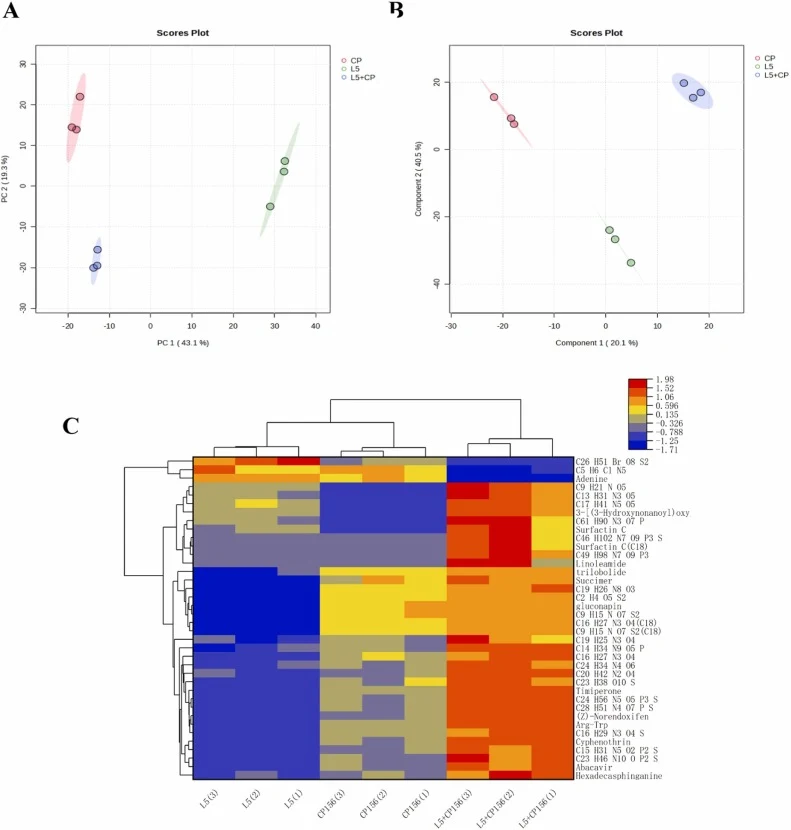
【数据】方法:HPLC非靶向代谢组学;C18柱特征:1012个;HILIC柱特征:1052个;C18注释:422个;HILIC注释:466个;两柱共同特征:177个;关键化合物:表面活性素样特征、C₅₇H₈₆N₉O₅P
4.8 枯草芽孢杆菌L5的一般基因组特征与功能分析
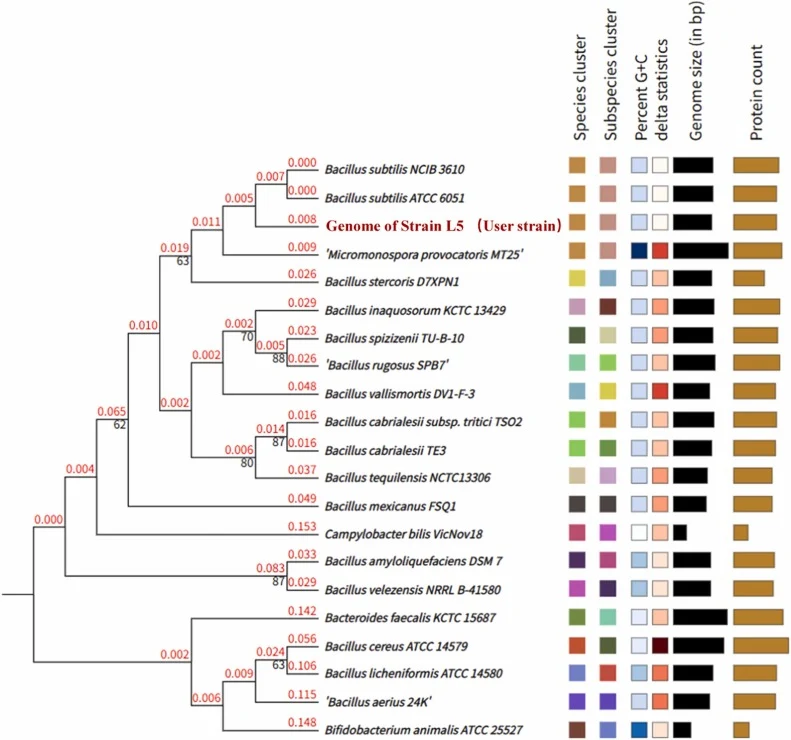
如图9所示,枯草芽孢杆菌L5的整个基因组序列大小为4 119 395 bp。L5的全基因组GC含量为43.57%。在L5中总共鉴定出4265个蛋白编码序列(CDS),总基因长度为3 631 611 bp(占总基因长度的88.16%),平均基因长度为851 bp。基因组包含86个tRNA基因、30个rRNA序列和134个分泌蛋白序列。基于组装基因组序列和蛋白编码基因预测结果绘制了环形基因组图,提供了基因组特征的可视化(图9A)。使用CRISPR/Cas Finder软件未鉴定到CRISPR/Cas位点。使用AntiSMASH软件对L5的次级代谢产物进行注释,鉴定出11个负责次级代谢产物合成的基因簇(图9B)。其中,4个簇为非核糖体肽(NRPS),2个为萜烯,各1个为sactipeptide、T3PKS、lanthipeptide和含RRE化合物,以及1个未表征代谢物。注释的基因簇包括已知的表面活性素、丰原素、bacillaene、subtilosin A和bacillibactin生物合成基因簇。然而,其中3个基因簇未与任何明确鉴定的代谢物关联。L5基因组的功能分析如图10所示。共有3434个基因被注释到GO功能,占基因组的80.52%。最富集的GO术语是代谢过程和催化活性。此外,3075个基因被注释到21个COG功能类别,占基因组的72.10%,功能主要与氨基酸转运和代谢、转录、碳水化合物转运和代谢以及信号转导机制相关。此外,1745个基因被注释到KEGG功能,主要关联……
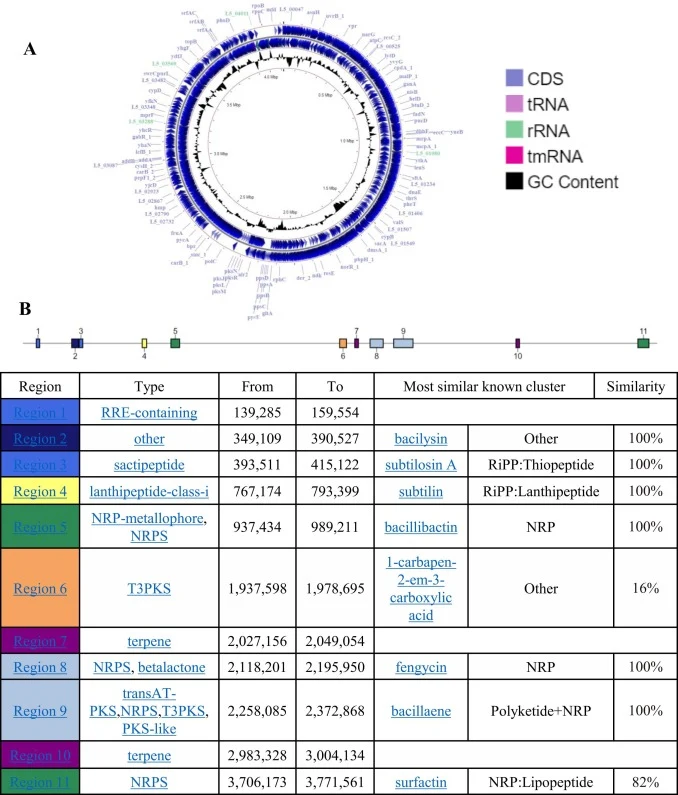
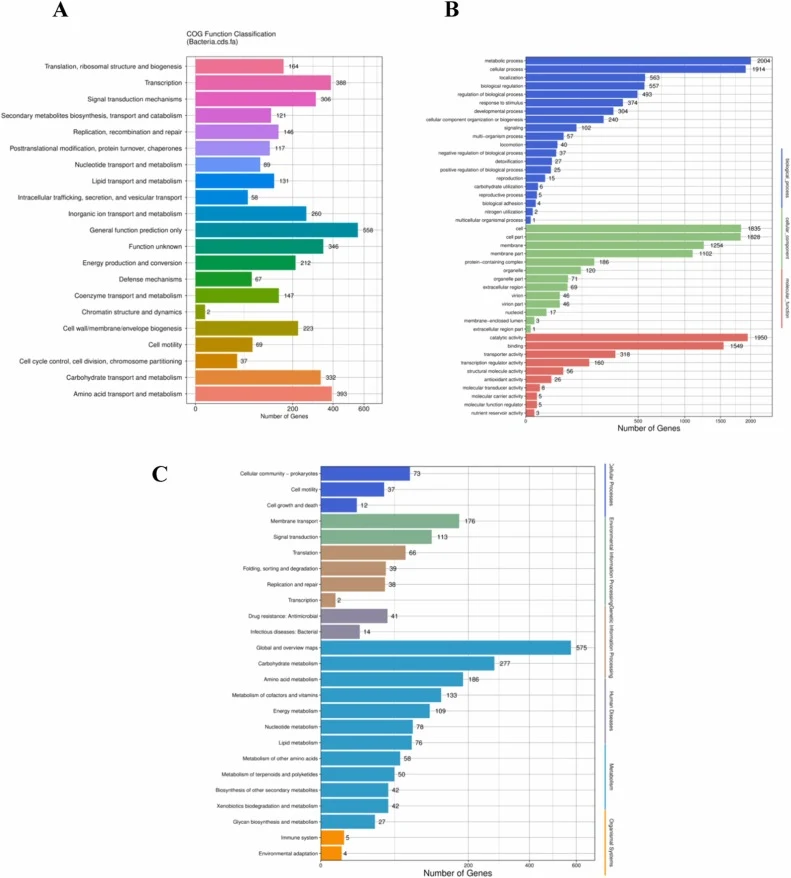
【数据】基因组大小:4 119 395 bp;GC含量:43.57%;CDS:4265个;总基因长度:3 631 611 bp(88.16%);平均基因长度:851 bp;tRNA:86个;rRNA:30个;分泌蛋白:134个;CRISPR/Cas:未鉴定到;次级代谢基因簇:11个(4 NRPS、2萜烯、1 sactipeptide、1 T3PKS、1 lanthipeptide、1 RRE、1未表征);已知BGC:表面活性素、丰原素、bacillaene、subtilosin A、bacillibactin;GO注释:3434个基因(80.52%);COG注释:3075个基因(72.10%),21个类别;KEGG注释:1745个基因
讨论与解读
病原菌耐药性发展迅速,亟需加速开发抗菌化合物。随着多重耐药超级细菌的出现及相关疾病传播风险,许多国家已禁止在畜禽生产中使用抗生素作为饲料添加剂。在探索的各类抗生素替代品中,益生菌因能调节免疫系统、肠道菌群组成及宿主营养消化而备受重视。新型益生菌菌株的筛选标准严格,要求耐低pH和胆盐环境,并能有效定殖肠道,以确保足够数量的活菌在消化系统中存活并发挥作用。基于这些标准,本研究鉴定了枯草芽孢杆菌L5,其在低pH和高盐条件下表现出耐受性,并在体外对IPEC-J2细胞展现出强定殖能力。益生菌通过多种机制在宿主体内对抗病原菌:增强肠道上皮屏障、抑制病原菌黏附、分泌抗菌物质或竞争性排除病原菌。本研究中,L5展现出对IPEC-J2细胞的强黏附能力,提示其在使用时具有竞争性排除肠道病原菌的潜力。
编译者解读:该研究从高盐湖环境挖掘到一株兼具耐酸耐胆盐、强黏附与广谱抗产气荚膜梭菌活性的枯草芽孢杆菌L5,路径清晰——表型筛选、共培养功能验证、代谢组与基因组双组学解析。亮点在于将抗菌表型与11个次级代谢基因簇及共培养诱导的代谢谱变化关联,为后续活性分子锁定提供了候选清单。局限在于抗菌机制尚未通过基因敲除或纯化化合物验证,且 efficacy 仅在猪源细胞模型评估,对家禽等其它畜种的适用性仍待体内试验确认。
参考来源
期刊:Microbiological Research, 2027
DOI: 10.1016/j.micres.2026.128743
DOI: 10.1016/j.micres.2026.128743