来源:Optimizing acid stability and catalytic activity of Aspergillus flavus uricase (AfUOX) via surface charge engineering and B-factor guided design(International Journal of Biological Macromolecules)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
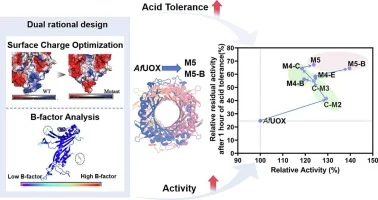
痛风源于高尿酸血症,而人类在进化中丢失了功能性尿酸氧化酶,外源补充尿酸酶成为降尿酸治疗的重要策略。但尿酸酶在酸性环境下极易失活,提升其内在耐酸能力同时维持高催化活性是一大难题。本研究以黄曲霉尿酸氧化酶(AfUOX)为对象,整合表面电荷优化与B因子引导的构象刚性化两种理性设计策略,经三轮迭代组合突变,获得M5和M5-B两个组合变体。它们在pH 4.5下孵育60分钟后分别保留67%和64%的初始活性,远高于野生型的25%,同时比活性也有提升。
研究背景
痛风是一种由单钠尿酸盐(MSU)晶体沉积引起的自身炎症性代谢疾病,其根源是持续性高尿酸血症。高尿酸血症不仅增加痛风风险,还与多种代谢及肾脏疾病相关。人类在进化过程中丧失了功能性尿酸酶,无法将尿酸进一步降解为尿囊素,导致血清尿酸水平升高、对高尿酸血症更易感。现有降尿酸疗法包括黄嘌呤氧化酶抑制剂、促尿酸排泄药物和尿酸酶制剂,虽有临床获益,但在疗效、安全性或长期耐受性方面仍存在局限。
尿酸氧化酶(尿酸酶,EC 1.7.3.3)催化尿酸氧化为尿囊素——一种溶解度极高的产物。由于人体缺乏内源性功能性尿酸酶(该酶为同源四聚体,负责尿酸降解),外源补充尿酸酶已成为降尿酸治疗的重要策略。与别嘌醇和非布司他主要减少尿酸生成不同,尿酸酶直接将蓄积的尿酸转化为尿囊素,提供了一种独特的酶学调控尿酸代谢途径。然而,尿酸酶的临床应用受两大障碍限制:其内在的酸不稳定性以及……(原文此处截断)
研究方法
4.1 化学试剂
除非另有说明,所有化学试剂均购自生工生物工程(上海)股份有限公司。尿酸购自Sigma-Aldrich(美国)。引物及DNA测序服务由擎科生物科技有限公司提供。实验使用南京诺唯赞生物科技股份有限公司的Phanta Max Master Mix DNA聚合酶。
【数据】试剂来源:生工生物(上海);尿酸:Sigma-Aldrich(美国);引物与测序:擎科生物;DNA聚合酶:诺唯赞Phanta Max Master Mix;原文未详述其他试剂用量
4.2 菌株与质粒
使用pET28a(+)载体进行基因克隆与重组蛋白表达。大肠杆菌BL21(DE3)(生工生物)作为蛋白生产宿主。通用生物(安徽)合成了经密码子优化的AfUOX基因,随后将其插入pET28a(+)载体。
【数据】载体:pET28a(+);表达宿主:E. coli BL21(DE3);基因:密码子优化AfUOX;来源:通用生物(安徽);原文未详述培养条件
4.3 定点突变
采用基于pET28a(+)表达系统的全质粒两步PCR法向AfUOX基因引入位点特异性突变。该方法使用携带目标密码子替换的正向引物及其对应的反向引物[51]。表S8列出了所有用于突变的引物。所有突变AfUOX序列均通过DNA测序确认(擎科生物)。
【数据】方法:全质粒两步PCR;模板:pET28a(+)–AfUOX;引物:见表S8;验证:DNA测序(擎科生物);原文未详述PCR循环参数
4.4 尿酸酶及突变体在E. coli BL21(DE3)中的生产与纯化
从E. coli Top10细胞中提取验证过的质粒,转化至E. coli BL21(DE3)进行重组蛋白表达。挑取单菌落接种至5 mL含50 μg/mL卡那霉素的LB培养基中,37 °C、220 rpm振荡培养12小时。随后将培养物(1% v/v)转接至新鲜LB培养基。当600 nm光密度(OD₆₀₀)达到0.6–0.8时,加入异丙基-β-D-硫代半乳糖苷(IPTG)至终浓度0.4 mM诱导蛋白表达,随后于16 °C孵育16–18小时。离心收集细胞,冰上超声裂解。于4 °C、12,000 ×g离心30分钟后收集上清,使用Ni-IDA预装柱(生工生物,上海)通过镍亲和层析纯化目标蛋白。将洗脱的蛋白组分置换至含1 mM EDTA和100 mM NaCl的0.1 M硼酸–0.025 M四硼酸钠缓冲液(pH 8.0)中。使用10%丙烯酰胺凝胶通过SDS-PAGE评估蛋白纯度与分子量。纯化后的酶保存于−80 °C备用。
【数据】接种:单菌落至5 mL LB;抗生素:50 μg/mL卡那霉素;培养:37 °C、220 rpm、12 h;转接:1% v/v;诱导:OD₆₀₀ 0.6–0.8,IPTG 0.4 mM;表达:16 °C、16–18 h;离心:12,000 ×g、30 min、4 °C;纯化:Ni-IDA亲和层析;缓冲液:0.1 M硼酸–0.025 M四硼酸钠、1 mM EDTA、100 mM NaCl、pH 8.0;凝胶:10%丙烯酰胺;保存:−80 °C
4.5 尿酸氧化酶活性测定
以尿酸为底物,参照先前报道的方案[52,53]并稍作修改,测定AfUOX及其变体的酶活性。通过SpectraMax iD5酶标仪(Molecular Devices)在石英微孔板中监测293 nm吸光度的下降来测定尿酸酶活性。反应体系(总体积3.0 mL)包含100 μL纯化酶溶液(0.02 mg/mL)和2.9 mL用0.1 M硼酸–0.025 M四硼酸钠缓冲液(pH 8.0)配制的尿酸底物溶液(100 μM)。将酶溶液加入含底物的缓冲液中启动反应,于30 °C孵育恰好5分钟。加入0.5 mL 20%(w/v)KOH终止反应。KOH终止后,取200 μL转移至石英96孔微孔板。以除酶外含所有组分的空白对照为参比,记录293 nm吸光度。吸光度由仪器进行光程校正。一个酶活性单位(U)定义为在上述条件下每分钟将1 μmol尿酸转化为尿囊素所需的酶量。酶的比活性按以下公式计算:比活性(U/mg)= △A × Vt × df / (12.6 × 1 × 0.1 × t × 0.02),其中:△A = 293 nm吸光度下降值;Vt = 终止后反应总体积(mL);df = 稀释倍数;12.6 = 尿酸在293 nm处的毫摩尔消光系数(mM⁻¹ cm⁻¹);1.0 = 归一化光程(cm);t = 反应时间(min);0.1 = 加入的酶溶液体积(mL);0.02 = 酶溶液浓度(mg/mL)。
【数据】检测波长:293 nm;反应体积:3.0 mL;酶量:100 μL、0.02 mg/mL;底物:尿酸100 μM;缓冲液:0.1 M硼酸–0.025 M四硼酸钠、pH 8.0;温度:30 °C;时间:5 min;终止液:0.5 mL 20%(w/v)KOH;检测体积:200 μL;消光系数:12.6 mM⁻¹ cm⁻¹;光程:1.0 cm
4.6 测定AfUOX及变体的最适温度与最适pH
通过在一系列pH缓冲液中测定酶比活性来确定最适pH:0.05 M磷酸氢二钠–磷酸二氢钠缓冲液(pH 6.0–7.5)、0.1 M硼酸–0.025 M四硼酸钠缓冲液(pH 7.5–9.0)以及0.05 M硼砂–NaOH缓冲液(pH 9.5)。为确定最适温度,在0.1 M硼酸–0.025 M四硼酸钠缓冲液(pH 8.0)中、15至50 °C范围内以5 °C为增量测定酶比活性。所有测定均做三次重复。
【数据】pH范围:6.0–9.5(三种缓冲体系);温度范围:15–50 °C;增量:5 °C;缓冲液:0.1 M硼酸–0.025 M四硼酸钠、pH 8.0(温度测定);重复:三次
4.7 AfUOX及变体的pH稳定性测定
将酶在0.1 M柠檬酸–柠檬酸钠缓冲液中稀释至终浓度0.5 mg/mL,置于指定pH(pH 5.5、pH 4.5或pH 3.5)。将酶溶液等分试样于30 °C水浴中静置孵育不同时间(0、10、20、30、40、50和60分钟)。在每个时间点取出等分试样,立即10倍稀释至冰冷的0.1 M硼酸–0.025 M四硼酸钠缓冲液(pH 8.0)中,以终止酸诱导变性并使酶恢复至最适pH用于活性测定。随后按4.5节所述标准测定条件测量残余活性。对于pH 5.5和pH 4.5,各时间点的残余活性以未处理酶(在同一缓冲液中孵育0分钟)的活性归一化为100%,构建pH稳定性曲线。在pH 3.5时,野生型及部分变体的残余活性接近检测限,相对活性归一化信息量不足,因此呈现绝对比活性(U/mg)。所有测定均做三次重复,数据以平均值±标准差(SD)表示。
【数据】酶浓度:0.5 mg/mL;缓冲液:0.1 M柠檬酸–柠檬酸钠;pH:5.5、4.5、3.5;温度:30 °C;时间点:0、10、20、30、40、50、60 min;终止:10倍稀释至冰冷0.1 M硼酸–0.025 M四硼酸钠、pH 8.0;重复:三次;数据表示:平均值±SD
4.8 动力学参数测定
参照Zhang等人[6]描述的方法并稍作修改测定动力学参数。动力学参数测定使用与4.5节相同的尿酸酶活性测定方法,唯底物浓度在0.005–0.40 mM范围内变化。反应在30 °C、0.1 M硼酸–0.025 M四硼酸钠缓冲液(pH 8.0)中进行。动力学参数(Kₘ和Vₘₐₓ)通过GraphPad Prism软件非线性回归拟合至Michaelis–Menten方程获得。转换数k cat根据反应混合物中AfUOX单体当量的摩尔浓度由Vmax计算,公式为k cat = Vmax/[E],其中[E]代表反应混合物中酶的摩尔浓度。Vmax值在计算k cat前转换为摩尔反应速率。催化效率(k cat/K m)随后由所得k cat和K m值计算。所有动力学参数在校正用于k cat计算的酶浓度基准后从原始数据重新计算。
【数据】底物浓度范围:0.005–0.40 mM;温度:30 °C;缓冲液:0.1 M硼酸–0.025 M四硼酸钠、pH 8.0;拟合软件:GraphPad Prism;拟合模型:Michaelis–Menten;k cat公式:k cat = Vmax/[E]
4.9 热稳定性测定
通过DSF法测定热变性温度(T m)评估野生型与突变体尿酸酶变体的热稳定性。使用实时定量PCR(qPCR)仪监测荧光信号。实验终反应体积为20 μL。每个反应混合物含1× SYPRO® Orange荧光染料、0.5 mg/mL纯化酶及染料试剂盒提供的缓冲液。采用以下热升变程序:温度初始设为25 °C,然后以1 °C·min⁻¹的恒定速率线性升至90 °C。使用Origin软件处理和可视化数据。以温度为x轴、一阶导数……(原文此处截断)
【数据】反应体积:20 μL;染料:1× SYPRO® Orange;酶浓度:0.5 mg/mL;起始温度:25 °C;终止温度:90 °C;升温速率:1 °C·min⁻¹;仪器:实时定量PCR仪;分析软件:Origin
研究结果
2.1 AfUOX突变体的理性设计
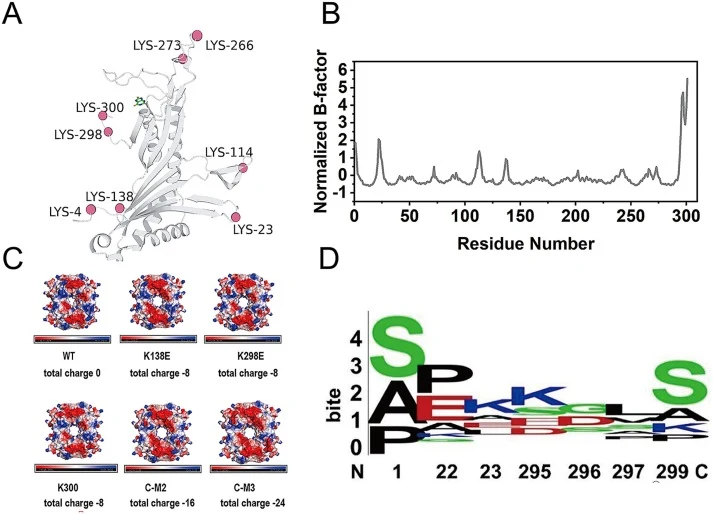
为提升AfUOX的酸稳定性和催化性能,我们采用两种理性设计策略鉴定有益突变。首先,表面电荷分析显示野生型AfUOX表面净电荷为零(图1C),这可能降低其在酸性条件下的活性。利用蛋白质超电荷策略,我们设计了八个负超电荷变体(K4E、K23E、K114E、K138E、K266E、K273E、K298E、K300E),每个变体预测每个四聚体净电荷为−8(表S1)。所有突变残基均位于无序卷曲区域,有助于避免破坏蛋白核心结构(图1A)。其次,基于AfUOX晶体结构(PDB ID: 4D12)的归一化B因子分析鉴定了残基1、22–23和295–301处的柔性区域,均位于环段内(图1B)。我们在这些位点进行虚拟饱和突变和FoldX[32]能量计算,选择具有有利ΔΔG值的变体,获得七个突变体:S1D、E22P、K23R、S295F、S296K、L297R和S299K(表S2)。ConSurf[33]分析进一步显示残基E22、S295和S296不保守(图1D)。基于此结果,我们在这些位点引入保守替换,额外生成三个突变体:E22P、S295K和S296G。总计构建了17个突变体用于后续实验评估。
【数据】表面净电荷:野生型AfUOX为0;负超电荷变体:8个(K4E、K23E、K114E、K138E、K266E、K273E、K298E、K300E),预测净电荷−8/四聚体;晶体结构PDB ID:4D12;B因子柔性区域:残基1、22–23、295–301;B因子引导突变体:7个(S1D、E22P、K23R、S295F、S296K、L297R、S299K);保守性分析:E22、S295、S296不保守;额外突变体:3个(E22P、S295K、S296G);突变体总数:17个
2.2 单点突变体的纯化与表征
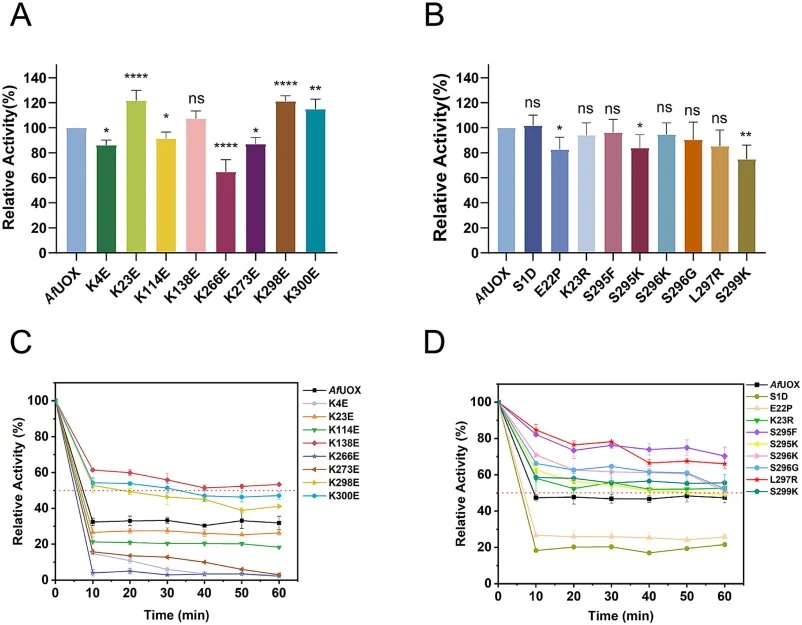
为验证计算预测,我们成功表达并纯化了野生型AfUOX及全部17个单点变体(图S1)。随后系统评估了它们的相对酶活性和酸稳定性。在所有变体中,仅K23E、K298E和K300E表现出增强的活性,分别达到野生型水平的122%、121%和115%。七个变体(K138E、K23R、S1D、S295F、S296K、S296G和L297R)活性与野生型相当,而其余七个变体(K4E、K114E、K266E、K273E、E22P、S295K和S299K)活性显著降低(图2A和B)。在酸稳定性方面,若干变体表现出对酸性条件的改善耐受性。在表面电荷工程突变体中,K138E、K298E和K300E显示出明显改善。在pH 5.5孵育1小时后,这些变体分别保留53%、41%和47%的初始活性。相比之下,野生型酶在相同条件下10分钟内即丧失超过50%的活性(图2C)。对于B因子引导的变体,七个突变体(K23R、S295F、S295K、S296K、S296G、L297R和S299K)表现出高于野生型的酸稳定性。其中S295F和L297R效果最强,在pH 5.5孵育1小时后分别保留约70%和66%的活性(图2D)。由于B因子引导的刚性化通常用于增强蛋白稳定性,我们使用差示扫描荧光法(DSF)测定了B因子引导变体的熔解温度(T m)。所有突变体的T m值相对于野生型无明显变化(表S3和图S2),表明引入的突变在测试条件下未实质性改变AfUOX的整体热稳定性。总体而言,对17个单点变体的分析鉴定出10个酸稳定性增强的变体和3个催化活性提高的变体(图3A)。
【数据】活性增强变体:K23E(122%)、K298E(121%)、K300E(115%);活性相当变体:7个(K138E、K23R、S1D、S295F、S296K、S296G、L297R);活性降低变体:7个(K4E、K114E、K266E、K273E、E22P、S295K、S299K);pH 5.5孵育1h残余活性:K138E 53%、K298E 41%、K300E 47%、野生型<50%(10 min内);B因子变体pH 5.5孵育1h残余活性:S295F约70%、L297R约66%;T m:所有突变体与野生型无明显变化;酸稳定性增强变体:10个;活性提高变体:3个
2.3 AfUOX的迭代组合工程以增强耐酸性
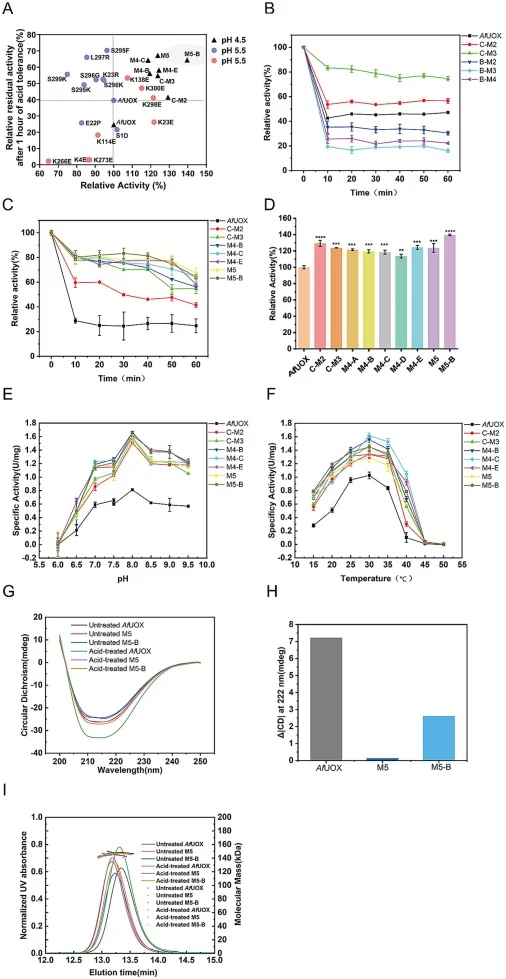
鉴于单点突变仅带来适度的耐酸性提升,我们进行了三轮组合突变以获得兼具增强酸稳定性和催化活性的变体。第一轮中,我们组合了来自策略1(表面电荷工程策略)的三个有益单点突变。该方法生成了双突变体C-M2(K138E/K298E)和三突变体C-M3(K138E/K298E/K300E)(表S4和图S3)。在pH 5.5孵育1小时后,C-M2和C-M3分别保留56%和74%的初始活性,表明酸稳定性进一步提升(图3B)。随后我们组合了来自策略2(B因子引导工程策略)的四个最有利突变,构建了B-M2(S295F/L297R)、B-M3(S295F/L297R/K23R)和B-M4(S295F/L297R/K23R/S296K)(表S4和图S3)。然而,所有B系列突变体表现出低于野生型酶的酸耐受性,在pH 5.5孵育1小时后保留不足40%的活性(图3B)。这些结果表明,组合各自有益的突变可能引入不利的上位相互作用[34,35],阻碍了对酸稳定性的预期加和效应,甚至可能排除协同增益。随后通过PyMOL[36]对B系列突变体进行氢键网络结构分析,为其酸稳定性降低提供了合理解释。在野生型酶中,S295与L297形成氢键,这可能有助于稳定局部环构象。然而在B-M2突变体(S295F/L297R)中,引入的Phe295和Arg297破坏了该原始氢键,可能降低周围环的构象稳定性,从而导致酸耐受性下降(图S4)。值得注意的是,所有B系列突变体均携带S295F/L297R组合,该组合一致导致酸稳定性降低。因此,我们不再将这两个突变再次组合,而是采用逐步方法,将单个有益B因子引导突变引入预先刚性化的C-M3模板中,该模板先前已证明通过表面电荷替换(K138E/K298E/K300E)增强酸耐受性。基于上述结构分析,我们选择C-M3作为第二轮工程的模板。将其与策略2中最有前景的突变(S295F、S296K、L297R、S299K和K23R;图3A)组合,构建了五个变体:M4-A、M4-B、M4-C、M4-D和M4-E(突变列于表S4)。在pH 4.5孵育1小时后,M4-B、M4-C和M4-E分别保留56%、64%和58%的活性,超过C-M3(55%;图3C)。相比之下,M4-A和M4-D在pH 5.5孵育1小时后的残余活性均低于C-M3(图S5)。由于每个M4变体与C-M3仅差一个B因子引导替换,该系列可作为在预稳定电荷背景中单个残基贡献的功能解剖。这些替换的背景依赖性效应,特别是M4-A和M4-D稳定性降低,表明每个突变必须在其背景中评估;完整的残基水平解释将需要靶向回突变和结构研究。第三轮中,我们进一步组合了前一步鉴定的突变。具体而言,我们将M4-B和M4-C的有益替换合并生成M5,将M4-B和M4-E的有益替换合并生成M5-B(表S4)。在pH 4.5孵育1小时后,M5和M5-B分别保留67%和64%的初始活性,表明酸稳定性进一步提升(图3C)。为进一步探究为何将B因子突变逐步引入C-M3支架比直接组合更成功,对M5和M5-B的氢键网络进行了分析。结构分析表明,在B-M2中失稳的同一环区域内形成了补偿性氢键相互作用。具体而言,在M5中,R297与S299和K296形成新的氢键,而在M5-B中,E298与K296和E300形成氢键(图S4)。这些新形成的相互作用可能增加局部结构刚性,部分补偿原始S295–L297氢键的丧失,从而有助于改善酸耐受性……
【数据】第一轮:C-M2(K138E/K298E)pH 5.5/1h残余活性56%;C-M3(K138E/K298E/K300E)74%;B-M2(S295F/L297R)、B-M3(S295F/L297R/K23R)、B-M4(S295F/L297R/K23R/S296K)均<40%;第二轮:M4-A、M4-B、M4-C、M4-D、M4-E;pH 4.5/1h残余活性:M4-B 56%、M4-C 64%、M4-E 58%、C-M3 55%;M4-A和M4-D在pH 5.5/1h低于C-M3;第三轮:M5(M4-B+M4-C合并)、M5-B(M4-B+M4-E合并);pH 4.5/1h残余活性:M5 67%、M5-B 64%;氢键:M5中R297与S299和K296形成新氢键;M5-B中E298与K296和E300形成氢键
2.4 组合突变体的结构与机制分析
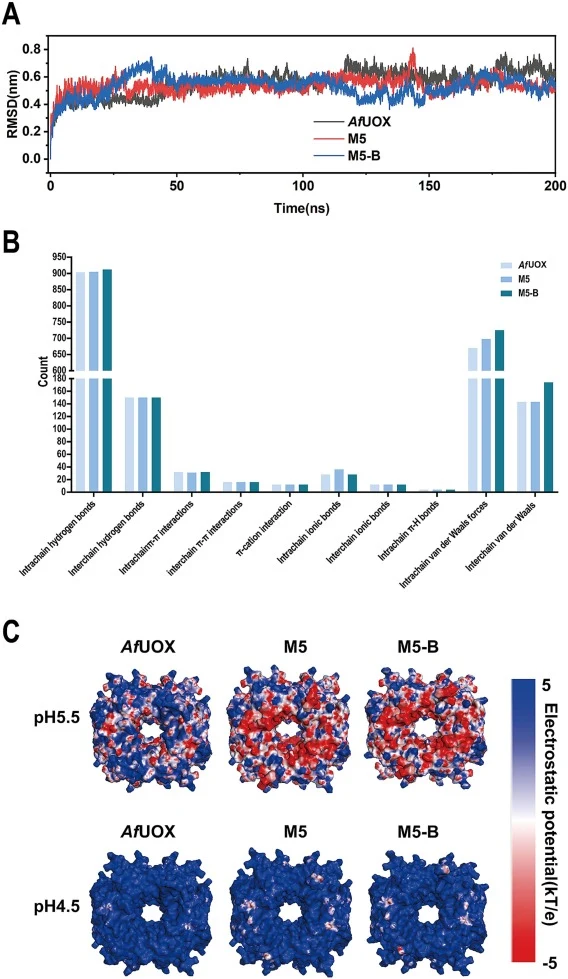
为解析M5和M5-B酸稳定性增强的分子机制,我们进行了分子动力学(MD)模拟、残基相互作用网络分析和静电计算。在303.15 K、pH 4.5条件下,AfUOX、M5和M5-B的RMSD值如图4A所示。M5和M5-B在平衡阶段的RMSD均低于野生型AfUOX,表明突变体整体结构波动减小、构象更加稳定。残基相互作用分析(图4B)显示,M5和M5-B中链内和链间范德华相互作用网络均得到增强。APBS计算的分子表面静电势(图4C)表明,表面电荷替换(K138E、K298E、K300E)降低了酸性条件下蛋白质表面普遍存在的正电势,有助于减轻静电排斥驱动的构象变化。酶-底物相互作用分析(图5A–C)显示,与野生型AfUOX(图5A)相比,M5(图5B)和M5-B(图5C)中底物尿酸与活性位点残基的相互作用模式发生改变,底物通道结构发生重排,可能有助于改善底物结合。SEC-MALS显示pH 4.5胁迫后四聚体完整性得以保持,远紫外CD揭示突变体的酸诱导二级结构变化小于WT(图3G-I),MD模拟显示平衡阶段RMSD更低(图4A和图S9)。
【数据】MD模拟温度:303.15 K;pH:4.5;RMSD:M5和M5-B低于野生型;相互作用:M5和M5-B范德华网络增强;静电计算:APBS;表面电荷替换:K138E、K298E、K300E;SEC-MALS:pH 4.5胁迫后四聚体完整性保持;CD:突变体二级结构变化小于WT;底物:尿酸
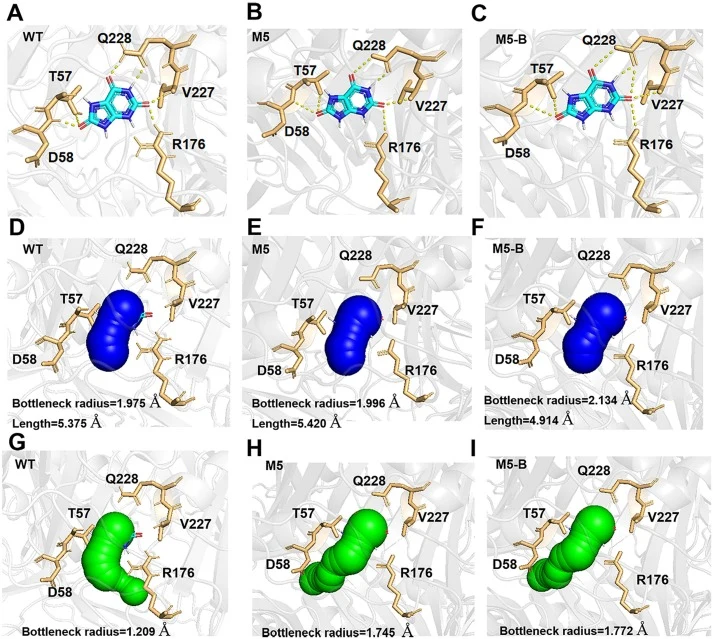
2.5 动力学参数与催化效率
为评估组合突变体催化性能的改善,我们测定了野生型AfUOX、M5和M5-B的动力学参数。在0.005–0.40 mM底物浓度范围内、30 °C、pH 8.0条件下测定反应速率,通过非线性回归拟合至Michaelis–Menten方程获得Kₘ和Vₘₐₓ,并计算k cat和k cat/Kₘ。结果表明,M5和M5-B的催化效率较野生型有所提升,与其增强的比活性一致。具体动力学参数值见原文相关表格。
【数据】底物浓度范围:0.005–0.40 mM;温度:30 °C;pH:8.0;拟合模型:Michaelis–Menten;参数:Kₘ、Vₘₐₓ、k cat、k cat/Kₘ;具体数值:原文未详述
讨论与解读
本研究通过整合表面电荷优化与B因子引导构象调控的理性设计策略,获得了两个酸稳定性与催化效率均增强的黄曲霉尿酸氧化酶变体M5和M5-B。与以往侧重外部保护、单残基修饰或其他稳定性性状的方法[41–43]不同,该策略通过调控两个结构特征——四聚体水平的表面电荷分布和局部构象柔性——来提升AfUOX的内在酸耐受性。尽管这些原理在蛋白质工程中已有各自探索,但将其整合应用于尿酸酶酸耐受性研究鲜有报道。该策略展示了协同静电工程与构象工程改善寡聚酶酸适应性的途径。
在分子层面,表面电荷替换(K138E、K298E、K300E)降低了酸性条件下蛋白质表面普遍存在的正电势(图4C),而增强的链内和链间范德华网络增加了构象刚性(图4B)。与这些效应一致,SEC-MALS显示pH 4.5胁迫后四聚体完整性得以保持,远紫外CD揭示突变体的酸诱导二级结构变化小于WT(图3G-I),MD模拟显示平衡阶段RMSD更低(图4A和图S9)。
编译者解读:该研究的方法学价值在于将表面电荷工程与B因子引导的刚性化策略进行迭代组合,而非简单叠加——B系列突变体因上位效应失稳的教训说明,有益突变的组合并非线性加和。M5和M5-B在pH 4.5下60分钟保留67%和64%活性、远超野生型25%的数据令人印象深刻。但需注意,研究仅在体外缓冲体系中验证,未涉及体内半衰期或免疫原性评估;此外,组合突变体在pH 3.5极端酸性下的表现仍接近检测限,距临床胃酸环境(pH 1–2)尚有距离。后续若能将此类变体与聚乙二醇化或递送系统结合,或可进一步拓展其治疗窗口。
参考来源
期刊:International Journal of Biological Macromolecules, 2026
DOI: 10.1016/j.ijbiomac.2026.154168
DOI: 10.1016/j.ijbiomac.2026.154168