来源:Systematic enzyme and cofactor engineering for efficient ursolic acid biosynthesis in Yarrowia lipolytica(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
熊果酸是一种具有抗炎、抗氧化、抗癌等多种药理活性的五环三萜类化合物,但微生物合成受限于细胞色素P450催化效率低和辅因子供给不足。本研究以高产α-香树脂醇的解脂耶氏酵母为底盘,通过筛选异源P450酶、构建融合蛋白、结构导向突变、强化FAD/血红素/铁辅因子供给及多拷贝整合等系统策略,在5 L补料分批发酵中实现813 ± 24 mg/L熊果酸产量,为目前解脂耶氏酵母中报道的最高滴度。
研究背景
熊果酸广泛分布于药用植物中,具有抗炎、抗氧化、抗菌、抗癌、抗糖尿病和保肝等多种药理活性,被视为具有重要制药和营养保健品潜力的高价值化合物。它还可作为其他高价值三萜类化合物的合成前体和结构骨架。目前熊果酸主要依赖植物提取,但该方法产率低、能耗高、受季节影响且难以规模化,无法满足日益增长的工业需求。代谢工程与合成生物学的进展使微生物细胞工厂成为三萜类生物合成的有前景平台。熊果酸生物合成路径为:角鲨烯经角鲨烯环氧化酶催化生成2,3-氧化角鲨烯,再由氧化角鲨烯环化酶环化生成α-香树脂醇,最后经植物细胞色素P450单加氧酶催化C-28氧化生成熊果酸。然而,P450酶催化效率低和辅因子供给不足是制约微生物熊果酸产量的关键瓶颈。
研究方法
2.1 菌株与培养基
本研究以高产α-香树脂醇的解脂耶氏酵母PO1f作为主要宿主。质粒构建与扩增在大肠杆菌JM109中进行,使用含10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl和100 μg/mL氨苄青霉素的LB培养基,于37 °C培养16 h。感受态大肠杆菌细胞使用商业试剂盒(TaKaRa Bio Inc.,日本大阪)制备。解脂耶氏酵母在酵母蛋白胨葡萄糖(YPD)培养基中培养,组成为10 g/L酵母提取物、20 g/L蛋白胨和20 g/L葡萄糖,于30 °C、220 rpm振荡培养。酵母转化时,工程细胞涂布于含6.74 g/L YNB、20 g/L葡萄糖和5 g/L亮氨酸的酵母氮源(YNB)培养基上筛选转化子。
【数据】菌株:解脂耶氏酵母PO1f、大肠杆菌JM109;培养基:LB(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl、100 μg/mL氨苄青霉素)、YPD(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖)、YNB(6.74 g/L YNB、20 g/L葡萄糖、5 g/L亮氨酸);温度:37 °C(大肠杆菌)、30 °C(酵母);时间:16 h(大肠杆菌)、振荡220 rpm(酵母)
2.2 质粒构建与酵母转化
菌株和引物的详细信息列于表S3、S4、S5。来自长春花的香树脂醇合成酶CrMAS(GenBank: JN991165)、来自蒺藜苜蓿的MtCYP716A12(GenBank: FN995112)、来自积雪草的CaCYP716A83(GenBank: KU878849)、来自长春花的CrCYP716AL1(GenBank: JN565975)、来自油橄榄的OeCYP716A48(GenBank: AB706294.1)以及来自拟南芥的AtCPR1(GenBank: BT008426.1)经密码子优化后由GENEWIZ生物技术有限公司(中国苏州)合成。合成基因的DNA序列列于表S7。天然基因使用表S2中列出的解脂耶氏酵母基因组构建。所有质粒构建均使用Gibson组装试剂盒(生工生物工程股份有限公司,中国上海)[26],以质粒pYLXP'1为模板。所有组装质粒均经Sanger测序确认,所用引物由生工生物工程股份有限公司(中国上海)合成。酵母转化使用Frozen-EZ Yeast Transformation II试剂盒(Zymo Research,美国加州)进行,细胞涂布于YNB琼脂上,30 °C培养2–4天。转化子通过基因组DNA PCR确认,随后进行测序。对于26S核糖体DNA(rDNA)位点的多拷贝整合,阳性转化子在尿嘧啶缺陷型YNB平板上培养,随后如前所述[27]进行URA3筛选标记的消除。向导RNA使用CHOPCHOP网站设计。所用整合位点在解脂耶氏酵母中为非必需位点[28]。α-香树脂醇和熊果酸标准品购自麦克林(中国上海)。
【数据】基因来源:CrMAS(长春花,JN991165)、MtCYP716A12(蒺藜苜蓿,FN995112)、CaCYP716A83(积雪草,KU878849)、CrCYP716AL1(长春花,JN565975)、OeCYP716A48(油橄榄,AB706294.1)、AtCPR1(拟南芥,BT008426.1);质粒模板:pYLXP'1;培养温度:30 °C;培养时间:2–4天;试剂盒:Gibson组装试剂盒、Frozen-EZ Yeast Transformation II试剂盒
2.3 工程酵母的摇瓶与生物反应器发酵
挑取工程解脂耶氏酵母单菌落接种于YPD培养基,于30 °C、250 rpm培养24 h。随后将1 mL各培养物转接至250 mL摇瓶中的24 mL新鲜YPD中,在相同条件下培养。培养五天后收获。为增强香树脂醇产量,工程菌株在5 L生物反应器中进行补料分批发酵。种子培养通过将单菌落接种至10 mL YPD中,于30 °C、220 rpm培养24 h,随后转接至200 mL YPD中再培养24 h。所得培养物用于接种生物反应器中的2.2 L YPD。发酵在28 °C下进行,使用氨水维持pH 5.5,通过搅拌级联(300–900 rpm)和3.0 vvm通气速率将溶解氧控制在25%。初始葡萄糖浓度为40 g/L,间歇补加浓缩葡萄糖溶液(500 g/L)以维持残余水平低于1 g/L。初始葡萄糖耗尽后,以5–15 mL h⁻¹的速率开始补料分批喂养营养液(100 g/L (NH4)2SO4、35 g/L KH2PO4、5 g/L MgSO4·7H2O)。
【数据】种子培养:30 °C、250 rpm、24 h(摇瓶)、220 rpm、24 h(生物反应器种子);发酵温度:28 °C;pH:5.5(氨水调节);溶解氧:25%;搅拌:300–900 rpm;通气:3.0 vvm;初始葡萄糖:40 g/L;补料葡萄糖:500 g/L;残糖:<1 g/L;营养液:100 g/L (NH4)2SO4、35 g/L KH2PO4、5 g/L MgSO4·7H2O;补料速率:5–15 mL h⁻¹;发酵体积:2.2 L
2.4 分析方法
对于α-香树脂醇分析,将1 mL解脂耶氏酵母培养液转入2 mL研磨管(MP)中,12,000 rpm离心10 min。弃去上清液,将细胞沉淀与等体积0.5 mm玻璃珠混合,重悬于1 mL甲醇中。使用FastPrep仪器进行细胞破碎,四个循环(6.0 m/s,每循环40 s)。裂解后,样品再次以12,000 rpm离心10 min,上清液经0.22 μm膜过滤后进行气相色谱-质谱(GC–MS)分析。对于熊果酸提取,使用乙醇代替甲醇,按相同步骤操作。所得提取物经0.22 μm膜过滤后用高效液相色谱(HPLC)分析。α-香树脂醇使用岛津QP2010 GC-MS(日本京都)分析,配备RTX-5毛细管柱(30 m × 0.25 mm × 0.25 μm)。柱温以20 °C/min升至280 °C,再以40 °C/min升至300 °C并保持10 min。氦气(1.0 mL/min)作为载气,进样1 μL样品。质谱扫描范围35–500 m/z [29]。熊果酸使用HPLC在C18柱(4.6 × 150 mm,5 μm;Thermo Fisher,中国上海)上检测,紫外检测波长210 nm,柱温40 °C。流动相由超纯水、乙腈和甲醇按21:67:12(v/v/v)比例组成[29]。
【数据】离心:12,000 rpm、10 min;玻璃珠:0.5 mm;破碎:6.0 m/s、40 s × 4循环;过滤膜:0.22 μm;GC-MS柱温:20 °C/min至280 °C,40 °C/min至300 °C保持10 min;载气:氦气1.0 mL/min;进样量:1 μL;质谱扫描:35–500 m/z;HPLC:C18柱(4.6 × 150 mm,5 μm)、UV 210 nm、柱温40 °C;流动相:水:乙腈:甲醇=21:67:12(v/v/v)
2.5 序列检索与多序列比对
从GenBank数据库检索代表性植物物种的CYP716A细胞色素P450氨基酸序列(表S1)。使用CLUSTAL Omega以默认参数进行多序列比对。使用Jalview分析序列保守性和比对可视化,其中保守性评分基于比对序列间的氨基酸一致性和理化相似性计算(图S9和S10)。
【数据】数据库:GenBank;工具:CLUSTAL Omega(默认参数)、Jalview;分析内容:氨基酸一致性和理化相似性
2.6 分子对接
CYP716A48的三维结构从AlphaFold蛋白质结构数据库检索(UniProt ID: A0A090AQE0),平均pLDDT评分> 90.19。pLDDT(预测局部距离差异测试)评分提供0到100的逐残基置信度估计,值越高表示预测原子位置的可靠性越高。使用MolProbity服务器(http://molprobity.biochem.duke.edu)验证所得模型结构的立体化学质量,该服务器评估三维结构并检查预测模型的质量。α-香树脂醇(CID:73170)的三维结构从PubChem(https://pubchem.ncbi.nlm.nih.gov)以sdf格式下载。使用AutoDock Vina 1.2.0 [30]按照标准对接方案进行配体与蛋白质的分子对接,以预测配体-蛋白质相互作用。所得蛋白质-配体复合物基于计算的结合能进行评估,使用PyMOL 3.1分子图形系统进行可视化和分析,配体5 Å范围内的残基被纳入相互作用分析。
【数据】数据库:AlphaFold(UniProt ID: A0A090AQE0)、PubChem(CID:73170);pLDDT评分:>90.19;对接软件:AutoDock Vina 1.2.0;验证工具:MolProbity;可视化:PyMOL 3.1;相互作用距离:5 Å
2.7 计算隧道工程分析
作为细胞色素P450单加氧酶,血红素辅因子对CYP716A48催化活性至关重要,使用AlphaFill将其引入,该方法通过局部结构比对将同源晶体结构中实验解析的配体转移到预测蛋白质模型中。使用同源细胞色素P450晶体结构(PDB ID:2VE3)作为结构模板,与CYP716A48显示46.15%的序列相似性,移植的血红素基团达到3.08 Å的局部RMSD,表明空间定位可靠。使用PyMOL进行视觉检查,确认卟啉环在保守P450血红素结合口袋内的正确取向以及经典P450基序的保留,包括特征性Cys配体结合区域。隧道分析使用CAVER 3.0(PyMOL插件)在恒定参数下对野生型和工程CYP716A48变体进行:最小探针半径0.9 Å、壳深度4 Å、壳半径3 Å、聚类阈值3.5 Å、最大距离3 Å、期望半径5 Å。
【数据】血红素移植工具:AlphaFill;模板:PDB ID 2VE3;序列相似性:46.15%;局部RMSD:3.08 Å;隧道分析软件:CAVER 3.0;参数:最小探针半径0.9 Å、壳深度4 Å、壳半径3 Å、聚类阈值3.5 Å、最大距离3 Å、期望半径5 Å
研究结果
3.1 熊果酸生产用异源P450候选酶的筛选
为在解脂耶氏酵母中建立熊果酸生物合成,我们使用实验室保藏菌株YU-0,其在摇瓶条件下产生197 ± 6 mg/L的α-香树脂醇(图S1,表S5)。将四种植物细胞色素P450单加氧酶MtCYP716A12、CrCYP716AL1、CaCYP716A83和OeCYP716A48分别整合到工程亲本菌株YU-0中,并与AtCPR1共表达,生成四个重组菌株分别命名为YU-1至YU-4。HPLC–UV和LC–Q-TOF/MS分析确认所有工程菌株中熊果酸生物合成成功(图S2、S3、S4、S6)。其中,菌株YU-4表现最佳,产生13 ± 1 mg/L熊果酸,而α-香树脂醇滴度降至175 ± 7 mg/L(图2B,S8)。OeCYP716A48在所评估的P450变体中表现出优越的催化效率并产生最高熊果酸滴度,因此被选用于后续优化研究。为增强OeCYP716A48在解脂耶氏酵母中的催化效率,我们通过使用不同长度和柔性的肽连接子将OeCYP716A48与其氧化还原伴侣AtCPR1连接,构建了一系列融合酶(图2A)。所得变体在菌株YU-0中表达并评估熊果酸产量。熊果酸产量在融合构建体之间差异显著(图2C–S8)。在所测试的连接子中,柔性(GGGGS)2连接子表现最佳,产生最高熊果酸滴度25 ± 2 mg/L,而YU-6菌株中α-香树脂醇滴度降至147 ± 4 mg/L,相对于YU-4菌株增加约92%。然而,熊果酸滴度仍然相对较低,表明需要额外的代谢和蛋白质工程策略来进一步提高酶性能。
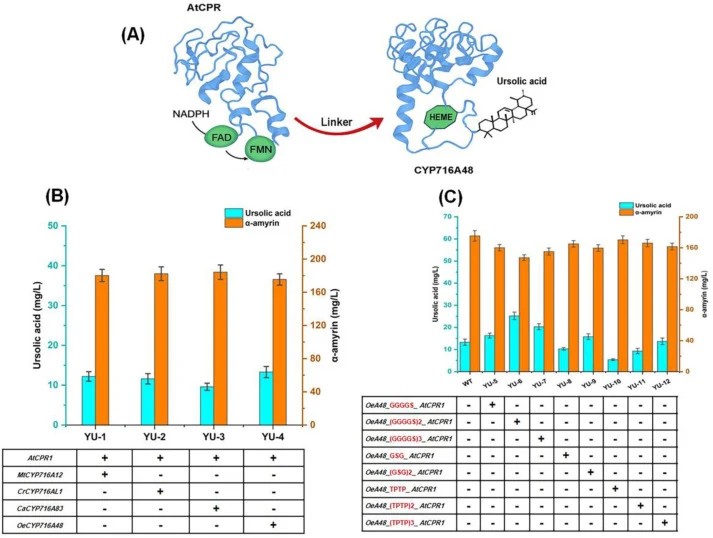
【数据】菌株:YU-0(α-香树脂醇197 ± 6 mg/L)、YU-1至YU-4、YU-6;YU-4熊果酸:13 ± 1 mg/L;YU-4 α-香树脂醇:175 ± 7 mg/L;YU-6熊果酸:25 ± 2 mg/L;YU-6 α-香树脂醇:147 ± 4 mg/L;相对提升:约92%;连接子:(GGGGS)2
3.2 工程化OeCYP716A48增强熊果酸生物合成
对来自不同植物物种的CYP716A同源物进行多序列比对,以鉴定具有潜在功能相关性的残基(表S1)。分析揭示核心催化区域如血红素结合半胱氨酸环具有强保守性,而底物识别位点(SRSs)和表面暴露区域表现出更高的变异性(图S10–S11)。这些可变位置被认为是蛋白质工程的潜在靶点。在所分析的同源物中,OeCYP716A48与CrCYP716AL1显示最高序列相似性(83.92%),表明密切的进化关系(图S9)。为确定底物相互作用,将α-香树脂醇对接到OeCYP716A48活性位点。底物占据主要为疏水性的口袋,残基A107、W108、W109、V113、D114、F117、S120、T123、S124、S125、E128、L211、D281、K282、G285、L286、V288、G289和R424位于5 Å范围内(图3A)。将对接结果与保守性分析整合发现,包括W108、W109、F117、E128、G285、G289和R424在内的多个残基完全保守,表明在催化或结构完整性中起关键作用,突变可能破坏酶功能。表现出高保守性的残基A107、D281、K282、L286、V288、S124和S125有助于底物识别和结构稳定性,可能耐受细微修饰。相比之下,具有中等保守性的残基包括D114、S120、T123和L211,显示部分变异性,表明参与底物结合同时保持足够的灵活性以进行功能测试。为评估所选残基的功能作用,进行了丙氨酸扫描突变,所得变体与AtCPR1在YU-0菌株中共表达。在所测试的突变体中,D114A和L211A对熊果酸产量表现出最显著的影响(图4A和B)。D114A变体产生27 ± 2 mg/L熊果酸,与野生型相比增加2倍,α-香树脂醇降至148 ± 4 mg/L。类似地,L211A产生28 ± 2 mg/L熊果酸(增加2.2倍),α-香树脂醇降至145 ± 5 mg/L。基于这些结果,对残基D114和L211进行位点饱和突变。在所得变体中(图4E、F、S7),D114Q表现出最大改善,产生45 ± 3 mg/L熊果酸(增加3.5倍),α-香树脂醇降至130 ± 3 mg/L。L211F变体产生37 ± 2 mg/L熊果酸(增加2.8倍),α-香树脂醇为139 ± 5 mg/L。为进一步增强催化性能,将有益突变组合(图4C和D)。双突变体D114Q/L211F产生66 ± 3 mg/L熊果酸,与野生型相比增加5倍,α-香树脂醇降至109 ± 3 mg/L。使用Caver分析OeCYP716A48的底物进入隧道,以评估D114Q/L211F双突变对底物可及性的影响。与野生型酶相比,D114Q/L211F变体的隧道吞吐量从0.71增加到0.76,表明底物通过增强。同时,隧道成本从0.33降至0.27,表明底物扩散路径在能量上更有利。瓶颈半径从1.12 Å扩展到1.52 Å,反映更宽的收缩口可能更好地容纳大体积底物。此外,隧道长度从18.37 Å减少到16.87 Å,而曲率从1.14略微增加到1.25,表明通向活性位点的路径更短但略微更弯曲,可能促进底物进入(图3B和C)。总之,这些结构变化表明D114Q/L211F突变通过扩大隧道入口、降低空间和能量障碍以及促进底物对齐来改善底物可及性,这可能有助于观察到的酶活性增强。携带OeCYP716A48 D114Q/L211F的菌株YU-13被选用于进一步研究。
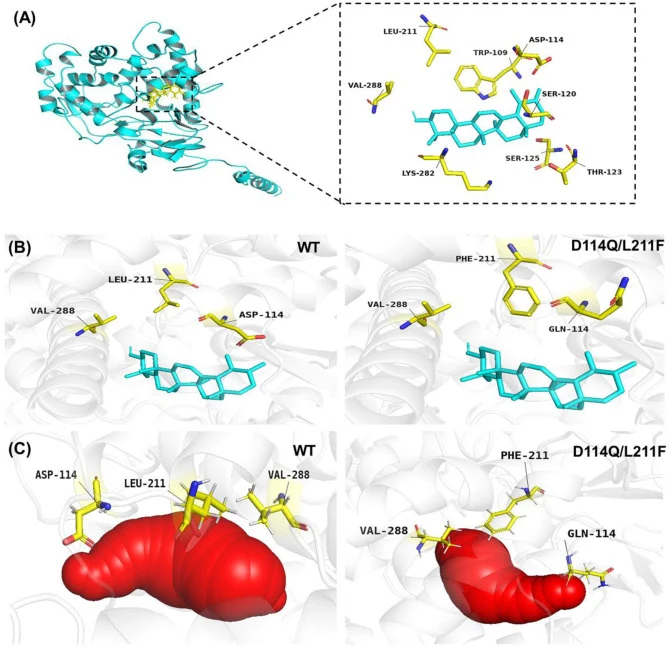
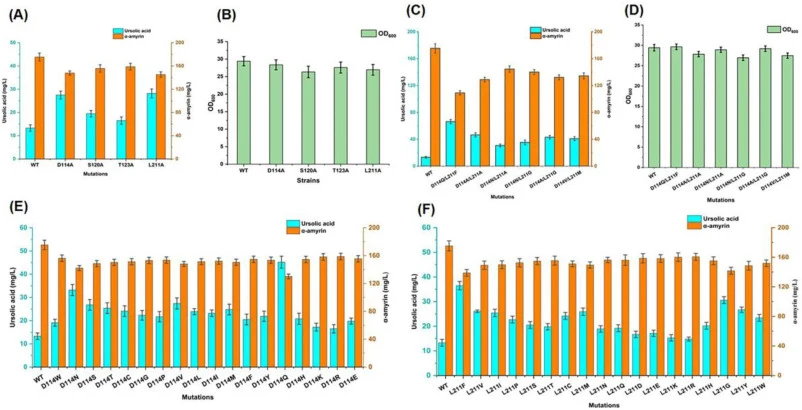
【数据】菌株:YU-0、YU-13;D114A熊果酸:27 ± 2 mg/L(2倍)、α-香树脂醇148 ± 4 mg/L;L211A熊果酸:28 ± 2 mg/L(2.2倍)、α-香树脂醇145 ± 5 mg/L;D114Q熊果酸:45 ± 3 mg/L(3.5倍)、α-香树脂醇130 ± 3 mg/L;L211F熊果酸:37 ± 2 mg/L(2.8倍)、α-香树脂醇139 ± 5 mg/L;D114Q/L211F熊果酸:66 ± 3 mg/L(5倍)、α-香树脂醇109 ± 3 mg/L;隧道吞吐量:0.71→0.76;隧道成本:0.33→0.27;瓶颈半径:1.12 Å→1.52 Å;隧道长度:18.37 Å→16.87 Å;曲率:1.14→1.25;序列相似性:OeCYP716A48与CrCYP716AL1为83.92%
3.3 工程化FAD生物合成途径增强OeCYP716A48活性
为提高OeCYP716A48的催化效率并增强解脂耶氏酵母中α-香树脂醇向熊果酸的转化,我们工程化了内源性核黄素–FAD生物合成途径以增加细胞内FAD(H)2可利用性。具体而言,系统过表达了参与黄素生物合成和转化的关键基因,包括RIB1、RIB2、RIB3和FMN1,以加强辅因子供给并支持OeCYP716A48依赖的氧化反应(图1E和5A、B)。过表达RIB1——编码核黄素生物合成中第一个关键酶——增强了前体向黄素辅因子的通量,将熊果酸产量提高至75 ± 2 mg/L,证实了YU-13菌株中的辅因子限制。随后共表达RIB2和RIB3——催化核黄素生物合成的下游步骤——进一步将熊果酸滴度提高至93 ± 3 mg/L,伴随α-香树脂醇积累的相应减少,表明底物转化更高效。最后,过表达FMN1和FAD1——负责将核黄素转化为FMN并支持FAD生物合成——进一步增强了胞质FAD(H)2供给,将熊果酸产量提高至110 ± 4 mg/L。总体而言,这些结果表明系统强化天然核黄素–FAD生物合成途径显著改善了工程菌株中P450催化性能和熊果酸生物合成。
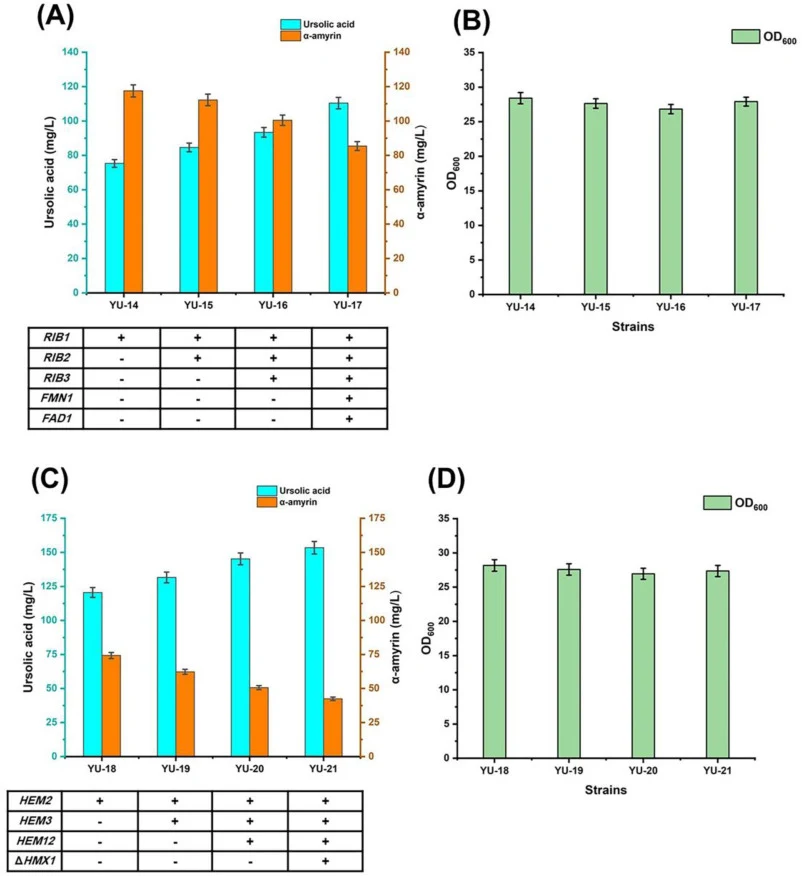
【数据】菌株:YU-13;RIB1过表达熊果酸:75 ± 2 mg/L;RIB2+RIB3共表达熊果酸:93 ± 3 mg/L;FMN1+FAD1过表达熊果酸:110 ± 4 mg/L;基因:RIB1、RIB2、RIB3、FMN1、FAD1
3.4 优化血红素供给和铁摄取系统改善OeCYP716A48活性
细胞色素P450酶的催化效率关键依赖于细胞内血红素可利用性,因为血红素作为酶活性位点的必需辅因子,在催化过程中实现氧活化和电子传递。血红素不足限制全酶形成,从而降低整体P450活性[31,32]。为增强OeCYP716A48介导的氧化并提高熊果酸产量,我们系统工程化了解脂耶氏酵母中的内源性血红素生物合成途径(图1D和5C、D)。过表达……
【数据】原文节选至此中断,后续内容未详述
讨论与解读
本研究以高产α-香树脂醇的解脂耶氏酵母底盘为起点,聚焦熊果酸生物合成的下游瓶颈。由于亲本菌株已积累大量α-香树脂醇,末端细胞色素P450依赖的氧化步骤成为限制熊果酸形成的主要瓶颈。筛选四种CYP716A单加氧酶后确定OeCYP716A48为最高效酶,但熊果酸产量仍低而α-香树脂醇积累,表明催化周转不足。这与微生物三萜生物合成中植物P450酶常因电子传递效率低、与CPR偶联差及辅因子可利用性有限而显示低活性的报道一致[6,10,12,18]。OeCYP716A48与AtCPR1的融合证实单加氧酶与其氧化还原伴侣的空间组织强烈影响催化性能,柔性(GGGGS)2连接子显著提高熊果酸产量,与先前报道P450–CPR融合增强电子传递效率并改善工程宿主中氧化反应的结论一致[15,17,19,36]。然而,适度改善表明酶的内在结构约束仍限制底物转化,需要进一步的蛋白质工程。OeCYP716A48的结构导向突变表明活性位点结构和底物进入几何……
编译者解读:该研究以“酶筛选—融合—结构导向突变—辅因子强化—多拷贝整合”的递进策略,系统解决了P450催化瓶颈。D114Q/L211F通过扩大隧道瓶颈半径(1.12→1.52 Å)提升底物可及性,而FAD/血红素/铁三层辅因子强化使产量从13 mg/L跃升至813 mg/L,展示了“酶+辅因子+通量”协同工程的威力。局限在于讨论部分对血红素途径的定量贡献着墨有限,且多拷贝整合的遗传稳定性未在节选中评估。
参考来源
期刊:Synthetic and Systems Biotechnology, 2027
DOI: 10.1016/j.synbio.2026.05.012
DOI: 10.1016/j.synbio.2026.05.012