来源:Replicon engineering-driven modular synthetic biology toolkit for efficiently iterative genome editing in Fusarium venenatum(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
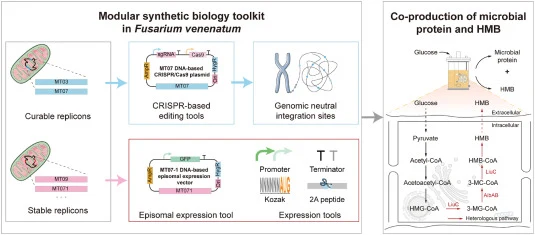
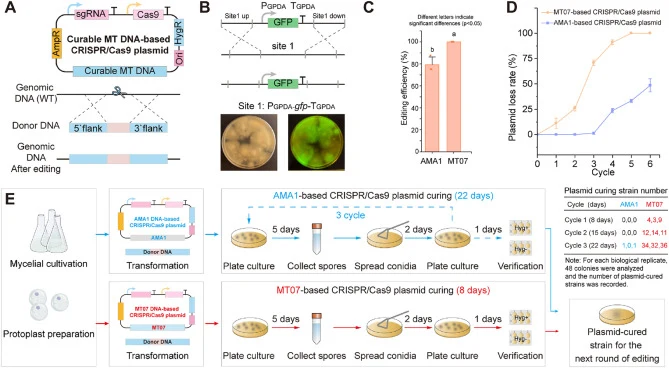
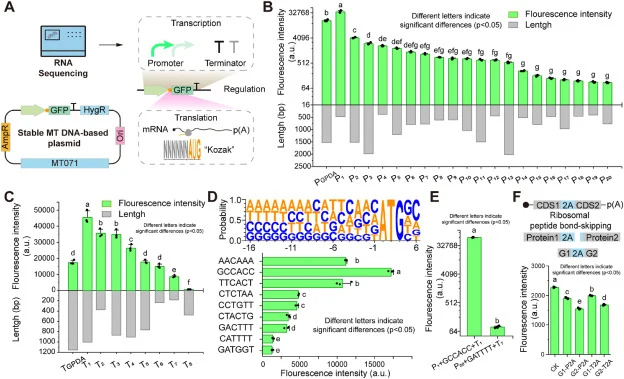
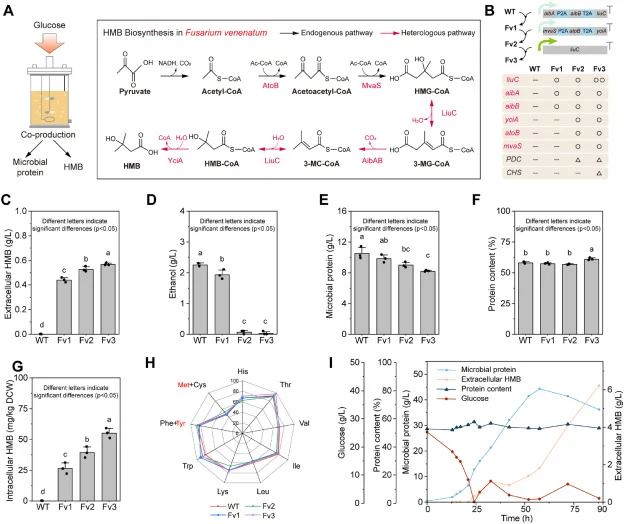
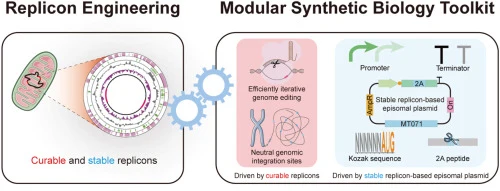
禾谷镰刀菌(Fusarium venenatum)是微生物蛋白生产中最广泛使用的丝状真菌,但迭代基因组编辑效率不足和基因表达精细调控工具的缺乏,长期限制了其菌株工程改造。本研究通过复制子工程建立了模块化合成生物学工具包:鉴定并获得稳定型与可治愈型线粒体DNA来源复制子,其中可治愈复制子MT07使CRISPR/Cas9系统的质粒治愈时间从22天缩短至8天;稳定复制子MT071则支撑了表观游离表达系统,表征了21个启动子、8个终止子、9个Kozak序列及2A肽多顺反子模块,基因表达动态范围达662.9倍。概念验证中,该工具包被用于构建HMB生物合成途径,实现微生物蛋白与HMB的共生产,产量分别达36.2 g/L和6.2 g/L。
研究背景
全球食品系统贡献了约34%的温室气体排放,人口增长与肉类消费上升持续加剧食品生产与自然资源压力。替代蛋白因此成为以更低环境代价满足蛋白需求的可行策略,部分替代动物源食品可减少超过80%的环境负担。在各类替代蛋白中,源自禾谷镰刀菌A3/5的微生物蛋白因营养品质高、资源利用效率好、可规模化、环境足迹相对较低,并已在多个国家和地区获得监管许可而尤为引人注目。尽管如此,目前使用的禾谷镰刀菌菌株大多仍为未经工程改造的分离株,在代谢能力、遗传可操作性和工业性能方面存在固有局限,亟需先进的基因编辑策略与合成生物学工具来释放其生物技术潜力。此前已有若干基因组编辑策略和合成生物学工具被开发用于禾谷镰刀菌,包括CRISPR/Cas9基因组编辑系统和中性基因组整合位点,为菌株工程奠定了基础。
研究方法
2.1 化学品与试剂
除非另有说明,所有化学品和试剂均购自生工生物工程(上海)股份有限公司。DNA凝胶纯化试剂盒购自Thermo Scientific(美国沃尔瑟姆)。PrimeSTAR HS DNA聚合酶购自宝日医生物技术(北京)有限公司。Taq Master Mix(Dye Plus)和Phanta Max Master Mix(Dye Plus)购自南京诺唯赞生物科技股份有限公司。Gibson组装试剂盒购自New England Biolabs(北京)。所有引物和密码子优化基因均由GENEWIZ(苏州)合成。蜗牛酶、纤维素酶和溶菌酶购自上海源叶生物科技有限公司。Miracloth购自北京索莱宝科技有限公司。所有用于定性和定量分析的分析参考标准品均购自上海阿拉丁生化科技股份有限公司。
【数据】试剂来源:生工生物(上海)、Thermo Scientific(沃尔瑟姆,美国)、Takara(北京)、Vazyme(南京)、NEB(北京)、GENEWIZ(苏州)、源叶生物(上海)、索莱宝(北京)、阿拉丁(上海);原文未详述具体浓度与用量
2.2 质粒与菌株
野生型禾谷镰刀菌A3/5(ATCC 20334)保藏于本实验室,作为本研究的亲本菌株。本研究构建的所有质粒列于补充表1。用于质粒和菌株构建的引物见补充表2。本研究构建的所有菌株列于补充表3。质粒构建在大肠杆菌JM109中使用无缝克隆试剂盒按制造商说明进行。
【数据】菌株:禾谷镰刀菌A3/5(ATCC 20334);宿主:大肠杆菌JM109;方法:无缝克隆;原文未详述具体试剂用量
2.3 菌株培养与生长条件
禾谷镰刀菌在30 °C下于马铃薯葡萄糖琼脂(PDA)平板或葡萄糖-酵母提取物肉汤(GYB)中培养,大肠杆菌则在37 °C下于LB琼脂平板或LB培养基中培养。转化和发酵过程中使用了多种培养基,所有培养基和试剂的详细组成见补充表4。
【数据】菌株:禾谷镰刀菌;温度:30°C;培养基:PDA、GYB;大肠杆菌温度:37°C;培养基:LB;原文未详述具体培养基配方
2.4 标准转化方案
菌株构建通过聚乙二醇(PEG)介导的原生质体转化进行,以促进CRISPR/Cas9系统高效递送至真菌原生质体。原生质体制备参照此前报道的方法并稍作修改。简言之,亲本菌株在PDA平板上于28 °C培养5天。此后,用无菌水冲洗平板收获分生孢子,经四层Miracloth过滤,并在光学显微镜下用血细胞计数板计数。随后,将500 μL分生孢子悬液(1 × 10⁵个分生孢子/mL)接种至YPD培养基中,于30 °C、220 rpm振荡培养18小时。所得菌丝体经四层Miracloth过滤收集,用0.8 M NaCl洗涤两次,然后进行酶解以制备原生质体。酶解使用含溶菌酶(5 mg/mL)、蜗牛酶(10 mg/mL)和纤维素酶(5 mg/mL)的0.8 M NaCl溶液,于30 °C、120 rpm振荡4小时。酶解后,原生质体经四层Miracloth过滤收获,并于3000×g离心10分钟收集。原生质体随后用STC缓冲液洗涤两次,最终重悬于适量STC缓冲液中。转化时,将100 μL原生质体悬液与25 μL SPTC溶液、10 μg供体DNA和5 μg CRISPR质粒轻柔混合,冰上孵育40分钟。随后加入1 mL SPTC溶液,于30 °C孵育30分钟,接着42 °C热激10分钟。然后加入10 mL预热的RM恢复培养基(42 °C),原生质体于30 °C、180 rpm振荡恢复12小时。取2.5 mL恢复培养物涂布于再生平板,并覆盖10 mL预热含潮霉素B(50 μg/mL)的GYA琼脂培养基。凝固后,平板于30 °C培养3-5天直至转化子出现。
【数据】菌株:禾谷镰刀菌A3/5;PDA培养温度:28°C;PDA培养时间:5天;分生孢子浓度:1×10⁵个/mL;分生孢子悬液体积:500 μL;YPD培养温度:30°C;转速:220 rpm;时间:18 h;洗涤液:0.8 M NaCl;溶菌酶:5 mg/mL;蜗牛酶:10 mg/mL;纤维素酶:5 mg/mL;酶解温度:30°C;酶解转速:120 rpm;酶解时间:4 h;离心力:3000×g;离心时间:10 min;原生质体用量:100 μL;SPTC用量:25 μL;供体DNA:10 μg;CRISPR质粒:5 μg;冰上孵育:40 min;30°C孵育:30 min;热激:42°C、10 min;RM恢复培养基:10 mL、42°C;恢复条件:30°C、180 rpm、12 h;涂布体积:2.5 mL;GYA覆盖:10 mL;潮霉素B:50 μg/mL;培养:30°C、3-5天
2.5 流式细胞术分析与显微镜成像
分生孢子的流式细胞术分析参照此前描述的方法并稍作修改。简言之,菌株在PDA琼脂平板上培养5天以产生足量分生孢子。随后用适量无菌水冲洗琼脂表面收获分生孢子,经四层Miracloth过滤去除菌丝碎片。然后将分生孢子重悬至OD₆₀₀为0.2,使用BD FACSAria III流式细胞仪和BD FACSDiva软件(BD Biosciences)进行分析。绿色荧光以480 nm激发、525 nm发射进行检测。每个样品至少采集8000个事件,使用FlowJo_v10软件基于前向和侧向散射参数设门以减少假阳性信号(补充图1)。禾谷镰刀菌的菌丝形态和GFP荧光使用配备荧光照明器的显微镜相机系统(DS-Ri2,Nikon,日本东京)观察。
【数据】PDA培养时间:5天;OD₆₀₀:0.2;激发波长:480 nm;发射波长:525 nm;采集事件数:≥8000;仪器:BD FACSAria III、DS-Ri2(Nikon);软件:BD FACSDiva、FlowJo_v10
2.6 质粒拷贝数测定
质粒拷贝数通过基于此前报道方法并稍作修改的实时定量PCR(qPCR)测定。使用Rapid Fungi Genomic DNA Isolation Kit(B518229,生工生物,上海)按制造商说明从丝状真菌中提取总DNA(包括核基因组DNA和线粒体DNA),作为qPCR分析的模板。以在位点1整合了单拷贝GFP表达盒的菌株作为质粒拷贝数测定的参考菌株。内源性tef基因用作qPCR归一化的内参。qPCR在Applied Biosystem QuantStudio™3(Thermo Fisher)上进行。参考基因和靶基因的引物序列见补充表5。质粒拷贝数使用以下公式计算(1c):(1a)ΔCt = Ct(靶标) − Ct(参考);(1b)ΔΔCt = ΔCt(实验组) − ΔCt(对照组);(1c)质粒拷贝数 = 2^(−ΔΔCt)。其中Ct表示阈值循环值,ΔCt和ΔΔCt表示相应的归一化值,Exp和CK分别表示实验组和对照组。
【数据】试剂盒:Rapid Fungi Genomic DNA Isolation Kit(B518229);参考菌株:位点1单拷贝GFP整合株;内参基因:tef;仪器:QuantStudio™3;公式:拷贝数=2^(−ΔΔCt);原文未详述qPCR具体参数
2.7 复制子序列特征分析
使用MEME Suite v5.5.9鉴定复制子片段间的保守序列基序。基序发现采用每序列零次或一次出现(ZOOPS)模型,搜索两条DNA链。鉴定最多三个宽度为6至50 bp的基序,基序位点最小和最大数量分别设为2和4。使用MEME Suite中的FIMO筛选复制子序列中潜在的ARS样位点。来自酿酒酵母的11 bp ARS共有序列(ACS;WTTTAYRTTTW)和17 bp延伸ARS共有序列(EACS;WWWWTTTAYRTTTWGTT)用作序列扫描的查询基序。使用Tandem Repeats Finder(TRF)分析复制子片段内的短串联重复序列。匹配、错配和插入缺失参数分别设为2、7和7。报告最小比对分数为50的重复,最大重复周期大小和串联重复阵列大小分别设为500 bp和2 Mb。使用Deep DNAshape预测关键复制子序列的DNA结构特征。分析序列依赖性DNA形状参数,包括小沟宽度(MGW)、螺旋桨扭转(ProT)、卷曲(roll)和螺旋扭转(HelT),以表征可能与复制子功能相关的局部结构特征。
【数据】软件:MEME Suite v5.5.9、FIMO、TRF、Deep DNAshape;基序宽度:6-50 bp;基序数量:≤3;基序位点数:2-4;ACS序列:WTTTAYRTTTW(11 bp);EACS序列:WWWWTTTAYRTTTWGTT(17 bp);TRF参数:匹配2、错配7、插入缺失7;最小比对分数:50;最大重复周期:500 bp;最大阵列:2 Mb;DNA形状参数:MGW、ProT、roll、HelT
2.8 基因组编辑与编辑效率分析
pFC332表达质粒和供体DNA片段按此前描述构建。简言之,sgRNA靶位点使用CHOPCHOP设计。
【数据】质粒:pFC332;sgRNA设计工具:CHOPCHOP;原文未详述具体编辑效率参数
研究结果
3.1 稳定型和可治愈型线粒体基因组来源复制子的开发
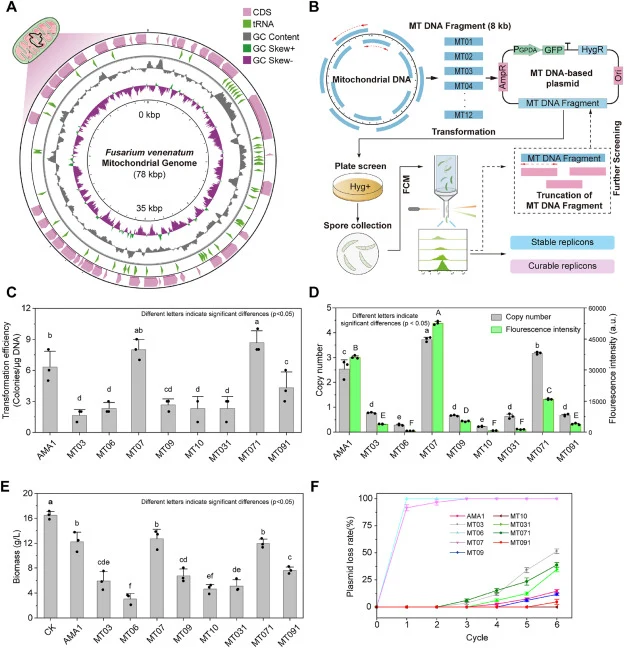
通过Proksee注释和可视化确定,禾谷镰刀菌线粒体基因组包含62个tRNA编码基因、25个与线粒体呼吸链复合物和ATP合酶相关的基因,以及若干编码假定蛋白的基因(补充表7)(图2A)。为鉴定禾谷镰刀菌中线粒体DNA来源的复制子,建立了系统性筛选流程(图2B)。基于线粒体基因组注释,通过PCR扩增了12个线粒体DNA片段(每个约8 kb;MT01-MT12),分别克隆至绿色荧光蛋白(GFP)表达质粒,随后转化至禾谷镰刀菌。然后基于潮霉素抗性、传代培养中的质粒维持以及流式细胞术GFP荧光分析对候选复制子进行初步筛选,同时通过迭代筛选对候选序列进一步截短和重新评估。这些候选复制子的核苷酸序列见补充表8。在初始构建体中,五个线粒体DNA片段(MT03、MT06、MT07、MT09和MT10)支持质粒在禾谷镰刀菌中自主复制。随后的片段最小化产生了三个截短衍生物(MT031、MT071和MT091),它们同样保留了复制活性(补充图3A)。这些结果表明禾谷镰刀菌线粒体基因组可能含有多个功能性复制起点。为进一步表征这些线粒体来源复制子,检查了荧光定位。与基因组整合型和AMA1型游离GFP表达系统相比,线粒体来源复制子系统表现出相似的荧光分布模式,GFP信号均匀分布于菌丝和原生质体中,而非局限于线粒体(补充图3B和3C)。不同线粒体来源复制子的转化效率差异显著。MT071表现出最高的数值转化效率(8.7个菌落/μg DNA),尽管其与MT07的差异无统计学意义。值得注意的是,基于MT071的载体转化效率显著高于基于AMA1的载体(6.3个菌落/μg DNA)(图2C)。此外,评估了线粒体来源复制子介导的质粒拷贝数和GFP表达强度。观察到质粒拷贝数与孢子荧光强度之间呈正相关。基于MT07的质粒荧光强度显著高于基于AMA1的质粒,对应拷贝数分别为3.72和2.53。尽管截短衍生物MT071仍具功能,但其质粒拷贝数和荧光强度相对于MT07均显著降低(图2D)。有趣的是,所有其他线粒体来源复制子质粒的拷贝数均低于1。此现象可能归因于丝状真菌的多细胞特性及其沿菌丝运输资源的能力,使部分细胞可通过与携带质粒的细胞共享资源而存活(补充图4A和4B)。为研究复制子质粒对菌株生长的影响,将携带不同复制子质粒的菌株在含潮霉素的液体YPD培养基中培养。在抗生素选择压力下,生物量产量普遍低于未添加潮霉素培养的对照菌株。在测试的复制子中,MT07支持较高的生物量生产,达到约12.7 g/L,尽管其生物量浓度与AMA1和MT071相当。相比之下,MT06表现出最低的生物量浓度,约为2.1 g/L(图2E)。此外,按照补充图5所示流程评估了线粒体来源复制子的稳定性。连续传代培养揭示了复制子间不同的稳定性特征。MT10在连续五次传代中未检测到质粒丢失,而MT091仅在第四次传代后出现质粒丢失。相比之下,MT06和MT07在第一次传代后即出现部分质粒丢失。值得注意的是,截短衍生物MT071相对于MT07表现出改善的稳定性,仅在第三次传代后出现质粒丢失(图2F)。与MT07相比,MT071保留了位于rrnL和cox1相关区域之间的线粒体DNA片段,该区域表现出明显的局部GC含量变化。非编码侧翼区域可能含有易重组序列、异常DNA结构特征或促进复制起始的元件,这可能贡献了MT07相对较高的拷贝数但较低的稳定性。相比之下,截短可能简化了质粒结构并降低了重组、DNA断裂或异常复制的可能性,从而有利于MT071中更稳定的质粒维持(补充图6A)。为进一步比较MT07和MT071随时间的表达稳定性,在非选择性条件下连续传代期间监测GFP荧光。流式细胞术分析在设门排除假事件后进行,以提高荧光检测准确性。在连续传代中,基于MT07的复制子显示出荧光强度逐渐下降和非荧光群体的出现,表明群体内部分质粒丢失或异质性质粒维持(补充图6B和6C)。相比之下,基于MT071的复制子在整个传代过程中维持相对稳定的GFP荧光,荧光群体更为均一。设计特异性引物以检查线粒体来源复制子质粒在体内的结构形式(补充图7A)。琼脂糖凝胶电泳显示,除MT06和MT10外,所有质粒均以环状形式检测到(补充图7B)。MT06未观察到可检测的DNA条带,可能由于其拷贝数相对其他复制子较低且在传代培养中快速质粒丢失。相比之下,MT10虽稳定性高,但未检测到环状质粒条带,表明该复制子可能以非典型线性形式存在、发生结构重排或整合至基因组中(补充图7C)。为研究使这些线粒体DNA片段能够在细胞核中复制的序列特征,进一步截短功能性复制子并鉴定了保留自主复制活性的最小片段(补充图8A)。四个最小片段MT0312、MT0711、MT0911和MT0912保留了复制子活性并支持GFP表达(补充图8B)。PCR分析进一步证实了转化子中相应质粒来源DNA的存在。四个最小复制子表现出不同的功能特性,在转化效率、质粒拷贝数、荧光强度和生物量方面存在差异(补充图8C–8F)。尽管四个最小片段均保留了复制子活性,但其整体功能性能相对于相应的较长复制子均有不同程度降低,MT0911为例外。这些观察表明复制子性能可能由核心复制区域及其侧翼序列共同决定。序列分析显示最小复制子间GC含量范围为28.96%至40.60%。MEME分析进一步鉴定了两个保守序列基序:一个存在于所有四个最小复制子中的17 bp基序(E值 = 3.0 × 10⁻³)和一个在三个最小复制子中检测到的43 bp基序。
【数据】线粒体基因组:78 kb;tRNA基因:62个;呼吸链/ATP合酶相关基因:25个;初始片段:12个(MT01-MT12,各约8 kb);支持自主复制的片段:5个(MT03、MT06、MT07、MT09、MT10);截短衍生物:3个(MT031、MT071、MT091);MT071转化效率:8.7个菌落/μg DNA;AMA1转化效率:6.3个菌落/μg DNA;MT07拷贝数:3.72;AMA1拷贝数:2.53;MT07生物量:约12.7 g/L;MT06生物量:约2.1 g/L;MT10质粒丢失:5次传代无丢失;MT091质粒丢失:第4次传代后;MT06/MT07质粒丢失:第1次传代后;MT071质粒丢失:第3次传代后;最小复制子GC含量:28.96%-40.60%;17 bp基序E值:3.0×10⁻³;43 bp基序:3个最小复制子中检测到
3.2 基于可治愈复制子的CRISPR/Cas9系统开发
(注:原文节选在此处结束,以下内容原文未详述。)
【数据】原文未详述
3.3 中性基因组整合位点的鉴定与表征
(注:原文节选在此处结束,以下内容原文未详述。)
【数据】原文未详述
3.4 基于MT071的表观游离表达系统中转录和翻译调控元件的表征与优化
(注:原文节选在此处结束,以下内容原文未详述。)
【数据】原文未详述
3.5 用于HMB生物合成和微生物蛋白生产的工程化禾谷镰刀菌菌株构建与评估
(注:原文节选在此处结束,以下内容原文未详述。)
【数据】原文未详述
讨论与解读
本研究通过复制子工程为禾谷镰刀菌A3/5开发了模块化合成生物学工具包,解决了丝状真菌工程化中的关键挑战,特别是迭代基因组编辑和多基因操作相关的问题。通过挖掘线粒体基因组,鉴定出两类具有不同维持特性的功能性复制子——稳定型和易治愈型(图2B)。与现有在米曲霉中开发的遗传工具包相比,本研究建立的线粒体DNA来源复制子工具包提供了具有稳定和可治愈复制子的互补游离系统,实现了禾谷镰刀菌中灵活的基因组工程和可调基因表达。这些复制子将丝状真菌游离表达的选择扩展至广泛使用的AMA1复制子之外,其不同的维持特性为不同工程场景提供了更大灵活性。重要的是,该复制子发现框架不限于禾谷镰刀菌,可广泛应用于AMA1载体兼容性差的其他非模式真菌物种,从而能够鉴定功能性复制子并开发针对个体宿主的游离表达系统。此外,截短为调控复制子功能特性提供了实用策略。
编译者解读:该研究以线粒体基因组为复制子挖掘来源,绕开了丝状真菌中常用AMA1复制子兼容性差的瓶颈,策略具有可迁移性。稳定型与可治愈型复制子的功能分工——前者用于表达元件表征,后者用于迭代编辑——体现了工具模块化的设计智慧。662.9倍的表达动态范围和HMB/蛋白共生产36.2 g/L与6.2 g/L的产量展示了工具箱的实用潜力。局限在于,最小复制子的功能性能普遍低于较长版本,核心复制区域与侧翼序列的协同机制尚需深入解析。
参考来源
期刊:Metabolic Engineering, 2027
DOI: 10.1016/j.ymben.2026.102559
DOI: 10.1016/j.ymben.2026.102559