来源:Biotransformation of quinoa saponins by Aspergillus niger sp.848 and isolation of novel saponins with antiproliferative activity(Food Bioscience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
藜麦麸皮是藜麦加工的主要副产物,富含皂苷却长期未被充分利用。本研究利用黑曲霉sp.848粗酶液,在pH 2.2和8.0两种极端条件下对藜麦皂苷进行生物转化,通过制备型HPLC分离、HR-MS和NMR鉴定产物结构。pH 2.2条件下C-3和C-28位糖基被完全水解,得到一种新型皂苷A1(3-O-α-L-阿拉伯吡喃糖基商陆酸)和A2(3-O-α-L-阿拉伯吡喃糖基常春藤皂苷元);pH 8.0条件下仅C-3位糖基选择性水解,得到B1和B2。pH 2.2产物混合物在25 μg/mL浓度下对四种癌细胞系的抑制率超过96%,而天然皂苷即使在1000 μg/mL下也几乎无活性。
研究背景
藜麦(Chenopodium quinoa Willd.)是一种原产于安第斯地区的伪谷物,营养组成丰富。除基本营养素外,藜麦还含有多种生物活性化合物,其中皂苷尤为引人关注。藜麦皂苷属于五环三萜皂苷,主要苷元为齐墩果酸、常春藤皂苷元和商陆酸,糖基通常连接在C-3和C-28位。已有研究表明,藜麦皂苷具有抗炎、抗氧化和抗菌等多种生物活性。这些皂苷主要分布在种皮外层,加工过程中作为麸皮被丢弃,而这一副产物占总皂苷含量的68%以上。因此,藜麦麸皮是一种廉价易得的皂苷来源。然而,天然藜麦皂苷携带较长的寡糖链,分子量大,限制了其生物利用度和生物活性。三萜皂苷的构效关系已被广泛研究,糖基的数量和位置对活性有决定性影响。
研究方法
2.1 材料、试剂与菌株
藜麦麸皮由甘肃粟世原料食品厂(中国甘肃)提供。真菌菌株黑曲霉sp.848(A. niger sp.848)来自大连工业大学生物工程学院菌种保藏中心。齐墩果酸标准品购自上海源叶生物科技有限公司。分析纯试剂包括石油醚、乙酸乙酯、正丁醇、甲醇、乙醇、氯仿、盐酸、氢氧化钠和磷酸盐,均由天津科密欧化学试剂有限公司提供。色谱纯甲醇和乙腈购自德国Merck公司。超纯水由Milli-Q水纯化系统制备。AB-8大孔吸附树脂购自上海麦克林生化科技有限公司。细胞培养试剂包括Dulbecco's Modified Eagle Medium、F12培养基、胎牛血清、青霉素-链霉素、0.25%胰蛋白酶-0.02% EDTA、Wst-8、PMS和DMSO,均购自美国Thermo Fisher公司。
【数据】藜麦麸皮来源:甘肃粟世原料食品厂;菌株:黑曲霉sp.848;大孔树脂型号:AB-8;培养基:DMEM、F12;原文未详述其他试剂的具体批号或纯度参数
2.2 藜麦粗皂苷的提取与纯化
取干燥藜麦麸皮1 kg,用石油醚(1:5,g/mL)在室温下脱脂24 h。脱脂后的麸皮风干,然后用75%乙醇进行两次超声辅助提取(第一次提取比例1:25,g/mL;第二次1:15,g/mL),每次在30°C下提取50 min(100 W,40 kHz)。合并提取液,在50°C下减压浓缩至约300 mL。浓缩液进一步用石油醚(1:1,v/v)分配三次以去除残留脂质。水层然后用饱和正丁醇(2:1,v/v,正丁醇与水层之比)萃取三次。收集正丁醇相,用旋转蒸发仪在65°C下浓缩,随后在70°C水浴中完全干燥,得到粗皂苷提取物。将粗皂苷提取物(100 g藜麦麸皮约得13.67 g)溶于20%甲醇-水(10 mg/mL,终体积200 mL),上样到AB-8大孔树脂柱(500 mm × 30 mm,树脂体积300 mL),该柱预先依次用2% NaOH、去离子水、2% HCl和去离子水处理。用10倍柱体积(3 L)去离子水洗涤柱子。然后用95%乙醇(3 L)洗脱皂苷。合并皂苷阳性流分,浓缩并干燥,得到10.14 g纯化粗皂苷。从粗提取物中的回收率为74.2%。
【数据】麸皮用量:1 kg;脱脂条件:石油醚1:5(g/mL)、室温、24 h;提取条件:75%乙醇、第一次1:25(g/mL)、第二次1:15(g/mL)、30°C、50 min/次、100 W、40 kHz;浓缩温度:50°C;正丁醇萃取比例:2:1(v/v);旋蒸温度:65°C;水浴干燥温度:70°C;粗皂苷产量:13.67 g/100 g麸皮;AB-8柱规格:500 mm × 30 mm、300 mL树脂;上样浓度:10 mg/mL(20%甲醇-水);水洗体积:3 L(10倍柱体积);洗脱液:95%乙醇3 L;纯化粗皂苷产量:10.14 g;回收率:74.2%
2.3 黑曲霉sp.848粗酶液的制备
黑曲霉sp.848先在PDA斜面上30°C培养5–7天。用于产酶时,将孢子接种到含麦麸和水的固态发酵培养基(1:1,w/v)中,30°C培养7天。粗酶提取时,向发酵固体培养基中加入不同pH的缓冲液(柠檬酸-磷酸盐缓冲液,pH 2.2、4.0、5.0、6.0和8.0),比例为1:10(w/v)。浸泡2 h后,用六层纱布过滤混合物。滤液在4°C下以8,000×g离心15 min以去除菌丝体和固体残渣。然后向 supernatant 中加入乙醇至终浓度75%(v/v),4°C静置24 h进行沉淀。通过离心(8,000×g,15 min)收集沉淀,重新溶于各自原始缓冲液中,所有pH条件下蛋白质浓度通过相应缓冲液稀释调节至约2.5 mg/mL(Bradford法),再次离心(10,000×g,15 min)。最终上清液即为粗酶液,4°C保存备用。粗酶活性以对硝基苯基-β-D-吡喃葡萄糖苷(pNPG)为底物进行表征。一单位(U)β-葡萄糖苷酶活性定义为在40°C、pH 5.0条件下每分钟释放1 μmol对硝基苯酚的酶量。粗酶提取物的比活性为12.4 U/mg蛋白(Bradford法)。粗酶液的蛋白质浓度约为2.5 mg/mL。粗酶提取物预计含有多种糖苷酶,包括β-葡萄糖苷酶、α-L-阿拉伯呋喃糖苷酶和酯酶活性,这些酶共同贡献于观察到的pH依赖性生物转化谱。
【数据】斜面培养:PDA、30°C、5–7天;固态发酵:麦麸:水=1:1(w/v)、30°C、7天;缓冲液:柠檬酸-磷酸盐、pH 2.2/4.0/5.0/6.0/8.0;浸泡比例:1:10(w/v)、2 h;离心条件:8,000×g、15 min、4°C;乙醇沉淀终浓度:75%(v/v)、4°C、24 h;二次离心:10,000×g、15 min;蛋白浓度:2.5 mg/mL(Bradford法);酶活测定底物:pNPG;酶活定义:40°C、pH 5.0、1 μmol pNP/min;比活性:12.4 U/mg蛋白
2.4 藜麦皂苷的生物转化
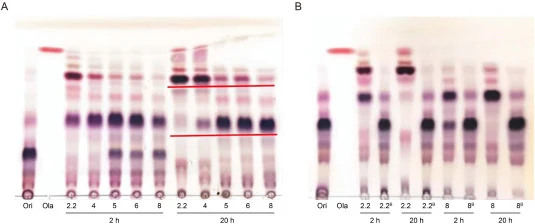
生物转化反应分别在pH 2.2、4.0、5.0、6.0和8.0条件下使用柠檬酸-磷酸盐缓冲液进行。每个pH条件下,反应混合物含200 mL纯化藜麦皂苷溶液(10 mg/mL溶于水)和200 mL对应pH的粗酶液(按2.3节所述制备)。混合物在40°C、160 rpm摇床培养箱中孵育。反应时间(2 h和20 h)基于初步时间进程TLC监测选定:2 h用于部分转化,20 h用于最大转化。在0、2、4、8、12、20和24 h取样进行TLC分析(图S1),并对产物和副产物条带的灰度强度值进行定量(表S1)。对照实验使用相同pH缓冲液但不含粗酶,以验证观察到的转化是由酶活性而非pH本身引起。
【数据】反应pH:2.2、4.0、5.0、6.0、8.0;缓冲液:柠檬酸-磷酸盐;皂苷溶液:200 mL、10 mg/mL;粗酶液:200 mL;温度:40°C;转速:160 rpm;取样时间点:0、2、4、8、12、20、24 h;选定反应时间:2 h(部分转化)、20 h(最大转化)
2.5 薄层色谱(TLC)
TLC在预涂硅胶GF254板上进行。点样后,板在氯仿-甲醇-水(7:3:0.5,v/v/v)溶剂系统中展开。展开后的板干燥,喷洒10%(v/v)硫酸乙醇溶液,然后在105°C加热板上加热至出现特征性暗斑。
【数据】固定相:硅胶GF254;展开剂:氯仿-甲醇-水=7:3:0.5(v/v/v);显色剂:10%(v/v)硫酸乙醇;加热温度:105°C
2.6 高效液相色谱(HPLC)分析
HPLC分析在Waters Alliance HPLC系统(美国Waters)上进行,配备C18 HC柱(2.1 × 150 mm,5 μm)。流动相由(A)水和(B)乙腈组成,梯度洗脱程序如下:0–30 min,5–70% B;30–31 min,70–95% B;31–40 min,95% B。流速设为0.2 mL/min,柱温维持30°C,进样体积2 μL,检测波长204 nm。这些条件针对藜麦皂苷及其生物转化产物的分离和检测进行了优化。
【数据】色谱系统:Waters Alliance HPLC;色谱柱:C18 HC(2.1 × 150 mm,5 μm);流动相:A=水、B=乙腈;梯度:0–30 min 5–70% B、30–31 min 70–95% B、31–40 min 95% B;流速:0.2 mL/min;柱温:30°C;进样量:2 μL;检测波长:204 nm
2.7 转化皂苷的分离与纯化
分离使用制备型HPLC(美国Waters)配合C18 HC柱(10 × 150 mm,5 μm)进行。对于pH 2.2转化产物(A1和A2)的分离,流动相由(A)水和(B)甲醇组成,梯度程序如下:0–7 min,60% B;7–7.1 min,60–70% B;7.1–20 min,70% B;20–20.1 min,70–85% B;20.1–28 min,85% B;28–28.1 min,85–100% B;28.1–38 min,100% B。流速为3.0 mL/min,进样体积100 μL(样品浓度:100 mg/mL溶于甲醇),检测波长204 nm。对于pH 8.0转化产物(B1和B2),采用与pH 2.2产物相同的制备型HPLC条件。根据各自保留时间收集对应目标峰的流分。所有收集的流分浓缩、冻干,保存为粉末状固体,用于后续结构表征和生物活性评价。
【数据】制备型HPLC:Waters;色谱柱:C18 HC(10 × 150 mm,5 μm);流动相:A=水、B=甲醇;梯度:0–7 min 60% B、7–7.1 min 60–70% B、7.1–20 min 70% B、20–20.1 min 70–85% B、20.1–28 min 85% B、28–28.1 min 85–100% B、28.1–38 min 100% B;流速:3.0 mL/min;进样体积:100 μL;样品浓度:100 mg/mL(甲醇);检测波长:204 nm
2.8 结构解析
分离化合物(A1、A2、B1、B2)的结构通过光谱方法确定。高分辨质谱(HR-MS)在Agilent 6545 Q-TOF质谱仪上进行,与Agilent 1260 HPLC系统联用。NMR谱(1H和13C)在Bruker Avance III HD 500 MHz光谱仪上记录,使用吡啶-D5作为溶剂。化学位移以百万分之一(ppm)为单位,相对于四甲基硅烷内标报告。
【数据】HR-MS仪器:Agilent 6545 Q-TOF,联用Agilent 1260 HPLC;NMR仪器:Bruker Avance III HD 500 MHz;溶剂:吡啶-D5;内标:四甲基硅烷;原文未详述其他参数
2.9 抗增殖活性测定
样品的抗增殖活性测定……
【数据】原文未详述
研究结果
3.1 pH对藜麦皂苷生物转化的影响
为研究生物转化的pH依赖性,用不同pH的粗酶液处理粗藜麦皂苷。所得产物通过TLC分析,并与未处理粗皂苷和齐墩果酸标准品进行比较(图1A)。TLC结果显示pH与转化率之间呈负相关,较低pH值加速转化。这在pH 2.2时尤为明显,主要皂苷斑点在该条件下孵育20 h后消失。同时,在pH 2.2和4.0的反应中检测到齐墩果酸,表明在这些条件下部分皂苷被完全酶水解为苷元。pH 2.2和8.0条件下获得的酶水解产物相对简单,各以一种皂苷为主。相比之下,pH 4.0、5.0和6.0的水解产物组成更复杂,同时含有两个极端pH条件下观察到的产物(图1A)。因此,本研究重点关注pH 2.2和8.0转化所得的皂苷。如图S1所示,转化在20 h达到平台期,此时产物积累量最大。延长孵育至24 h导致产物条带减少,表明A1/A2进一步转化。值得注意的是,本研究中使用的所有粗酶制剂在生物转化前均调整至相同的总可溶性蛋白浓度(2.5 mg/mL)。虽然这确保了等蛋白上样量,但我们承认由于蛋白质溶解性和折叠状态的差异,不同pH条件下活性酶的量可能不同。因此,观察到的pH依赖性产物谱应被解释为各pH条件下酶活性、底物特异性和蛋白质回收率的综合结果。为验证不同pH粗酶液对藜麦皂苷的生物转化确实由酶活性而非pH本身引起,使用不含粗酶的缓冲液进行了对照实验。如图1B所示,TLC分析表明,当藜麦皂苷水溶液与pH 2.2或8.0的粗酶液反应时,转化产物中出现新的皂苷斑点,且转化前存在的主要皂苷几乎完全被消耗。相反,当皂苷水溶液与相同pH值的缓冲液孵育时,反应后的产物谱与反应前相同。这清楚表明不同pH值的缓冲液不会诱导生物转化,证实观察到的藜麦皂苷转化完全归因于粗酶制剂的作用。
【数据】pH条件:2.2、4.0、5.0、6.0、8.0;转化率与pH呈负相关;pH 2.2下20 h主要皂苷斑点消失;pH 2.2和4.0检测到齐墩果酸;转化平台期:20 h;延长至24 h产物条带减少;蛋白浓度:2.5 mg/mL;对照实验缓冲液pH:2.2和8.0
3.2 藜麦皂苷转化产物的HPLC分析
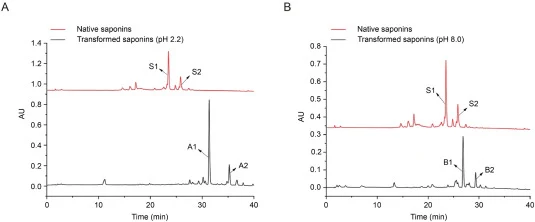
2 g粗藜麦皂苷经pH 2.2粗酶液生物转化后,正丁醇萃取得到1.214 g产物。比较反应前后的HPLC图谱(图2A)发现色谱图发生显著变化。原始主要峰(保留时间Rt 15–28 min)被一组新峰(Rt 27–37 min)取代。在新峰组中,A1峰(Rt 32 min)和A2峰(Rt 35.5 min)信号强度最高,被确定为主要转化产物。类似地,2 g粗藜麦皂苷在pH 8.0下生物转化后,萃取得到1.078 g产物。相应的HPLC图谱(图2B)显示类似程度的变化,原始峰(Rt 15–28 min)被一组新峰(洗脱于23–31 min)取代。其中最显著的峰B1(27 min)和B2(29.5 min)被确定为pH 8.0生物转化的主要产物。从2.0 g粗藜麦皂苷出发,pH 2.2转化得到1.214 g总产物(回收率60.7%)。经制备型HPLC后,获得纯化合物A1(312 mg)和A2(458 mg),相对于起始粗皂苷的分离产率分别为15.6%和22.9%。pH 8.0转化得到1.078 g总产物(回收率53.9%),从中分离得到B1(286 mg)和B2(394 mg)(产率分别为14.3%和19.7%)。
【数据】pH 2.2:起始粗皂苷2 g、产物1.214 g、回收率60.7%;A1产量312 mg、分离产率15.6%;A2产量458 mg、分离产率22.9%;A1保留时间32 min、A2保留时间35.5 min;pH 8.0:起始粗皂苷2 g、产物1.078 g、回收率53.9%;B1产量286 mg、产率14.3%;B2产量394 mg、产率19.7%;B1保留时间27 min、B2保留时间29.5 min;原始峰Rt 15–28 min;pH 2.2新峰Rt 27–37 min;pH 8.0新峰Rt 23–31 min
3.3 转化皂苷的分离与结构表征
在pH 2.2和8.0两种独特条件下获得的生物转化产物通过制备型HPLC分离纯化,得到四种主要化合物(A1、A2、B1和B2)的纯品,用于结构表征。
#### 3.3.1 pH 2.2转化产物中新型皂苷(A1)及其同系物(A2)的鉴定
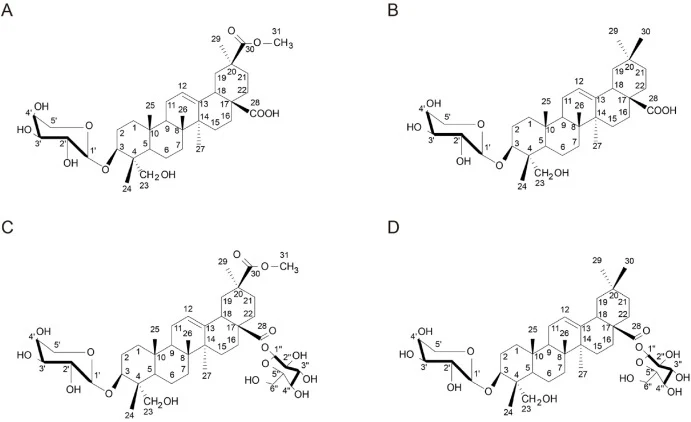
化合物A1为白色无定形粉末。负离子模式HR-MS显示去质子化分子离子[M-H]-在m/z 647.3808,与分子式C36H56O10一致(计算值647.3796,Δ 1.85 ppm)。1H NMR谱(500 MHz,吡啶-d5)显示六个叔甲基信号δ 0.93、0.94、1.03、1.22、1.25(各3H,s),一个甲氧基单峰δ 3.67(3H,s,31-OCH3),一个烯烃质子δ 5.63(1H,t,J = 3.3 Hz,H-12),以及一个端基质子δ 5.00(1H,br d,J = 7.2 Hz,H-1′),表明存在一个糖单元。13C NMR谱(125 MHz,吡啶-d5)显示36个碳信号,包括两个羧基碳δ 180.7(C-28)和δ 178.1(C-30),一个甲氧基碳δ 52.6(31-OCH3),以及一个烯烃键δ 124.3(C-12)和145.3(C-13)。与文献数据比较(Madl et al., 2006),苷元被鉴定为商陆酸,特征为C-30位存在甲酯基(δc 178.1和52.6;δH 3.67)。糖单元根据端基质子偶合常数(J = 7.2 Hz)和特征13C化学位移(δ 107.7、73.4、75.0、70.6、68.0)确定为α-L-阿拉伯吡喃糖,与三萜皂苷中α-L-阿拉伯吡喃糖残基的报道数据一致(Madl et al., 2006)。化合物A1的完整1H和13C NMR归属总结于表1。该结构通过2D NMR分析进一步确认(图S2)。COSY谱显示从H-1'(δ 5.00)到H-2'(δ 4.45)、H-2′到H-3'(δ 4.08)、H-3′到H-4'(δ 4.27)以及H-4′到H2-5'(δ 3.74、4.31)的连续相关,确认了阿拉伯吡喃糖环的自旋系统。在苷元部分,COSY相关建立了A、B、C环的质子自旋系统,包括H-12/H-11和H-18/H-19/H2-21/H2-22连接。HMBC谱为确定糖基化位点和苷元结构提供了关键相关。阿拉伯糖在C-3位的连接由H-1'(δ 5.00)到C-3(δ 82.8)的HMBC相关确认。其他关键HMBC相关包括:H-12(δ 5.63)到C-14(δ 42.9)和C-18(δ 44.4),确认Δ12双键;H-31(δ 3.67)到C-30(δ 178.1),确认C-30位甲酯基;H-23(δ 4.32、3.72)到C-3(δ 82.8)、C-4(δ 44.3)和C-5(δ 48.5),支持C-23位羟甲基的归属。因此,A1被明确表征为3-O-α-L-阿拉伯吡喃糖基商陆酸(图3A)。文献检索表明该特定皂苷此前未见报道,因此A1为新化合物。化合物A2在HR-MS中给出[M-H]-离子在m/z 603.3906,对应分子式C35H56O8(计算值603.3897,Δ 1.49 ppm)。其1H和13C NMR数据(表2)与A1相似,区别在于缺少甲酯基信号(31-OCH3的δc 52.6、δH 3.67;C-30的δc 178.1),并出现一个额外的叔甲基信号δ 0.94(s,3H,H-30)。与文献数据比较(Madl et al., 2006),苷元……
【数据】A1:HR-MS [M-H]- m/z 647.3808,分子式C36H56O10(计算值647.3796,Δ 1.85 ppm);1H NMR δ 0.93、0.94、1.03、1.22、1.25(各3H,s,叔甲基),δ 3.67(3H,s,31-OCH3),δ 5.63(1H,t,J = 3.3 Hz,H-12),δ 5.00(1H,br d,J = 7.2 Hz,H-1′);13C NMR δ 180.7(C-28)、178.1(C-30)、52.6(31-OCH3)、124.3(C-12)、145.3(C-13)、107.7、73.4、75.0、70.6、68.0(阿拉伯吡喃糖);HMBC:H-1'到C-3(δ 82.8);A2:HR-MS [M-H]- m/z 603.3906,分子式C35H56O8(计算值603.3897,Δ 1.49 ppm);δ 0.94(s,3H,H-30);NMR仪器:500 MHz(1H)、125 MHz(13C);溶剂:吡啶-d5
讨论与解读
本研究成功建立了一种利用黑曲霉sp.848粗酶提取物对藜麦皂苷进行定向结构修饰的高效生物工艺。研究证明糖苷酶活性具有pH依赖性,可选择性地产生不同的皂苷衍生物。在酸性条件(pH 2.2)下,C-3和C-28位糖基被完全水解,分离得到一种新型皂苷3-O-α-L-阿拉伯吡喃糖基商陆酸(A1)以及高活性的3-O-α-L-阿拉伯吡喃糖基常春藤皂苷元(A2)。这些化合物的显著抗增殖活性证实C-28位葡萄糖酯的水解是激活藜麦皂苷生物活性的关键步骤。该工作不仅为藜麦加工废弃物的增值利用提供了可持续途径,也为三萜皂苷的微生物转化提供了新见解,有望应用于功能性食品配料和营养保健品。
编译者解读
该研究的巧妙之处在于利用粗酶体系而非纯化酶,通过简单的pH调控实现皂苷C-3和C-28位糖基的选择性水解,一步获得结构多样的衍生物。A2在5 μM下即实现近完全抑制,活性提升幅度惊人——从天然皂苷1000 μg/mL无活性到25 μg/mL下>96%抑制率,提示C-28位脱糖是活性开关。不过,粗酶体系中多酶协同的分子机制尚未阐明,且pH对酶构象的影响与底物特异性的贡献未拆分。从合成生物学角度看,后续可尝试异源表达关键糖苷酶,实现更精准的定向转化。
参考来源
期刊:Food Bioscience, 2026
DOI: 10.1016/j.fbio.2026.110134
DOI: 10.1016/j.fbio.2026.110134