来源:Systematic metabolic engineering of Escherichia coli for high-level production of pseudouridine via pathway optimization and precursor enhancement(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
假尿苷是尿苷的C5-核糖差向异构体,在mRNA疫苗和肿瘤标志物领域应用广泛。本研究以大肠杆菌BL21(DE3)为底盘,通过过表达psuG/YjjG构建假尿苷合成途径,结合多轮基因敲除与前体供给强化,在5 L生物反应器中实现102.2 g L⁻¹的假尿苷产量,转化效率超过91%,创下当时最高纪录。
研究背景
假尿苷是尿苷的结构异构体,其碱基与核糖之间的连接由N–C键变为C–C键,碱基绕N3–C6轴旋转180°。作为最早发现且最普遍的RNA修饰,假尿苷被称为"第五种核苷"。这种修饰赋予RNA独特的结构与功能特性——增强mRNA稳定性、大幅降低免疫原性、适度提升翻译效率。基于假尿苷的正交密码子策略已用于哺乳动物系统中非天然氨基酸的位点特异性掺入。在COVID-19 mRNA疫苗中,假尿苷的引入通过降低疫苗免疫原性同时提升了安全性和有效性。假尿苷的临床应用不限于疫苗领域:作为仅通过肾脏途径排泄的RNA特异性代谢物,它是肿瘤监测和肾病管理的有价值标志物。
然而,野生型大肠杆菌的假尿苷产量极低,难以检测。此前研究通过酶筛选和表达调控将产量提升至0.511–0.77 g L⁻¹,但距离工业化需求仍有较大差距。本研究通过系统代谢工程策略——途径构建、竞争途径阻断、转运工程和前体强化——大幅提升假尿苷产量。
研究方法
2.1 菌株与质粒
大肠杆菌BL21 (DE3)同时作为基因克隆宿主和初始假尿苷生产菌株。质粒pRSFDuet-1和pCDFDuet-1用于在大肠杆菌BL21 (DE3)中过表达关键酶基因,CRISPR-Cas9系统质粒pCas和pTargetF用于基因敲除。本研究所用或构建的所有菌株和质粒分别详见表S1和表S2。引物合成由金斯瑞生物科技公司(中国苏州)完成,序列见表S3。关键基因(YjjG、psuG、rihA和rbsK)的基因ID见表S4。
【数据】菌株:E. coli BL21 (DE3);质粒:pRSFDuet-1、pCDFDuet-1、pCas、pTargetF;原文未详述其他具体参数
2.2 试剂
蛋白胨和酵母提取物购自安琪酵母股份有限公司(中国宜昌)。甘油、KH₂PO₄、K₂HPO₄、NaCl、甲醇和磷酸购自国药集团化学试剂有限公司(中国上海)。L-阿拉伯糖购自阿拉丁生化科技股份有限公司(中国上海)。尿苷、假尿苷、卡那霉素、链霉素、壮观霉素和异丙基-β-D-1-硫代吡喃半乳糖苷(IPTG)购自麦克林生化科技有限公司(中国上海)。尿嘧啶购自北京索莱宝科技有限公司(中国北京)。基因组DNA提取试剂盒、质粒提取试剂盒、凝胶纯化试剂盒、柱纯化试剂盒和2 × Taq Master Mix购自江苏康为世纪生物科技股份有限公司(中国泰州)。Ex Taq DNA聚合酶购自宝生物工程(大连)有限公司(中国北京)。
【数据】试剂来源:安琪酵母、国药集团、阿拉丁、麦克林、索莱宝、康为世纪、Takara;原文未详述试剂纯度等级
2.3 培养基与培养条件
培养基组成如下:LB培养基(10 g L⁻¹蛋白胨、5 g L⁻¹酵母提取物、10 g L⁻¹ NaCl),TB培养基(12 g L⁻¹蛋白胨、24 g L⁻¹酵母提取物、4 mL L⁻¹甘油、2.31 g L⁻¹ KH₂PO₄、12.54 g L⁻¹ K₂HPO₄),以及生物反应器发酵培养基(12 g L⁻¹蛋白胨、24 g L⁻¹酵母提取物、4 mL L⁻¹甘油、2.31 g L⁻¹ KH₂PO₄、12.54 g L⁻¹ K₂HPO₄),后者以2 L批量配制。对于重组大肠杆菌培养,单菌落首先在固体LB培养基上于37 °C培养10 h,然后接种至20 mL LB培养基(100 mL摇瓶)中,于37 °C、200 rpm培养9 h。随后,种子培养液以2%(v/v)接种量转接至50 mL TB培养基(250 mL摇瓶)中,在相同条件下培养至OD₆₀₀达到1.0–1.2,然后降温至25 °C并用1.0 mM IPTG诱导。
【数据】培养基:LB(10 g L⁻¹蛋白胨、5 g L⁻¹酵母提取物、10 g L⁻¹ NaCl)、TB(12 g L⁻¹蛋白胨、24 g L⁻¹酵母提取物、4 mL L⁻¹甘油、2.31 g L⁻¹ KH₂PO₄、12.54 g L⁻¹ K₂HPO₄);温度:37 °C(初始培养)、25 °C(诱导后);时间:10 h(固体培养)、9 h(种子培养);转速:200 rpm;接种量:2%(v/v);诱导剂:1.0 mM IPTG;OD₆₀₀:1.0–1.2
2.4 重组质粒的构建
以pRSFDuet-1-YjjG质粒的构建为例说明。YjjG基因从大肠杆菌BL21基因组DNA中使用引物YjjG-FW和YjjG-RS进行PCR扩增,循环条件如下:98 °C初始变性3 min;30个循环的98 °C变性15 s、55 °C退火30 s、72 °C延伸(延伸时间根据扩增子长度按1 kb min⁻¹确定);最后72 °C终延伸10 min。扩增片段和pRSFDuet-1质粒均用EcoRI和HindIII双酶切,使用柱纯化试剂盒纯化,用Ligation Solution I连接。连接混合物转化至化学感受态大肠杆菌BL21 (DE3)细胞中,涂布于含50 mg L⁻¹卡那霉素的LB琼脂平板,37 °C培养12 h。挑选单菌落于LB培养基中37 °C、200 rpm培养12 h用于质粒提取,通过EcoRI和HindIII双酶切及测序验证成功重组子。
【数据】PCR条件:98 °C 3 min(初始变性)、30循环(98 °C 15 s、55 °C 30 s、72 °C 1 kb min⁻¹)、72 °C 10 min(终延伸);酶切:EcoRI、HindIII;抗生素:50 mg L⁻¹卡那霉素;温度:37 °C;时间:12 h;转速:200 rpm
2.5 基因敲除
本研究采用CRISPR/Cas9系统进行大肠杆菌基因组工程,使用质粒pCas和pTargetF。含靶向特定基因sgRNA片段的pTargetF质粒通过PCR扩增,引物中整合了设计的sgRNA序列。模板质粒经Dpn I消化后,产物转化至化学感受态大肠杆菌BL21细胞中,涂布于含100 mg·L⁻¹壮观霉素的LB琼脂平板,37 °C培养12 h。通过菌落挑选、质粒提取和测序鉴定阳性重组质粒(pTargetF-sgRNA)。从大肠杆菌BL21基因组DNA中PCR扩增约500 bp的上游和下游同源臂,通过重叠延伸PCR组装成重组模板片段。同时,将pCas转化至大肠杆菌BL21中,涂布于含50 mg L⁻¹卡那霉素的LB琼脂平板,30 °C培养12 h。挑选菌落于20 mL LB培养基(100 mL摇瓶)中30 °C、200 rpm培养10 h,然后以1%接种量转接至50 mL LB培养基(250 mL摇瓶)中培养至OD₆₀₀达到0.2。用1.5 mM L-阿拉伯糖诱导Cas9表达至OD₆₀₀达到0.6,随后制备电感受态细胞。将pTargetF-sgRNA质粒和重组模板片段通过电穿孔共转化,在LB培养基中恢复(30 °C、200 rpm、2 h),涂布于含50 mg L⁻¹卡那霉素和100 mg·L⁻¹壮观霉素的LB琼脂平板,30 °C培养12 h。通过菌落PCR验证成功敲除,阳性菌落于含1 mM IPTG的1 mL LB培养基中培养(30 °C、200 rpm、2 h),然后涂布于卡那霉素平板以消除pTargetF-sgRNA。最终敲除菌落通过在42 °C培养12 h去除pCas获得。
【数据】CRISPR系统:pCas/pTargetF;壮观霉素:100 mg·L⁻¹;卡那霉素:50 mg L⁻¹;同源臂长度:约500 bp;L-阿拉伯糖:1.5 mM;IPTG:1 mM;温度:30 °C(敲除过程)、42 °C(去除pCas);时间:12 h(培养)、2 h(恢复/诱导);转速:200 rpm;接种量:1%
2.6 5-L生物反应器中假尿苷的生产
工程菌株首先在50 mL LB培养基(500 mL摇瓶)中于37 °C、200 rpm预培养。当细胞密度OD₆₀₀达到1.8时,以5%(v/v)接种量转移至含2 L初始培养基的5-L生物反应器中。发酵通气率为1.5 vvm。pH通过添加30%(v/v)氢氧化铵自动维持在7.0。溶解氧(DO)通过搅拌转速耦合控制在30%–50%之间。初始葡萄糖耗尽后(由DO反弹指示),补充浓缩葡萄糖溶液(500 g L⁻¹)以维持残余葡萄糖浓度低于3 g L⁻¹。培养8 h时,温度从37 °C降至25 °C,加入IPTG至终浓度0.8 mM以诱导表达。同时启动尿苷补料策略。对于目标终浓度70 g L⁻¹尿苷的条件,补料方式如下:8–20 h以300 g·L⁻¹溶液、20 mL h⁻¹补料,20–50 h以6 mL h⁻¹补料,50–54 h以250 g·L⁻¹溶液、20 mL h⁻¹补料。对于120 g L⁻¹终浓度尿苷条件,补料曲线为:8–20 h以350 g·L⁻¹溶液、20 mL h⁻¹补料,20–36 h以6.25 mL h⁻¹补料,36–40 h以15 mL h⁻¹补料,40–60 h以333.3 g·L⁻¹溶液、20 mL h⁻¹补料。
【数据】生物反应器体积:5 L;初始培养基体积:2 L;接种量:5%(v/v);通气率:1.5 vvm;pH:7.0(30%氢氧化铵维持);DO:30%–50%;葡萄糖补料浓度:500 g L⁻¹;残糖控制:<3 g L⁻¹;温度切换:37 °C→25 °C(8 h);IPTG:0.8 mM;尿苷补料(70 g L⁻¹条件):8–20 h(300 g·L⁻¹、20 mL h⁻¹)、20–50 h(6 mL h⁻¹)、50–54 h(250 g·L⁻¹、20 mL h⁻¹);尿苷补料(120 g L⁻¹条件):8–20 h(350 g·L⁻¹、20 mL h⁻¹)、20–36 h(6.25 mL h⁻¹)、36–40 h(15 mL h⁻¹)、40–60 h(333.3 g·L⁻¹、20 mL h⁻¹)
2.7 假尿苷的检测
假尿苷、尿嘧啶和尿苷浓度通过HPLC定量,使用Diamonsil 5 μm C18柱(250 × 4.6 mm),参数如下:流动相为5%甲醇:水(95:5,v:v),用磷酸调节至pH 3.0,流速维持1 mL min⁻¹,柱温设为30 °C,检测波长固定为260 nm,进样体积10 μL。
【数据】色谱柱:Diamonsil 5 μm C18(250 × 4.6 mm);流动相:5%甲醇:水(95:5,v:v),pH 3.0(磷酸调节);流速:1 mL min⁻¹;柱温:30 °C;检测波长:260 nm;进样量:10 μL
2.8 统计分析
所有实验均进行三次生物学重复,数据以平均值±标准差表示。采用双尾Student's t检验评估统计学差异,p < 0.05视为显著性阈值。
【数据】重复次数:3次生物学重复;统计方法:双尾Student's t检验;显著性阈值:p < 0.05
研究结果
3.1 通过过表达psuG和YjjG基因增强假尿苷合成
大肠杆菌天然拥有假尿苷合成所需的关键酶,包括假尿苷-5-磷酸糖苷酶(PsuG),该酶催化D-核糖和尿嘧啶转化为假尿苷-5-磷酸,随后由碱性磷酸酶YjjG去磷酸化生成假尿苷。然而,野生型大肠杆菌产生的假尿苷水平低至无法检测。本研究中,大肠杆菌BL21被工程化改造,通过过表达psuG和YjjG基因增强假尿苷积累。将共表达质粒pRSFDuet-1-YjjG-psuG转化至大肠杆菌BL21中构建了重组菌株E. coli pRSFDuet-1-YjjG-psuG(图2A)。E. coli pRSFDuet-1-YjjG-psuG在84 h时达到0.43 g L⁻¹假尿苷(图2B),而尿嘧啶浓度在24 h达到峰值0.13 g L⁻¹,随后在72 h降至<0.05 g L⁻¹;尿苷始终维持在低水平(<0.05 g L⁻¹)。在E. coli pRSFDuet-1-YjjG-psuG促进的假尿苷从头合成过程中,比假尿苷生产速率在指数生长早期达到峰值。随着比生长速率急剧下降,比假尿苷生产速率相应降低并趋近于零(图S1)。这些观察表明,从头假尿苷合成与活跃的细胞代谢紧密耦合。指数期细胞表现出最强的代谢活性,从而支持最高的产物合成效率。进入稳定期后,整体代谢活性下降,导致生物合成能力随之降低。为克服尿嘧啶水溶性差和核糖-5-磷酸成本高的限制,向发酵培养基中补充5 g·L⁻¹尿苷,96 h时产生3.68 g L⁻¹假尿苷(较对照增加8.56倍)(图2C)。添加尿苷后,尿嘧啶在24 h达到峰值1.54 g L⁻¹,逐渐降至96 h的1.11 g L⁻¹,而尿苷稳步下降,96 h时稳定在0.40 g L⁻¹。补充尿苷后,比生长速率在初始阶段保持较低,而比假尿苷生产速率增加并达到峰值。这一现象可归因于外源尿苷优先进入假尿苷生物合成而非生物量形成,导致早期生长短暂受抑。当尿苷消耗至阈值水平时,细胞密度和比生长速率均恢复,在中后期达到最大生长速率。这一转变表明高尿苷可用性引起的生长抑制得到缓解,伴随代谢向活跃细胞增殖转变(图S2)。多项研究已证明ΨMP糖苷酶和ΨMP磷酸酶在大肠杆菌中构建高效假尿苷生物合成途径的关键作用。例如,Zhou等人鉴定了RspsuG(来自根瘤菌sp. CF142的假尿苷-5'-磷酸糖苷酶)和YjjG(来自大肠杆菌的ΨMP特异性磷酸酶)为最佳酶候选。通过启动子优化和基因顺序重排精细调控其表达水平,他们实现了0.511 g L⁻¹的假尿苷滴度。类似地,Zhang等人在大肠杆菌MG1655中表达来自嗜水气单胞菌的ApsuG和大肠杆菌的yjjG,达到0.77 g L⁻¹的滴度。这些研究共同强调了酶选择和表达平衡对最大化假尿苷生产的重要性。
【数据】假尿苷产量:0.43 g L⁻¹(84 h,无尿苷补充)、3.68 g L⁻¹(96 h,5 g L⁻¹尿苷补充);提升倍数:8.56倍;尿嘧啶峰值:0.13 g L⁻¹(24 h)、1.54 g L⁻¹(24 h,补尿苷后);尿苷残留:<0.05 g L⁻¹(无补充)、0.40 g L⁻¹(96 h,补尿苷后);尿嘧啶终浓度:<0.05 g L⁻¹(72 h)、1.11 g L⁻¹(96 h,补尿苷后);尿苷补充浓度:5 g L⁻¹
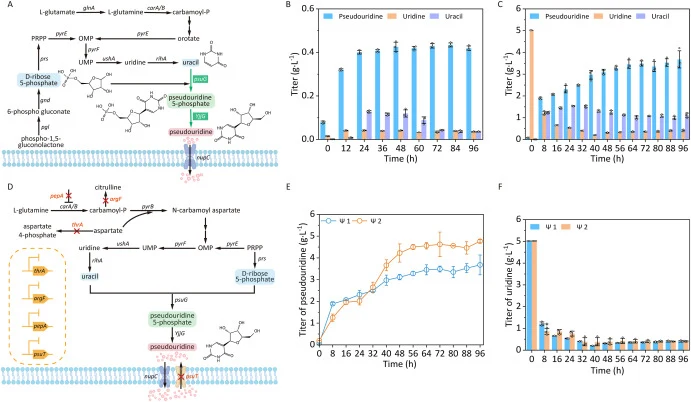
3.2 通过增强胞内尿苷合成和抑制假尿苷转运促进假尿苷生产
天冬氨酸是嘧啶生物合成的关键前体,其可用性增加促进尿嘧啶积累。氨甲酰磷酸合成酶(carA/B)催化谷氨酰胺形成氨甲酰磷酸用于嘧啶合成,受亮氨酰氨基肽酶(pepA)负调控。鸟氨酸氨甲酰转移酶(argF)将氨甲酰磷酸导向瓜氨酸生产。本研究中,敲除天冬氨酸激酶基因thrA以阻断天冬氨酸向L-天冬氨酸-4-磷酸的代谢转化(图2D)。因此,删除pepA和argF基因以增加尿嘧啶积累。此外,假尿苷转运蛋白psuT被失活以防止假尿苷再摄取,促进其胞外积累。在E. coli pRSFDuet-1-YjjG-psuG基础上,通过靶向敲除thrA、psuT、argF和pepA基因构建了E. coli ΔthrAΔpsuTΔargFΔpepA pRSFDuet-1-YjjG-psuG(图2D)。在补充5 g L⁻¹尿苷条件下,工程菌株E. coli ΔthrAΔpsuTΔargFΔpepA pRSFDuet-1-YjjG-psuG在96 h达到4.76 g L⁻¹假尿苷,较对照菌株E. coli pRSFDuet-1-YjjG-psuG(3.68 g L⁻¹)增加1.29倍(图2E)。与对照菌株E. coli pRSFDuet-1-YjjG-psuG相比,E. coli ΔthrAΔpsuTΔargFΔpepA pRSFDuet-1-YjjG-psuG的尿苷水平在96 h稳定在0.4 g L⁻¹(图2F),而尿嘧啶积累增加至1.55 g L⁻¹(图S3)。这些结果表明,增强的尿嘧啶可用性结合阻断的假尿苷转运显著增强了工程菌株E. coli ΔthrAΔpsuTΔargFΔpepA pRSFDuet-1-YjjG-psuG的假尿苷生产。敲除thrA、psuT、argF和pepA基因后,观察到对细胞生长的显著不利影响(图S4D)。这种生长受损主要归因于thrA的缺失,其破坏了苏氨酸和赖氨酸等关键氨基酸的生物合成通量,从而诱导代谢失衡。同时,发现psuT敲除强烈抑制胞外假尿苷的摄取。尽管总假尿苷产量(胞内和胞外合计)从对照菌株E. coli pRSFDuet-1-YjjG-psuG的3.85 g L⁻¹增加至96 h的5.0 g L⁻¹,但胞内假尿苷比例始终较低(<5%)(图S4A),与Zhou等人先前的报道一致。此外,胞内尿苷和尿嘧啶水平几乎检测不到(图S4B和S4C),表明这些代谢物在满足最低生长维持需求后被高效导向假尿苷合成。Zhou等人通过破坏thrA、pepA和argF将大肠杆菌MG1655的假尿苷产量从不可检测水平提升至0.0259 g L⁻¹。随后过表达核心途径酶,结合psuT缺失,进一步将滴度从0.599 g L⁻¹提高至0.642 g L⁻¹。在另一策略中,Wang等人在yjgX基因位点整合nupC基因(受Ptrc启动子控制)以改善尿苷摄取,同时删除psuT以阻断假尿苷外排。这一双重修饰将假尿苷滴度从2.39 g L⁻¹显著提升至3.99 g L⁻¹,证明了转运工程与途径优化相结合的有效性。
【数据】假尿苷产量:4.76 g L⁻¹(96 h,补尿苷)、3.68 g L⁻¹(对照);提升倍数:1.29倍;尿苷水平:0.4 g L⁻¹(96 h);尿嘧啶积累:1.55 g L⁻¹;总假尿苷产量:5.0 g L⁻¹(胞内+胞外,96 h)、3.85 g L⁻¹(对照);胞内假尿苷比例:<5%;敲除基因:thrA、psuT、argF、pepA
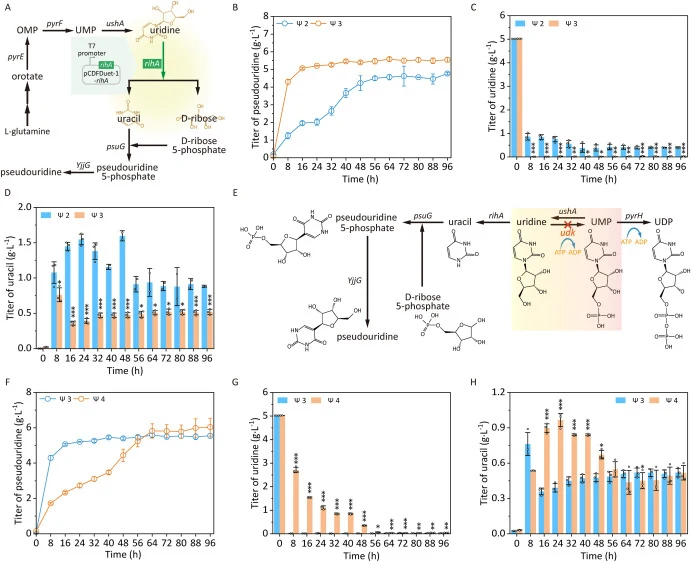
3.3 通过改善尿苷分解代谢增强假尿苷生产
核糖核苷水解酶RihA/B/C参与大肠杆菌中尿苷分解代谢生成核糖-5-磷酸和尿嘧啶。RihC对多种核苷具有广泛底物特异性,而RihA和RihB对尿苷和胞苷表现出优先活性,具有不同的底物亲和力,其中RihA是将尿苷转化为尿嘧啶和D-核糖最高效的水解酶。本研究构建了重组质粒pCDFDuet-1-rihA并转化至E. coli ΔthrAΔpsuTΔargFΔpepA pRSFDuet-1-YjjG-psuG中,生成重组菌株E. coli ΔthrAΔpsuTΔargFΔpepA pRSFDuet-1-YjjG-psuG pCDFDuet-1-rihA(图3A)。RihA过表达显著增强了假尿苷……(原文此处截断)
【数据】过表达基因:rihA;质粒:pCDFDuet-1-rihA;菌株:E. coli ΔthrAΔpsuTΔargFΔpepA pRSFDuet-1-YjjG-psuG pCDFDuet-1-rihA;原文未详述具体产量数值(原文截断)
讨论与解读
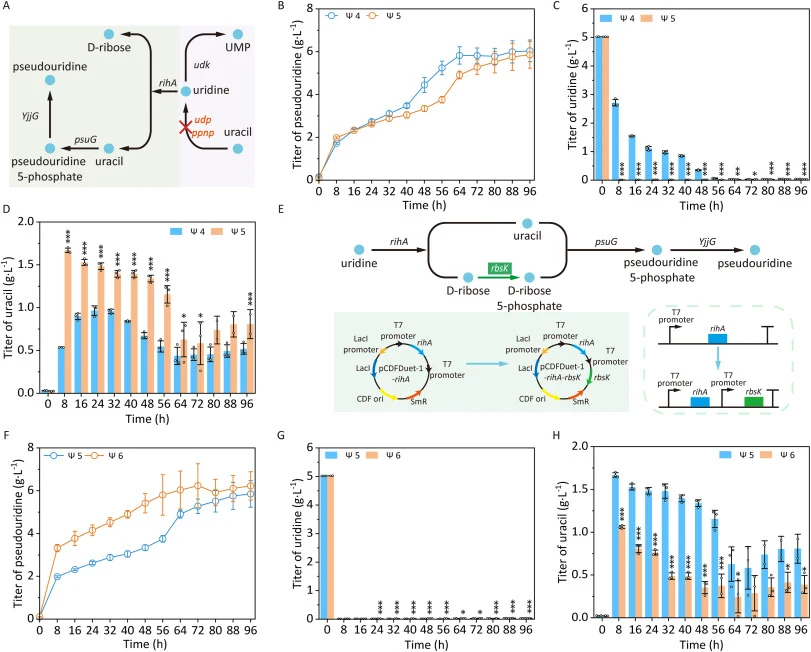
本研究通过系统代谢工程成功构建了高产假尿苷的工程大肠杆菌菌株。关键策略包括:过表达核心生物合成酶基因(psuG和YjjG);靶向敲除竞争途径和转运蛋白基因(thrA、psuT、argF、pepA、udk、udp、ppnp)以重定向代谢通量;通过过表达rihA和rbsK增强前体供给。主要成果如下:(i)建立并强化了基于psuG/YjjG的假尿苷合成途径,尿苷补充显著提升产量;(ii)通过敲除thrA、argF和pepA增加尿嘧啶积累,结合psuT缺失阻断产物再摄取以促进胞外假尿苷积累;(iii)通过rihA过表达增强尿苷水解,通过udk敲除阻止尿苷补救磷酸化,协同将代谢通量导向目标产物;(iv)通过过表达rbsK缓解核糖-5-磷酸限制;(v)摇瓶中两阶段尿苷补料策略将滴度提升至11.34 g L⁻¹;(vi)5-L生物反应器中优化补料分批发酵实现创纪录的102.2 g L⁻¹假尿苷滴度,转化效率超过91%。
编译者解读:该研究的方法论价值在于"分步累加"策略的清晰逻辑——从核心酶过表达起步,依次叠加竞争途径阻断、转运工程、前体强化和补料优化,每一步的增益可量化归因。102.2 g L⁻¹的滴度和>91%的转化率展示了代谢工程在核苷类化合物工业化生产中的潜力。局限在于:thrA敲除导致的生长受损未完全解决,且尿苷补料策略依赖外源添加而非全合成,成本控制仍需评估。
参考来源
期刊:Synthetic and Systems Biotechnology, 2026
DOI: 10.1016/j.synbio.2026.03.013
DOI: 10.1016/j.synbio.2026.03.013