来源:Development of an ultra-sensitive and broadly applicable high-throughput screening platform for nitrilase engineering toward aromatic carboxylic acid synthesis(Process Biochemistry)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
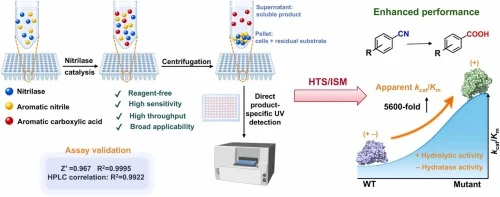
腈水解酶可将腈类直接转化为高价值羧酸,是一条绿色合成路线。但面向难溶性芳香腈的酶工程长期受制于缺乏快速、底物兼容的高通量筛选方法。本研究利用难溶芳香腈底物与其可溶羧酸产物之间的溶解度和光谱差异,开发了一种超灵敏、便捷、广适用的吸光度型高通量筛选平台,并以新鉴定的腈水解酶RmNIT为对象,经分子动力学指导的热点识别与迭代饱和突变,获得最优变体M3-AAE,其表观催化效率提升5600倍,且完全消除了副反应水合活性。
研究背景
腈水解酶能直接将腈转化为相应羧酸和氨,是精细化学品、医药中间体和农药砌块合成中替代传统化学水解的绿色选择。其反应条件温和、选择性高、环境兼容性好,工业应用前景广泛。对于3,4,5-三氯吡啶-2-羧酸(3,4,5-TP-2-CA)这类非手性目标产物,不需要对映选择性,腈水解酶的核心优势在于温和条件下直接转化。
问题在于,天然腈水解酶对大位阻、卤代、难溶的芳香腈往往活性不足、底物谱窄,限制了其在结构复杂芳香羧酸生物合成中的应用。卤代吡啶羧酸是一类重要的杂芳族化合物,广泛用于农药、医药和精细化学品制备。其中3,4,5-TP-2-CA因吡啶环缺电子及多个氯取代而具有特殊价值。卤代吡啶腈对天然腈水解酶普遍是挑战性底物——多数腈水解酶对2-氯烟腈(2-CN)无活性或活性极低,RzNIT水解活性仅2.65 mU mg⁻¹ DCW,水合活性却高达18.60 mU mg⁻¹ DCW;野生型PgNIT在改造前对2-CN活性也很低。因此,亟需新的腈水解酶支架和高效的筛选工具。
研究方法
2.1 试剂与菌株
蛋白胨、酵母提取物和NaCl购自国药集团化学试剂有限公司。卡那霉素购自Oxoid(英国)。异丙基-β-D-硫代半乳糖苷(IPTG)购自阿拉丁(中国上海)。底物3,4,5-三氯吡啶-2-甲腈(3,4,5-TP-2-CN)和3,4,5-三氯吡啶-2-羧酸(3,4,5-TP-2-CA)由Meryer(中国上海)提供。Phanta Max超保真DNA聚合酶购自诺唯赞生物科技股份有限公司(中国南京),Dpn I限制性内切酶购自Thermo Fisher Scientific(美国马萨诸塞州沃尔瑟姆)。质粒提取和PCR产物纯化试剂盒由擎科生物科技有限公司(中国北京)提供。所有其他试剂均为分析纯,未经进一步纯化直接使用。
来自Rhizobium multihospitium的腈水解酶基因(RmNIT,GenBank登录号WP_092720209.1)经密码子优化以在大肠杆菌中异源表达。为便于纯化,在C端引入了6×His标签。合成基因随后克隆至pET-28b(+)表达载体并转化至E. coli BL21(DE3)构建重组表达菌株。
【数据】菌株:E. coli BL21(DE3);载体:pET-28b(+);标签:C端6×His;基因来源:Rhizobium multihospitium;GenBank登录号:WP_092720209.1;卡那霉素浓度:50μg/mL;原文未详述其他试剂用量
2.2 NIT基因的数据库挖掘
以Rhodococcus pyridinivorans来源腈水解酶(RpNIT,登录号WP_138846354.1)的氨基酸序列为查询序列,通过基础局部比对搜索工具(BLAST)从UniProt数据库(https://www.uniprot.org/)检索同源序列。为系统探索序列多样性,使用酶功能计划-酶相似性工具(EFI-EST)生成序列相似性网络(SSN)[21]。所得网络随后用Cytoscape v3.10.3进行可视化和拓扑特征分析[22]。进化分析方面,将与RpNIT聚为一类的代表性序列用MEGA软件进行多序列比对和系统发育树构建[23]。生成的系统发育关系进一步用交互式生命树(iTOL)平台进行可视化和注释[24]。
【数据】查询序列:RpNIT(WP_138846354.1);数据库:UniProt;工具:BLAST、EFI-EST、Cytoscape v3.10.3、MEGA、iTOL;原文未详述具体参数
2.3 蛋白表达与纯化
携带腈水解酶表达构建体的重组大肠杆菌先划线接种于含卡那霉素(50μg/mL)的LB琼脂平板,37 °C过夜培养。挑取单菌落接种至5mL含相同抗生素浓度的LB培养基中,37 °C、180rpm振荡培养10-12h获得种子液。种子液随后转接至新鲜LB培养基,相同条件下培养至600nm光密度(OD₆₀₀)达到0.6-0.8。加入异丙基β-D-1-硫代半乳糖苷(IPTG)至终浓度0.1mM诱导蛋白表达,随后在28 °C继续培养10-12h。离心收集细胞,保存用于后续处理。
为评估重组腈水解酶的表达和溶解性,离心细胞裂解液以分离可溶性上清(Sup)和含包涵体的不溶组分(IB)。不溶沉淀用等体积缓冲液重悬后分析。Sup和IB组分样品与SDS-PAGE上样缓冲液混合,热变性后经十二烷基硫酸钠-聚丙烯酰胺凝胶电泳分离。蛋白条带用考马斯亮蓝染色可视化。
蛋白纯化时,收集的细胞重悬于50mM磷酸缓冲液(pH 7.5)中,冰浴超声破碎。裂解液经离心和过滤澄清后,以1mL/min流速上样至Ni-NTA Superflow亲和柱。用含50mM磷酸缓冲液(pH 7.5)、300mM NaCl和50mM咪唑的洗涤缓冲液去除非特异性结合蛋白。目标His标签腈水解酶用含50mM磷酸缓冲液(pH 7.5)、300mM NaCl和500mM咪唑的洗脱缓冲液洗脱。含纯化蛋白的组分合并后对50mM磷酸缓冲液(pH 7.5)透析,备用。
【数据】卡那霉素:50μg/mL;种子培养:37°C、180rpm、10-12h、5mL LB;诱导OD₆₀₀:0.6-0.8;IPTG:0.1mM;诱导条件:28°C、10-12h;重悬缓冲液:50mM磷酸缓冲液pH 7.5;上样流速:1mL/min;洗涤:50mM磷酸缓冲液pH 7.5+300mM NaCl+50mM咪唑;洗脱:50mM磷酸缓冲液pH 7.5+300mM NaCl+500mM咪唑;透析:50mM磷酸缓冲液pH 7.5
2.4 酶活性与动力学测定
纯化腈水解酶的浓度按试剂盒说明书用二辛可宁酸(BCA)蛋白测定试剂盒测定。全细胞催化活性以干细胞重归一化,表示为mU mg⁻¹ DCW;纯化腈水解酶比活性以纯化蛋白质量归一化,表示为mU mg⁻¹蛋白。
全细胞腈水解酶活性在10mL反应体系中测定,含50mM磷酸钾缓冲液(pH 7.5)、20mM 3,4,5-TP-2-CN和终浓度2mg/mL DCW(干细胞重)的重组E. coli BL21细胞。纯化酶测定在类似条件下进行,使用10mM底物、总反应体积1mL。由于WT RmNIT与M3-AAE催化活性差异巨大,动力学测定使用不同酶浓度以保持产物生成在线性检测范围内:WT RmNIT为100μg/mL,M3-AAE为2μg/mL。所有酶反应在35 °C进行30min,加入10μL 6.0M HCl终止。
初步实验评估了有机溶剂对RmNIT活性的影响。加入5%(v/v)DMSO、5%(v/v)乙腈或5%(v/v)环己烷导致催化活性较无溶剂对照下降约50%。因此后续生物转化和筛选实验不使用有机助溶剂。该无溶剂反应条件也保留了难溶腈底物与相对可溶羧酸产物之间的溶解度差异,这正是吸光度筛选策略的基础。
一个腈水解酶活性单位(U)定义为在指定测定条件下每分钟催化生成1μmol 3,4,5-TP-2-CA所需的酶量。比活性表示为酶单位除以测定所用蛋白量。
反应混合物中3,4,5-TP-2-CA浓度用高效液相色谱(HPLC)定量。色谱分离在C18反相柱(250mm × 4.6mm,5 μm;Welch Materials,中国上海)上进行。流动相为乙腈和0.4%磷酸溶液,体积比30:70,流速1.0mL/min。柱温维持40 °C,检测波长210nm。
为进一步表征反应产物,采用傅里叶变换红外(FT-IR)光谱(Thermo Fisher Scientific,美国)。光谱采集范围4000–500cm⁻¹,每样品35次扫描,扫描速度2mm/s。LC-MS分析使用LTQ-XL质谱系统(Thermo,美国)。LC/MS分析使用反相Phenomenex Gemini 5 μm C6苯基110Å柱(4.6 × 150mm,5 μm粒径)。流动相为乙腈/水(v/v),使用前用NaOH调至pH 10.0。柱温40 °C,流速0.4mL/min。梯度洗脱条件:0-0.5min,乙腈体积2%、水98%;0.5-11min,乙腈体积98%、水2%。对HPLC分析中不对应产物或底物的峰,采用电喷雾正离子模式电离分析物。
动力学分析中,在相同非均相反应条件下评估0至20mM的底物浓度。初始反应速率……
【数据】缓冲液:50mM磷酸钾pH 7.5;全细胞反应:10mL、20mM底物、2mg/mL DCW;纯化酶反应:1mL、10mM底物;WT RmNIT:100μg/mL;M3-AAE:2μg/mL;温度:35°C;时间:30min;终止:10μL 6.0M HCl;有机溶剂:5% DMSO/乙腈/环己烷均使活性下降约50%;HPLC柱:C18 250mm×4.6mm 5μm;流动相:乙腈:0.4%磷酸=30:70;流速:1.0mL/min;柱温:40°C;检测:210nm;FT-IR:4000–500cm⁻¹、35次扫描、2mm/s;LC-MS柱:Phenomenex Gemini 5μm C6苯基110Å 4.6×150mm;流动相pH 10.0;流速0.4mL/min;梯度:0-0.5min乙腈2%、0.5-11min乙腈98%;动力学底物范围:0-20mM
2.5 分子动力学模拟与结构分析
原文未详述。
2.6 易错PCR与定点饱和突变文库构建
原文未详述。
2.7 基于底物特异性吸光度的高通量筛选
原文未详述。
2.8 迭代饱和突变
原文未详述。
研究结果
3.1 面向3,4,5-TP-2-CN活性腈水解酶的筛选与鉴定
本课题组此前开发了序列和结构导向的腈水解酶筛选策略,以已知对结构相关氯代吡啶腈有活性的腈水解酶为探针进行同源挖掘和序列聚类。候选酶随后通过分子对接和基于HMM的序列评估优先排序,再经实验活性验证,鉴定出来自Rhodococcus pyridinivorans的腈水解酶(RpNIT)能将3,6-二氯吡啶-2-甲腈(3,6-DCPN)水解为相应3,6-二氯吡啶-2-羧酸(3,6-DCPA)[37]。
本研究中,我们聚焦于3,4,5-三氯吡啶-2-甲腈(3,4,5-TP-2-CN),一个结构相关但更具挑战性的氯代吡啶腈底物。氯代吡啶腈的催化难度在其他已报道腈水解酶中也有体现。例如,对结构相关的2-氯烟腈(2-CN),大多数腈水解酶无活性或活性极低,RzNIT水解活性仅2.65 mU mg⁻¹ DCW,而水合活性高达18.60 mU mg⁻¹ DCW [38]。类似地,野生型PgNIT在蛋白工程改造前对2-CN活性很低[39]。这些观察进一步表明氯代吡啶腈对天然腈水解酶普遍是挑战性底物。值得注意的是,RpNIT在测试反应条件下对3,4,5-TP-2-CN无可检测催化活性,说明该转化需要新的腈水解酶支架。
为鉴定能水解3,4,5-TP-2-CN的潜在腈水解酶,以RpNIT为探针序列进行基于聚类的序列挖掘[21]。与RpNIT归为同一聚类的腈水解酶序列进一步进行系统发育分析(图1a)。以RpNIT(375个氨基酸)为参考,长度超出325-425个氨基酸范围(约±50个残基)的序列被排除。序列一致性>90%的高度同源序列也被去除。剩余候选腈水解酶与RpNIT的成对序列一致性为40.2%至75.7%,从而在RpNIT相关序列聚类中保留了丰富的序列多样性。过滤后,42个候选腈水解酶序列被选作进一步评估(图1b)。这些候选基于其与RpNIT的序列关系被认为可能与氯代吡啶腈水解相关。
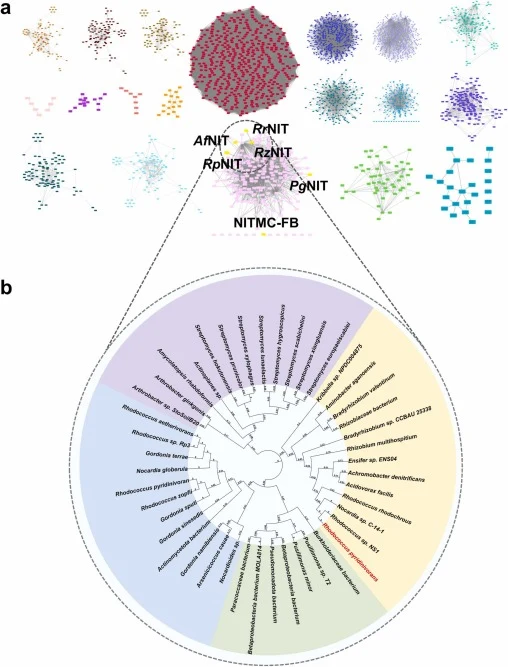
为优先排序候选酶进行实验验证,将分子对接、基于谱的序列评估和催化速率预测整合为互补的排序标准。使用AutoDock Vina将3,4,5-TP-2-CN对接到候选腈水解酶中以评估底物结合兼容性[40]。同时构建隐马尔可夫模型(HMM)评估候选酶的序列保守性和谱相似性[41]。随后获得43个腈水解酶序列的对接分数和HMM分数(图S4a)。此外,使用基于深度学习的模型DLKcat [42]作为辅助工具预测候选酶对3,4,5-TP-2-CN的潜在催化速率常数(k cat)(图S4b和表S1)。基于对接性能、HMM分数和预测k cat的综合评估,选出5个腈水解酶候选进行实验表征。
5个入选腈水解酶分别表达并评估其催化3,4,5-TP-2-CN水解的能力(图2a)。其中仅BbNIT2和RmNIT对3,4,5-TP-2-CN表现出可检测活性,且两酶在测试条件下催化效率均较低(图2b)。除催化活性外,还测定了全部5个候选腈水解酶的熔解温度,作为评估其作为蛋白工程支架适用性的独立标准。对活性候选酶和对3,4,5-TP-2-CN无可检测活性的候选酶均评估了热稳定性,因为高稳定性支架可能对后续活性增强突变提供更大耐受性。基于目标底物活性和热稳定性的综合评估,选择来自Rhizobium multihospitium的腈水解酶(RmNIT)作为后续工程的起始酶。
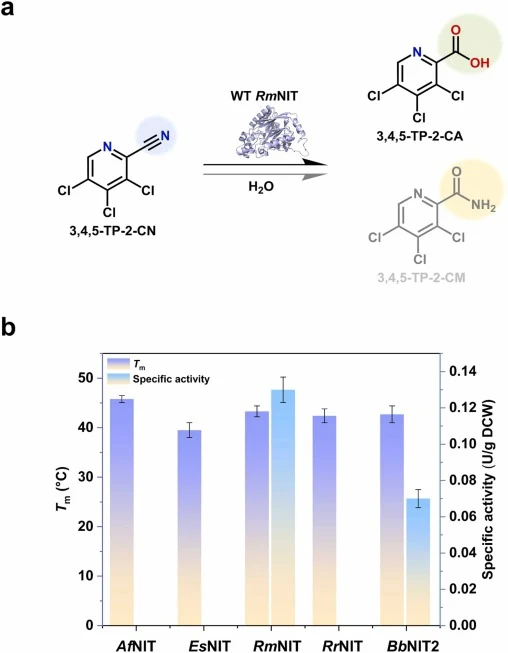
为将RmNIT置于已表征腈水解酶的背景中,将其序列关系和底物偏好与已报道的作用于结构相关芳香腈的酶进行比较。序列比对显示RmNIT与Rhodococcus pyridinivorans来源RpNIT的氨基酸序列相似性为68.8%,后者是本序列挖掘策略中使用的探针序列。RpNIT此前已被表征可水解3,6-二氯吡啶-2-甲腈(3,6-DCPN)为相应羧酸[37]。然而RpNIT在本研究条件下对3,4,5-TP-2-CN无可检测活性,说明相对较高的序列相似性不一定转化为相同的底物特异性。从功能角度看,RmNIT也类似于此前表征的作用于氯代吡啶腈的腈水解酶,包括RzNIT和PgNIT,它们对相关卤代吡啶腈催化活性较低[38,39]。这些比较表明RmNIT属于功能相关的腈水解酶群,能够识别卤代吡啶腈,而其对大位阻3,4,5-TP-2-CN的可检测活性使其与密切相关的已表征酶区分开来,支持其作为进一步工程支架的选择。
尽管野生型RmNIT能催化3,4,5-TP-2-CN转化,但其初始活性仍不足以进行高效全细胞生物转化。因此需要通过蛋白工程大幅提升活性。由于此类工程涉及大量突变体的构建和筛选,快速可靠的活性测定至关重要。HPLC分析能准确定量3,4,5-三氯吡啶-2-羧酸生成,但通量低,不适合大规模突变体文库的初筛。此外,常用的基于pH指示剂或氨检测的高通量测定不直接适用于该难溶芳香腈反应体系。这些限制促使我们建立针对该反应的高通量测定方法以筛选RmNIT变体。
【数据】RpNIT对3,4,5-TP-2-CN:无可检测活性;RzNIT对2-CN:水解活性2.65 mU mg⁻¹ DCW、水合活性18.60 mU mg⁻¹ DCW;RmNIT与RpNIT序列相似性:68.8%;候选序列一致性范围:40.2%-75.7%;氨基酸长度筛选范围:325-425 aa(RpNIT为375 aa);候选序列数:42个(含RpNIT共43个);入选实验表征:5个;有活性:BbNIT2和RmNIT
3.2 基于吸光度的RmNIT活性筛选高通量测定方法的建立
基于pH敏感指示剂[15]和氨检测[16]的高通量筛选方法已广泛用于评估腈水解酶活性。然而这些通用测定不一定适用于所有腈水解酶催化反应,特别是当目标底物水溶性差或全细胞反应背景干扰信号检测时(图3)。由于3,4,5-TP-2-CN水溶性极差,反应体系中实际溶解和生物可利用的底物浓度可能远低于标称底物浓度。在此条件下,野生型RmNIT的表观活性可能受底物溶解、传质和对大位阻芳香腈底物内在催化效率的综合影响。因此,初始反应阶段仅生成低水平羧酸产物和氨。这种微弱的产物……
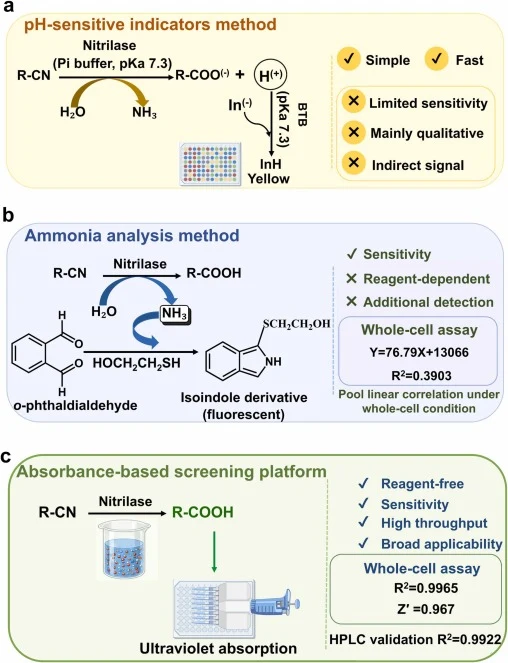
【数据】3,4,5-TP-2-CN:水溶性极差;原文未详述具体溶解度数值
3.3 基于底物特异性吸光度的高通量筛选策略的验证与普适性
原文未详述。
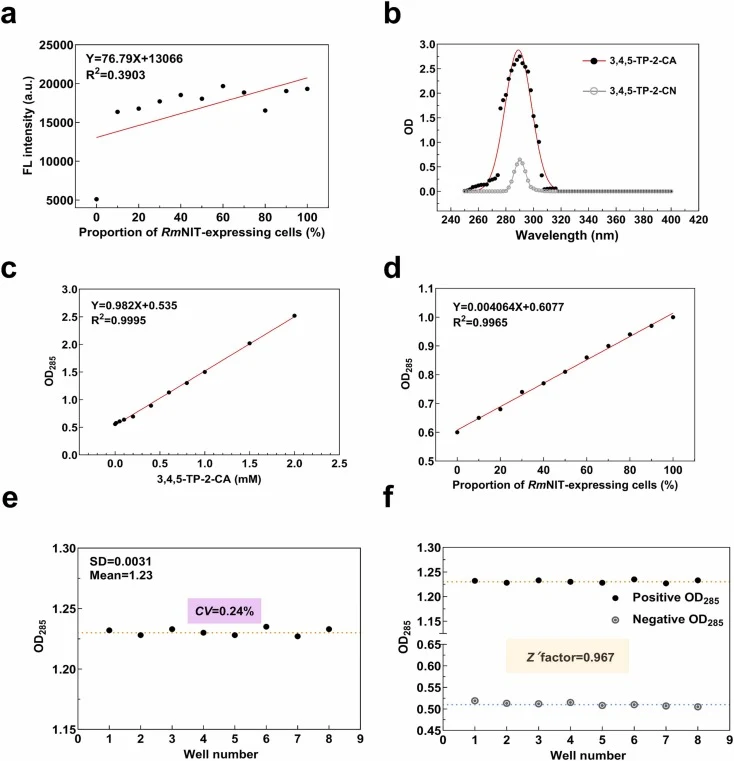
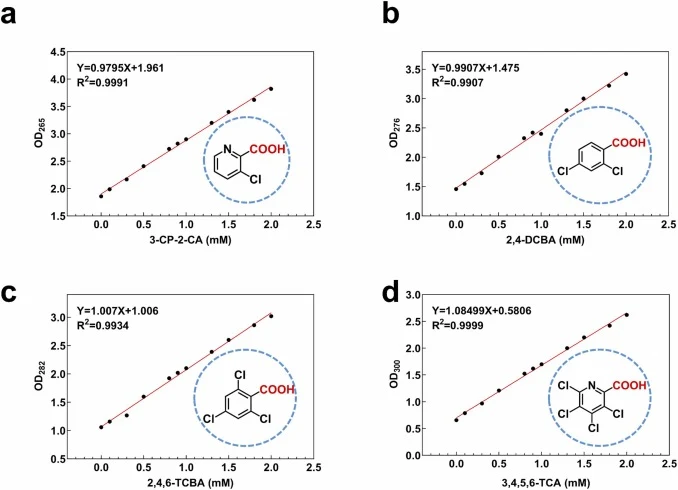
3.4 基于底物特异性吸光度高通量筛选的热点筛选
原文未详述。
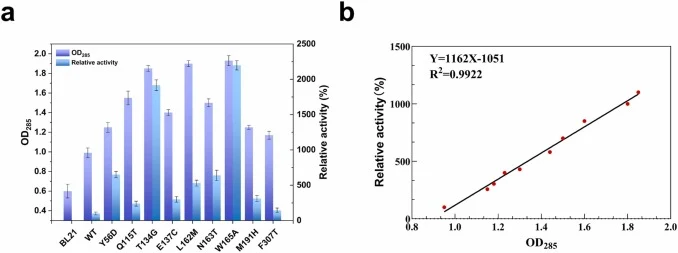
3.5 通过迭代饱和突变鉴定和表征最优RmNIT变体
原文未详述。
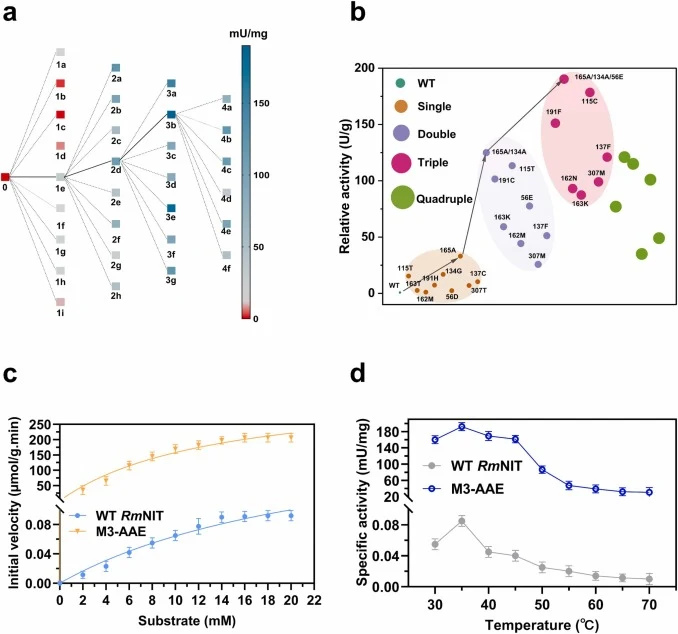
3.6 M3-AAE催化性能增强的结构与机制解析
原文未详述。
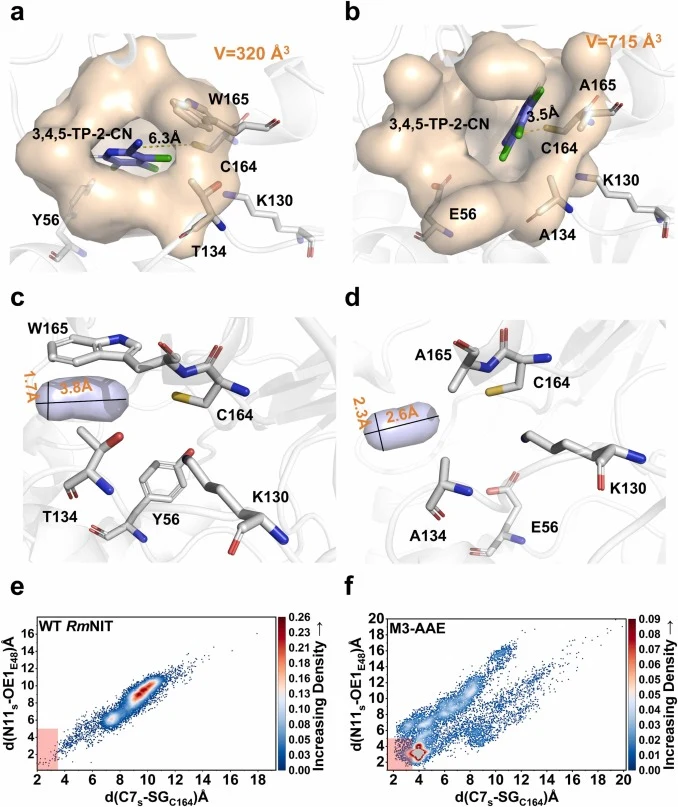
讨论与解读
本研究鉴定了一个能催化3,4,5-三氯吡啶-2-甲腈(3,4,5-TP-2-CN)水解的新型腈水解酶RmNIT,并对其进行了工程改造以增强催化性能。研究开发了基于底物特异性吸光度的高通量筛选策略,实现了对难溶芳香腈腈水解酶变体的快速可靠筛选。通过分子动力学指导的热点预测和迭代饱和突变,获得优化突变体M3-AAE,其表观催化效率(k cat/K m)提升5600倍,并完全消除了不需要的水合活性。机制分析揭示催化增强源于催化口袋重塑、底物通道优化、有利底物取向和增强结合亲和力的协同效应。总体而言,该工作为面向挑战性芳香腈底物的高性能腈水解酶开发提供了有效的工程策略和通用筛选平台。
编译者解读:该研究的核心贡献在于将"底物难溶"这一传统劣势转化为筛选信号来源——利用底物与产物之间的溶解度差异和光谱差异建立吸光度测定,绕开了pH指示剂和氨检测在难溶芳香腈体系中的失灵。5600倍的催化效率提升和副反应水合活性的完全消除,说明该筛选平台确实能富集到高质量变体。局限在于,该策略依赖底物与产物在特定波长下存在足够大的吸光度差异,对光谱重叠严重的底物对可能不适用;此外筛选平台目前仅在RmNIT及少数芳香腈上验证,向更广泛腈水解酶家族推广时需逐一确认底物-产物光谱窗口。
参考来源
期刊:Process Biochemistry, 2026
DOI: 10.1016/j.procbio.2026.09.019
DOI: 10.1016/j.procbio.2026.09.019