来源:Targeted identification of new phaterpenes and elucidation of the relevant biosynthetic pathway in Streptomyces phaeochromogenes OSK-123(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
放线菌基因组中蕴藏着大量沉默的天然产物生物合成基因簇,如何高效唤醒并定向识别其产物一直是天然产物发现领域的核心难题。本研究以土壤来源的Streptomyces phaeochromogenes OSK-123为对象,通过基因组挖掘锁定了一个约18 kb的新型萜类基因簇pha,利用强启动子替换策略成功激活其表达,结合RT-qPCR与LC-ESI-MS分析,从中分离鉴定了四个新的6/5-稠合双环倍半萜类化合物phaterpene A–D,并进一步通过异源表达和基因敲除阐明了完整的生物合成途径。
研究背景
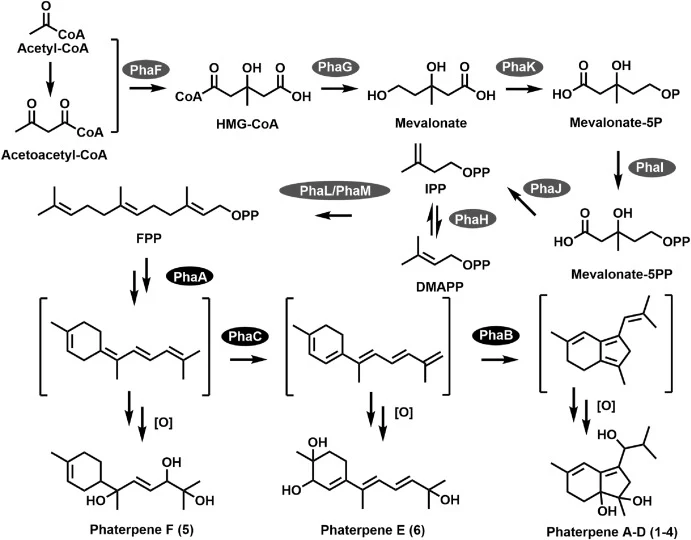
倍半萜类化合物广泛存在于植物、动物和微生物中。其结构多样性源于骨架和立体化学的丰富变化,这赋予了它们广泛的生物活性以及与多种分子靶标相互作用的能力。按环数可分为线型、单环、双环和三环等类型,也可按碳骨架特征归类为没药烷型、蛇麻烷型、吉玛烷型等。从应用角度看,倍半萜是医药、化妆品和农业等多个行业的重要化合物,典型代表包括抗疟药物青蒿素、化妆品成分(−)-epi-α-红没药醇以及除草剂aspterric acid。所有萜类化合物无论结构多么复杂,均源自通用的C5前体异戊烯基二磷酸(IPP)和二甲基烯丙基二磷酸(DMAPP),后者通过甲羟戊酸(MVA)途径合成。萜类结构的巨大多样性归因于其复杂而灵活的生物合成路径,而细菌基因组中大量未表征的萜类基因簇为发现新化合物提供了广阔空间。
研究方法
2.1 菌株、质粒与培养基
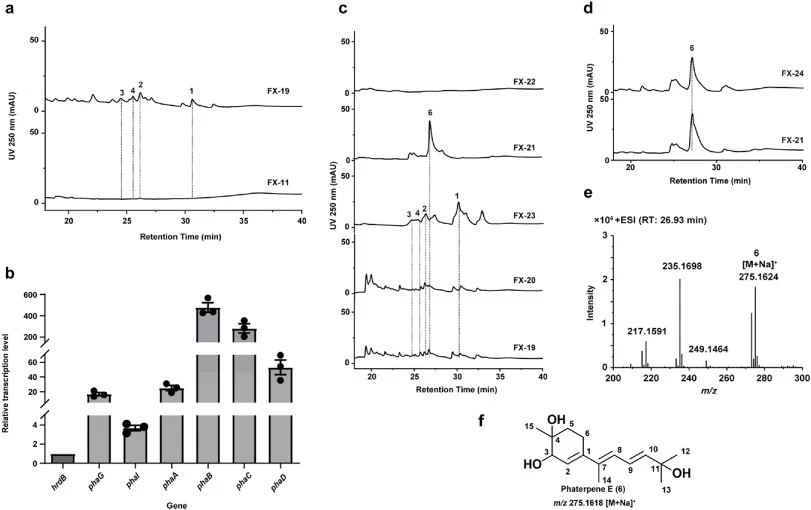
菌株、质粒、引物和培养基的详细信息见补充表1–4。OSK-123作为含有pha-BGC的野生型菌株,而S. albus J1074作为表达该基因簇的异源宿主。FX-1和FX-19用于生产phaterpene A–D(1–4),FX-20、FX-21、FX-22、FX-23和FX-24用于分析phaterpene的生物合成。此外,FX-21用于生产phaterpene E(6)。E. coli菌株DH10B、ET12567(pUZ8002)、GB08-red和BL21(DE3)分别作为基因克隆、接合转移、基因敲除和蛋白表达的宿主。游离型载体pJTU1278及其衍生质粒用于启动子替换。整合型载体pSET152及其衍生质粒用于异源表达和基因功能分析。载体pET21a及其衍生质粒(包括pMH1和pFZ81)用于蛋白功能表征。FX-30用于生产phaterpene F(5)。
【数据】菌株:OSK-123(野生型)、S. albus J1074(异源宿主)、FX-1、FX-19、FX-20–FX-24、FX-30;质粒:pJTU1278、pSET152、pET21a、pMH1、pFZ81;培养基:原文未详述具体配方
2.2 菌株OSK-123的分离与16S rDNA鉴定
菌株OSK-123于2022年从中国福建省东山岛(23°44′59″ N, 117°30′4″ E)的土壤中分离。土壤样品收集于纸袋中并避光保存。将收集的土壤与无菌水混合,然后涂布于添加了制霉菌素(50 μg/mL;真菌生长抑制剂)和萘啶酸(50 μg/mL;革兰氏阴性菌生长抑制剂)的ISP2琼脂培养基平板表面。培养平板在30 °C下孵育7天,通过连续传代纯化获得OSK-123。分离菌株以20%(v/v)甘油保存于−80 °C。使用GENEray™细菌基因组DNA提取试剂盒按照制造商方案从菌株OSK-123中提取基因组DNA,并作为模板用引物27F和1492R进行PCR扩增。扩增产物经测序后,将所得序列与GenBank数据库中的序列进行比对。
【数据】土壤来源:福建东山岛(23°44′59″ N, 117°30′4″ E);分离年份:2022;制霉菌素:50 μg/mL;萘啶酸:50 μg/mL;培养温度:30°C;培养时间:7天;保存条件:20%甘油,−80°C;引物:27F、1492R
2.3 基因组测序与生物信息学分析
将OSK-123孢子接种于TSBY液体培养基中,在30 °C、220 rpm条件下振荡培养2天。收集所得细菌细胞并送至上海派森诺生物科技有限公司进行全基因组测序,同时使用Illumina NovaSeq(二代)和Oxford Nanopore ONT(三代)平台。所得reads使用HGAP v4和CANU v1.7.1进行组装,生成完整基因组序列。完整基因组序列已提交至国家微生物科学数据中心(https://nmdc.cn/resource/genomics/sequence/detail/NMDCN0005RCV)。本研究使用以下在线工具和数据库:次级代谢产物预测工具antiSMASH细菌版8.0.1(https://antismash.secondarymetabolites.org/);生物合成基因簇家族数据库BiG-FAM(https://bigfam.bioinformatics.nl/);EFI-Enzyme相似性工具和序列相似性网络(SSN)版本2025_02/105(https://efi.igb.illinois.edu/efi-est/);以及生物合成基因簇最小信息标准(MIBiG)版本4.0(https://mibig.secondarymetabolites.org/)。
【数据】培养基:TSBY液体培养基;温度:30°C;转速:220 rpm;时间:2天;测序平台:Illumina NovaSeq、Oxford Nanopore ONT;组装软件:HGAP v4、CANU v1.7.1;数据库版本:antiSMASH 8.0.1、BiG-FAM、SSN 2025_02/105、MIBiG 4.0
2.4 菌株OSK-123和*S. albus* J1074的发酵
细菌在SFM琼脂培养基平板上维持4–5天。取一块含细菌细胞的2 cm²琼脂块用于制备30 mL TSBY种子培养液,在30 °C、220 rpm条件下培养2天。随后,将10%的种子培养液转移至30 mL R5发酵培养基中,在30 °C、220 rpm条件下培养7天。对于大规模发酵,将20 mL种子培养液均匀涂布于灭菌不锈钢盘中的1 L R5琼脂培养基上,在超净台中干燥。突变体(如FX-1和FX-21)在30 °C下孵育7天。
【数据】培养基:SFM琼脂、TSBY种子液、R5发酵培养基;琼脂块:2 cm²;种子液体积:30 mL;接种量:10%;发酵体积:30 mL;温度:30°C;转速:220 rpm;种子培养时间:2天;发酵时间:7天;大规模发酵:20 mL种子液/1 L R5琼脂
2.5 菌株OSK-123中基因簇的启动子替换
为替换pha-BGC启动子,使用针对菌株OSK-123基因组设计的相应引物通过PCR扩增同源侧翼序列(1-L和1-R),然后克隆至pJTU1278载体中。随后,将含有强启动子(stnYp和kasOp)及阿普拉霉素抗性基因aac(3)IV的DNA片段插入载体中,构建pLQ1501,并通过测序验证。将重组质粒转化至E. coli* ET12567/pUZ8002细胞中,然后通过属间接合转移导入菌株OSK-123。在非选择性SFM培养基平板上生长两轮后,将对阿普拉霉素具有抗性的突变株在SFM琼脂培养基平板上培养,并通过PCR验证。
【数据】载体:pJTU1278;强启动子:stnYp、kasOp;抗性基因:aac(3)IV(阿普拉霉素抗性);接合供体:E. coli* ET12567/pUZ8002;筛选抗生素:阿普拉霉素;验证方法:PCR;培养基:SFM
2.6 *E. coli*与OSK-123或*S. albus* J1074之间的属间接合转移
含有重组质粒的E. coli ET12567/pUZ8002细胞在37 °C下于添加了50 mg/L阿普拉霉素、25 mg/L氯霉素和50 mg/L卡那霉素的LB培养基中过夜培养。将过夜培养物以1/100(v/v)接种至新鲜LB培养基中,培养至600 nm处光密度(OD600)达到0.4–0.6。细胞用新鲜LB培养基洗涤三次,并重悬于等体积LB培养基中。菌株OSK-123在SFM培养基平板上生长8–10天。用棉签收集孢子,然后悬浮于0.05 mol/L TES缓冲液中。随后通过无菌棉花过滤去除菌丝体,再用TES缓冲液洗涤三次,重悬于2×YT培养基中。在50 °C热激处理10分钟后,加入1 μL 5 mol/L CaCl₂,然后在37 °C下孵育2.5小时。接着,将0.5 mL孢子和0.5 mL E. coli细胞混合,涂布于含20 mM MgCl₂的SFM琼脂培养基平板上,在30 °C下孵育16–20小时,然后将0.8 mL含1 mg阿普拉霉素和1 mg甲氧苄啶的无菌水涂布于培养基表面。平板在30 °C下继续孵育5–7天。
【数据】抗生素浓度:阿普拉霉素50 mg/L、氯霉素25 mg/L、卡那霉素50 mg/L;接种比例:1/100(v/v);OD600:0.4–0.6;TES缓冲液:0.05 mol/L;热激温度:50°C;热激时间:10 min;CaCl₂:1 μL 5 mol/L;孵育温度:37°C;孵育时间:2.5 h;孢子体积:0.5 mL;E. coli体积:0.5 mL;MgCl₂:20 mM;接合孵育:30°C,16–20 h;筛选抗生素:1 mg阿普拉霉素+1 mg甲氧苄啶;后续孵育:30°C,5–7天
2.7 *pha*基因簇在*S. albus* J1074中的异源表达
为异源表达pha基因簇,进行PCR扩增并使用pSET152生成携带pha基因簇及强启动子stnYp和kasOp*的重组质粒pLQ1512。随后的属间接合转移采用与OSK-123相同的程序。将对阿普拉霉素具有抗性的阳性突变株在SFM琼脂培养基平板上培养,并通过PCR验证。
【数据】载体:pSET152;重组质粒:pLQ1512;强启动子:stnYp、kasOp*;筛选抗生素:阿普拉霉素;验证方法:PCR;培养基:SFM
2.8 相关化合物的HPLC和LC-HRMS分析
天然产物的相对丰度通过HPLC(Agilent 1260系列,Agilent Technologies,美国)测定,检测波长为210或250 nm。分子量使用HPLC-飞行时间质谱(HPLC-TOF/MS)系统(Agilent 1290–6230 TOF)分析;使用相同的HPLC方法,正离子模式检测。HPLC和LC-MS分析使用以下条件:色谱柱,Agilent Eclipse XDB-C18柱(4.6 × 250 mm, 5 μm);流速,0.5 mL/min;进样体积,10 μL;线性梯度,H₂O:MeOH = 90:10,在30 min时达到H₂O:MeOH = 0:100并保持至35.0 min,然后在35.01 min恢复至H₂O:MeOH = 90:10并平衡5.0–40 min。
【数据】HPLC型号:Agilent 1260;检测波长:210或250 nm;质谱系统:Agilent 1290–6230 TOF;色谱柱:Agilent Eclipse XDB-C18(4.6 × 250 mm, 5 μm);流速:0.5 mL/min;进样体积:10 μL;梯度:H₂O:MeOH 90:10→0:100(30 min),保持至35.0 min,35.01 min恢复,平衡5.0–40 min
2.9 Phaterpene A–E的提取与纯化
将突变株FX-1或FX-21的大规模发酵产物(20 L)切成2 cm²小块,用甲醇提取六次。向固体残渣中加水后,再用乙酸乙酯提取六次。合并所有提取物,使用旋转蒸发仪在真空条件下蒸干。所得粗发酵产物首先使用MCI GEL CHP20以及30%、50%、70%和100%甲醇(各1 L)进行初步分离。通过HPLC检测相关产物。收集的样品随后使用Sephadex LH-20以适当的MeOH:H₂O比例进行纯化。通过HPLC检测相关产物。最后,使用制备型……
【数据】发酵规模:20 L;提取溶剂:甲醇(6次)、乙酸乙酯(6次);初步分离:MCI GEL CHP20;甲醇梯度:30%、50%、70%、100%(各1 L);纯化:Sephadex LH-20;检测方法:HPLC
研究结果
3.1 *pha*基因簇推定编码新的倍半萜类化合物
菌株OSK-123从土壤样品中分离,根据16S rDNA序列相似性分析结果鉴定为S. phaeochromogenes。全基因组测序数据揭示其基因组由11.5 Mbp组成,包含9,833个预测基因。次级代谢产物预测软件antiSMASH细菌版8.0.1 [42]在该菌株中鉴定出约35个推定的BGC,其中约三分之二被预测与未知产物相关(图1a和补充表5)。具体而言,一个含有MVA途径基因的萜类相关基因簇被命名为pha-BGC,跨越约18 kb的DNA区域,包含14个开放阅读框(图1b)。对pha-BGC与BiG-FAM数据库[43]中序列的详细相似性分析结合基因簇可视化[44]表明,除其他Streptomyces物种中的该基因簇本身外,不存在高度相似的基因簇,提示pha-BGC编码与新型化合物相关的蛋白(补充图1)。pha-BGC基因的功能注释表明它们可能编码以下蛋白:PhaA,TPS;PhaB和PhaC,原卟啉原/粪卟啉原氧化酶;PhaD,细胞色素P450;PhaL和PhaM,聚异戊烯基合成酶;PhaF–PhaK,MVA途径蛋白;PhaN,假设蛋白;PhaE,3-氧代酰基-ACP合成酶(补充表6)。对选定蛋白序列(PhaA、PhaB和PhaC)与MIBiG数据库[45]中蛋白的比较分析显示序列相似性较低(补充表7)。根据SSN分析[46,47],PhaA与另外两个蛋白形成一个小型孤立簇。类似地,生物合成酶PhaB和PhaC也各自独特聚类(补充图2)。含有编码这些蛋白的基因的NP-BGC仍未被表征。这些发现表明这些功能基因可能负责新倍半萜的生物合成。因此,基于完整基因簇和关键生物合成基因的比较分析,我们确定pha-BGC编码与感兴趣的新型化合物相关的蛋白。
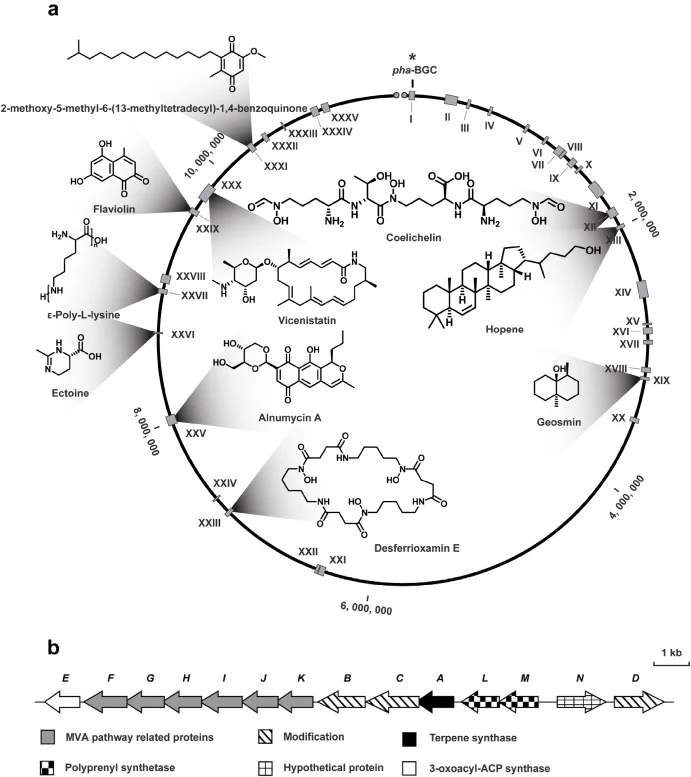
【数据】基因组大小:11.5 Mbp;预测基因数:9,833;推定BGC数:约35个;未知产物相关比例:约2/3;pha-BGC大小:约18 kb;ORF数:14;软件版本:antiSMASH 8.0.1
3.2 强启动子替换唤醒*pha*-BGC表达
由于缺乏与pha-BGC基因相关化合物的化学结构信息,通过色谱或光谱方法难以在OSK-123培养物中检测和鉴定目标化合物。进行了启动子替换实验以增强pha-BGC功能基因的转录,从而提高OSK-123培养液中目标产物的产量。更具体地说,通过同源重组将强启动子stnYp和kasOp添加到phaM和phaN之间的基因间区域。其中,stnYp位于phaM上游,控制phaM及下游基因的转录。相比之下,kasOp位于phaN上游,控制phaN及下游基因的转录。此外,将acc(3)IV插入stnYp和kasOp之间的连接处,以便于接合实验中衍生菌株的筛选。所得突变体通过PCR验证(1.60 kb产物),命名为FX-1。野生型菌株OSK-123的相应PCR扩增产生0.58 kb产物(图2a和2b)。比较了FX-1和OSK-123的发酵提取物。两株菌均在10种不同液体培养基(补充表4)中于30 °C、220 rpm振荡培养7天。发酵后获得粗提物,使用XDB-C18色谱柱进行分析(补充图4a和4b)。对于R5培养基发酵,在突变株FX-1中于20–35 min保留时间范围内清晰观察到一系列峰,而菌株OSK-123中未观察到(图2c)。在LC-ESI-MS图谱中,所有峰的分子量均为252.1725,表明检测到的化合物以异构体形式存在(图2e、2f、2g和2h)。为确定R5培养基发酵过程中pha-BGC功能基因的转录水平,对FX-1和OSK-123进行了比较RT-qPCR分析。选择MVA途径中的若干基因以及TPS基因phaA和修饰基因phaB、phaC和phaD进行RT-qPCR分析。这些基因在FX-1中的转录水平显著高于OSK-123(图2d),这与LC-ESI-MS结果一致。值得注意的是,关键生物合成基因在OSK-123中转录水平极低,表明pha*-BGC在标准实验室条件下处于沉默状态。因此,通过LC-ESI-MS结合RT-qPCR对OSK-123和FX-1不同发酵提取物进行比较分析,有助于检测新化合物。
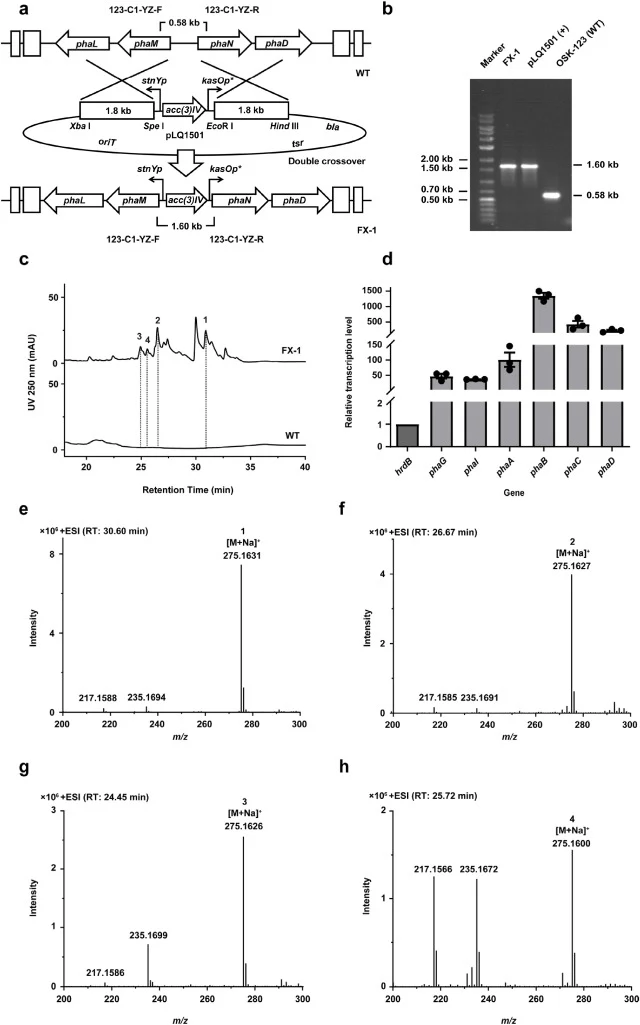
【数据】强启动子:stnYp、kasOp;插入位点:phaM和phaN之间;抗性基因:acc(3)IV;突变株PCR产物:1.60 kb;野生型PCR产物:0.58 kb;发酵培养基数:10种;培养温度:30°C;转速:220 rpm;培养时间:7天;化合物分子量:252.1725;保留时间:20–35 min;RT-qPCR靶基因:MVA途径基因、phaA、phaB、phaC、phaD*
3.3 新phaterpene A–D的分离与结构解析
LC-ESI-MS检测到的几乎所有峰都具有相同的分子量(252.1725),这意味着这些化合物是一系列异构体,使其纯化相对困难。为阐明新化合物的化学结构,制备了20 L R5琼脂培养基的菌株FX-1培养物。发酵后,收集平板中的R5琼脂培养基用甲醇提取。粗提物用乙酸乙酯分配,然后有机层在真空条件下浓缩得到最终提取物。制备的样品随后使用MCI GEL CHP20、Sephadex LH-20和制备型液相色谱分离,纯化得到化合物1(28.1 mg)、2(23.5 mg)、3(5.3 mg)和4(3.2 mg)。最后,基于1D和2D NMR波谱及HRMS阐明了它们的化学结构(图3a)。化合物1为白色固体粉末。其分子式C₁₅H₂₄O₃由HR-ESI-MS数据推导:m/z 275.1631([M + Na]⁺, C₁₅H₂₄O₃Na⁺,计算值275.1618),表明有四个不饱和度。特征UV吸收波长见补充图18a。化合物1的¹H NMR谱(600 MHz, CDCl₃)包括四个甲基信号[1.78 (s), 1.14 (s), 0.96 (d, J = 5.17), 和0.67 (d, J = 5.45)],一个烯烃质子信号[6.01 (s)],一个羟基质子信号[4.01 (d, J = 8.75 Hz)],以及其他与结构一致的其他质子信号。¹³C NMR谱(150 MHz, CDCl₃)包括15个碳信号,其中四个甲基信号[22.94 (C-11); 22.51 (C-10); 17.97 (C-14); 和17.79 (C-15)],三个亚甲基信号[44.12 (C-7); 27.07 (C-3); 和25.38 (C-4)],一个次甲基信号[31.16 (C-13)],四个烯烃碳信号[139.32 (C-2); 135.40 (C-9); 135.20 (C-8); 和115.01 (C-1)],以及三个含氧碳信号[79.46 (C-5); 76.87 (C-6); 和72.51 (C-12)],这些都是倍半萜骨架的特征。在HMBC谱中,H-1与C-2、C-3、C-5、C-9和C-10之间的相关性以及H-4a与C-2、C-3、C-5、C-6和C-9之间的相关性反映了六元环与五元环稠合骨架的存在。C-8处异丁醇基团的部分结构由HMBC(H-9和H-10与C8相关)和¹H–¹H COSY(H-10与H-9、H-14和H15相关)确定。根据NOESY分析,三个相关性(H-12与H-15,H-7a与H-15,H-7b与H-11)提供了以下信息:H-12、H-15和H-7a处的质子信号位于同一方向,而H-11、H-7b和H-14位于另一方向(图3c)。因此,基于其化学结构的1D和2D NMR谱(补充图12和补充表9),化合物1被鉴定为新化合物,命名为phaterpene A(1)(图3b)。化合物2在物理和光谱特征方面与化合物1相似。根据HR-ESI-MS数据,它也具有相同的分子式(C₁₅H₂₄O₃):m/z 275.1631([M + Na]⁺……
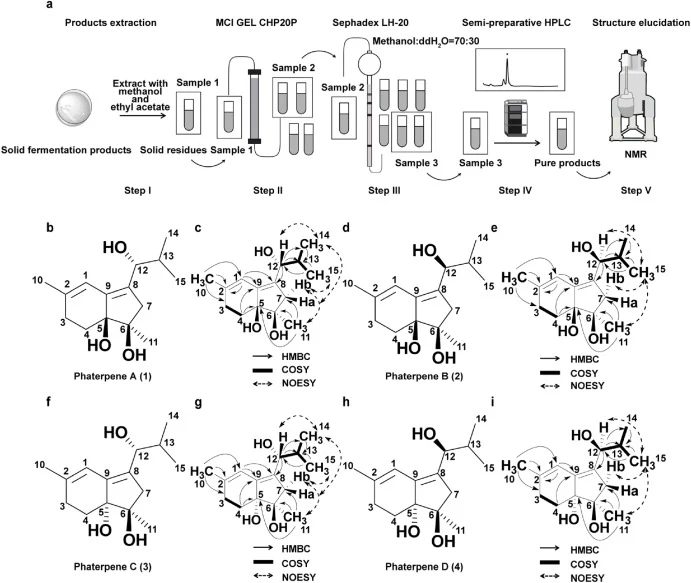
【数据】发酵规模:20 L R5琼脂;化合物1产量:28.1 mg;化合物2产量:23.5 mg;化合物3产量:5.3 mg;化合物4产量:3.2 mg;化合物1分子式:C₁₅H₂₄O₃;HR-ESI-MS:m/z 275.1631([M + Na]⁺,计算值275.1618);不饱和度:4;NMR:¹H 600 MHz,¹³C 150 MHz,CDCl₃
3.4 萜类合成酶PhaA的功能验证
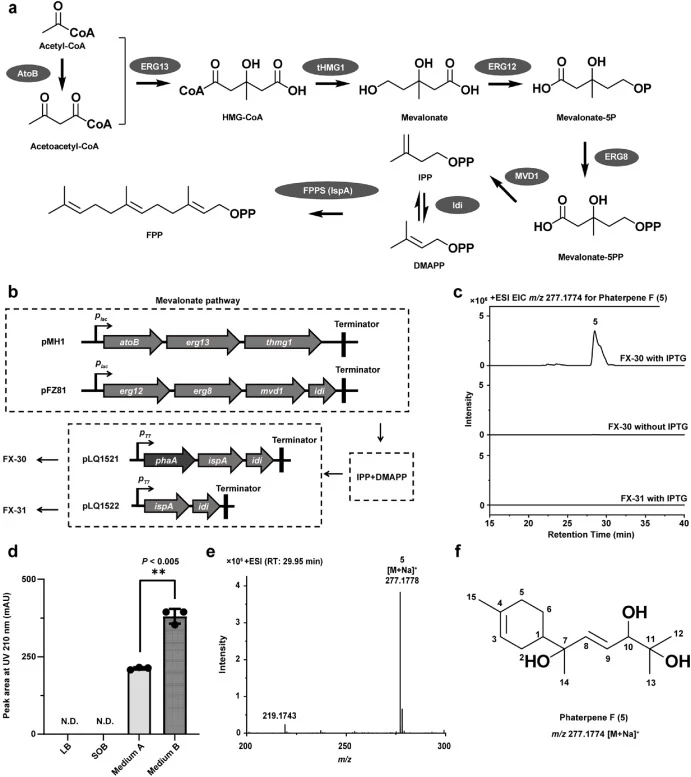
3.5 Phaterpene E的鉴定与结构解析
3.6 Phaterpene生物合成途径
讨论与解读
可用的基因组测序方法、生物信息学工具以及多种沉默NP-BGC的技术极大促进了细菌中许多新生物活性天然产物的检测和鉴定。放线菌染色体本身富含NP-BGC,其有价值的新天然产物已被分析,并针对这些菌株开发了多种基因工程方法。然而,在化学表型与相应NP-BGC遗传信息之间建立直接联系一直是靶向鉴定新天然产物的挑战。对菌株OSK-123的antiSMASH分析鉴定了一个新的萜类BGC,但该BGC衍生的代谢产物未被检测到。对pha-BGC启动子的靶向工程改造以及野生型菌株与突变株之间功能基因转录水平和LC-ESI-MS图谱的比较,揭示了四个新的6/5-稠合双环倍半萜化合物,即phaterpene A–D(1–4)。因此,结合多种研究策略有助于新天然产物的靶向检测和鉴定。链霉菌中复杂的代谢调控网络控制着NP-BGC的表达。作为遗传可操作的模型属,链霉菌非常适合启动子工程。用一组强启动子替换天然启动子以增强沉默基因簇的转录是激活沉默基因簇的有效策略。本研究通过整合基因组挖掘、启动子工程、比较代谢组学分析和异源表达等多种技术手段,成功从一株土壤来源的链霉菌中发掘了四个新倍半萜化合物,并完整解析了其生物合成途径。
编译者解读:
该研究的核心策略在于"先激活、后追踪"——通过强启动子替换将沉默基因簇的转录水平拉高,再利用LC-ESI-MS与RT-qPCR的联合分析锁定目标产物。这一"多管线整合"思路对合成生物学中沉默基因簇的高通量挖掘具有直接参考价值。PhaA作为萜类合成酶在E. coli中即可催化六元环倍半萜骨架形成,显示了该酶较好的可移植性。不过,研究目前仅完成了途径解析的框架搭建,各修饰酶(如PhaB/C/D)的催化机制和底物特异性尚未深入表征,产量也停留在毫克级,距离工程化生产仍有较大优化空间。
参考来源
- 期刊:Synthetic and Systems Biotechnology, 2026
- DOI: 10.1016/j.synbio.2026.01.010
- 作者:Xing Fan
DOI: 10.1016/j.synbio.2026.01.010