来源:Overcoming protocatechuate and catechol accumulation in muconic acid production via adaptive laboratory evolution and metabolic engineering in Pseudomonas putida(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
粘康酸是一种可由糖类和木质素、塑料来源芳香化合物生物合成的工业平台分子。当工程菌利用AroY进行原儿茶酸(PCA)脱羧时,PCA积累问题在多株微生物中反复出现,引发了一个关键疑问:PCA脱羧是否为限速步骤?本研究对原本设计用于从芳香化合物生产粘康酸的恶臭假单胞菌进行适应性实验室进化(ALE),意外发现主要受益突变集中于编码邻苯二酚1,2-双加氧酶的catA1基因盒,而非aroY或其辅因子合成基因。转录组、定量蛋白质组与生化分析表明,CatA1蛋白丰度提升是表型改善的主要驱动力。这一结果修正了人们对AroY途径限速步骤的既有认知。
研究背景
粘康酸(顺,顺-粘康酸)已被广泛确立为一种平台化学品,可通过多种微生物的邻苯二酚分解代谢途径高效获取。从发酵液中分离后,粘康酸可经催化转化为己二酸、己二腈、己内酰胺等直接替代化学品,或转化为性能优势聚合物。传统化学生产方法能耗高、温室气体排放量大,生物基路线有望提供更可持续的替代方案。自Draths和Frost在大肠杆菌中实现从葡萄糖生物合成粘康酸的开创性工作以来,该化合物已在多种细菌和酵母中实现生物生产。然而,当使用PCA脱羧酶AroY时,多株工程微生物中均观察到PCA积累。考虑到PCA和邻苯二酚中间体的毒性与反应性,PCA脱羧是否构成限速步骤、如何缓解这一瓶颈,成为亟待解答的问题。
研究方法
5.1 菌株构建与培养
#### 5.1.1 菌株与质粒构建
本研究构建的细菌菌株列于表1,构建细节见表S2。质粒列于表S3,寡核苷酸列于表S4。表S3中部分质粒由Twist Biosciences合成。其余质粒在实验室内构建,使用Q5® High-Fidelity 2X Master Mix(New England Biolabs, NEB)通过PCR扩增片段。PCR后,片段用NucleoSpin Gel and PCR Clean-Up试剂盒(Macherey-Nagel)纯化,并使用NEBuilder® HiFi DNA Assembly Master Mix(NEB)进行Gibson组装。组装反应转化至NEB® 5-alpha F'I q大肠杆菌(NEB),涂布于含所需抗生素的LB琼脂平板(见表S3)。质粒由Oxford Nanopore(Plasmidsaurus)测序。对于异源蛋白表达,质粒按制造商说明转化至NEB® BL21(DE3)感受态大肠杆菌。对于使用pK18(m)sB系列质粒对恶臭假单胞菌进行基因组编辑,亲本菌株在LB培养基中过夜培养,并按已建立方案(Choi et al., 2006)制备电感受态。使用Bio-Rad GenePulser以>400 ng质粒电击转化(1.6 kV,25 μF,200 Ω),立即转移至SOC Outgrowth Medium(NEB)。恢复培养在225 rpm、30°C下进行60-120分钟,培养物在含50 mg/L卡那霉素的LB琼脂上筛选。转化子再次在LB + 50 mg/L卡那霉素上筛选,并在YT + 25%蔗糖(10 g/L胰蛋白胨,5 g/L酵母提取物,250 g/L蔗糖,18 g/L琼脂)上反选两次,依据先前建立的方案(Johnson and Beckham, 2015)。基因组编辑通过MyTaq™ Red Mix(Meridian Bioscience)PCR扩增目标区域,随后对产物进行Oxford Nanopore测序(Plasmidsaurus)确认。
【数据】质粒用量:>400 ng;电击参数:1.6 kV,25 μF,200 Ω;恢复培养:225 rpm,30°C,60-120 min;卡那霉素浓度:50 mg/L;蔗糖浓度:25%(250 g/L);YT培养基:10 g/L胰蛋白胨,5 g/L酵母提取物,18 g/L琼脂
#### 5.1.2 培养基配制
LB(Miller)作为本研究中菌株维持和筛选的丰富培养基。对于限定碳源的生长实验,M9基本培养基配制为含0.1 mM CaCl₂、18 μM FeSO₄、2 mM MgSO₄、3 g/L KH₂PO₄、0.5 g/L NaCl、6.8 g/L Na₂HPO₄、1 g/L NH₄Cl及所列浓度的碳生长底物。对于ALE实验,M9培养基以2X浓度配制,与2X浓度的相关芳香底物按1:1比例混合。芳香化合物储液通过将PCA、4HBA或p-香豆酸(均购自Sigma-Aldrich)溶于水,然后用4 M NaOH滴定至中性pH制备。对于模拟水解液糖实验,M9培养基含93 mM葡萄糖、47 mM木糖和8 mM阿拉伯糖——这是玉米秸秆水解液中观察到的典型糖比例(Chen et al., 2016)。用于洗涤细胞的1X M9盐溶液含3 g/L KH₂PO₄、0.5 g/L NaCl、6.8 g/L Na₂HPO₄和1 g/L NH₄Cl。所有M9培养基在使用前通过0.2 μm瓶口过滤器灭菌。
【数据】M9培养基组分:0.1 mM CaCl₂,18 μM FeSO₄,2 mM MgSO₄,3 g/L KH₂PO₄,0.5 g/L NaCl,6.8 g/L Na₂HPO₄,1 g/L NH₄Cl;模拟水解液糖:93 mM葡萄糖,47 mM木糖,8 mM阿拉伯糖;NaOH浓度:4 M;过滤孔径:0.2 μm
#### 5.1.3 读板机培养
含5 mL LB培养基的试管直接从甘油储液接种目标菌株。试管在225 rpm、30°C下过夜培养。取1 mL各培养物在2,500×g离心3分钟,沉淀重悬于1 mL 1X M9盐溶液。Honeycomb2微孔板(Growth Curves Ltd.)孔中加入200 μL含目标碳源的M9基本培养基,然后三复孔各接种1 μL相应培养物悬液。板在BioscreenC Pro(Growth Curves Ltd.)中于30°C连续最大振幅振荡培养。生长速率通过指数期线性回归计算,滞后时间定义为达到OD600nm = 0.2所需的生长时间。
【数据】LB体积:5 mL;离心:2,500×g,3 min;M9培养基体积:200 μL;接种量:1 μL;培养温度:30°C;滞后时间定义:OD600nm = 0.2
#### 5.1.4 摇瓶培养
含25 mL LB培养基的挡板瓶直接从甘油储液接种目标菌株。瓶在225 rpm、30°C下过夜培养。次日,各过夜培养物稀释至25 mL新鲜LB培养基中至OD600nm约0.2。瓶在225 rpm、30°C下培养4小时,然后预培养物在2,500×g离心6分钟。或者,对于图S8所示的CJ781衍生芳香族菌株,过夜预培养物直接处理,不进行第二次传代。弃上清,沉淀重悬于25 mL 1X M9盐溶液,重复离心步骤。进行第二次洗涤,然后将细胞沉淀重悬于2.5 mL 1X M9盐溶液。各悬液OD600nm在Genesys(Thermo Scientific)分光光度计上测量,用于接种含25 mL M9基本培养基的挡板瓶,碳源如各实验所示。瓶在225 rpm、30°C下培养。在指定时间点,从各瓶取800 μL培养物;50 μL细胞悬液用于测量OD600nm。剩余细胞离心,上清通过0.2 μm过滤器进入玻璃瓶用于代谢物定量。各瓶pH在各采样时间用微型pH计(HORIBA LAQUAtwin pH-33)监测,必要时用无菌1 M NaOH调节培养物至pH 7。
【数据】LB体积:25 mL;预培养OD600nm:约0.2;预培养时间:4 h;离心:2,500×g,6 min;洗涤液:1X M9盐溶液;重悬体积:2.5 mL;培养温度:30°C,225 rpm;采样体积:800 μL;OD测量体积:50 μL;pH调节:1 M NaOH,pH 7;过滤孔径:0.2 μm
#### 5.1.5 代谢物定量
粘康酸、芳香化合物和糖从细胞上清中使用超高效液相色谱(UHPLC)定量,方法如已发表的protocols.io方法所述(Alt et al., 2024; Woodworth et al., 2024)。对于用芳香族化合物培养的CJ781及相关菌株,粘康酸C-mol产率计算为粘康酸C-mol除以芳香族化合物C-mol,例如:[(mM粘康酸 × 6)/(mM 4HBA × 7) × 100%]。对于用糖培养的LC237及相关菌株,粘康酸C-mol产率计算为粘康酸C-mol除以葡萄糖、木糖和阿拉伯糖利用的C-mol:[(mM粘康酸 × 6)/((mM葡萄糖 × 6) + (mM木糖 × 5) + (mM阿拉伯糖 × 5)) × 100%]。碳产率在检测到最大粘康酸浓度的时间点计算。粘康酸生产速率在CJ781及相关菌株中计算24小时(0至24 h),在LC237及相关菌株中计算20小时(0至20 h)。速率和产率计算的原始数据见补充文件1。
【数据】粘康酸C-mol数:6;4HBA C-mol数:7;葡萄糖C-mol数:6;木糖C-mol数:5;阿拉伯糖C-mol数:5;速率计算时间:CJ781为0-24 h,LC237为0-20 h
5.2 耐受性ALE
在TALE开始前,将菌株AW71划线分离于LB琼脂上,30°C培养至菌落形成。六个独立试管各装5 mL LB培养基,每管接种AW71单菌落(生物学重复)。试管在斜置架上225 rpm、30°C培养18小时。次日,各过夜培养物OD600nm在分光光度计(Thermo Scientific)上测量。过夜培养物直接使用(不洗涤)接种ALE培养物至初始OD600nm为0.03。ALE培养在无菌试管中进行,含5 mL M9基本培养基和15 mM PCA或15 mM 4HBA,在斜置架上225 rpm、30°C培养。次日,用Spectronic 601管式分光光度计(Milton Roy)在试管中测量OD600nm。当OD600nm达到约1.0时,取50 μL各培养物传代至无菌试管中的新鲜培养基。各传代的时间和OD600nm记录于补充文件1。各谱系进化群体在整个TALE期间定期保存为甘油储液(20% w/v甘油,−80°C)以备后续恢复。每3-10天(见补充文件1中"TALE tracking"),芳香底物浓度增加2.5-5 mM,在达到最终浓度30 mM后继续传代8天。跨44次传代,每次涉及100倍扩增(log2(100) = 6.6次倍增),实验跨越约300代。各谱系最终群体……
【数据】LB体积:5 mL;初始OD600nm:0.03;PCA浓度:15 mM;4HBA浓度:15 mM;传代OD600nm:约1.0;传代体积:50 μL;甘油浓度:20% w/v;储存温度:−80°C;底物增加:每3-10天增加2.5-5 mM;最终浓度:30 mM;传代数:44;扩增倍数:100倍;倍增数:6.6;代数:约300代
研究结果
2.1 AroY依赖菌株的进化缓解了PCA瓶颈
为在ALE期间建立对PCA分解代谢的生长依赖性,我们首先在先前工程化的CJ781菌株(Kuatsjah et al., 2022)中恢复了catBC位点。所得菌株AW71(图1A;表1)利用芳香化合物作为唯一碳源和能源,同时保留与CJ781相同的所有其他遗传修饰。与CJ781一样,AW71在4-羟基苯甲酸(4HBA)生长期间也积累了大量PCA和邻苯二酚(图2A),因此它作为ALE实验的亲本菌株,旨在克服这些瓶颈。
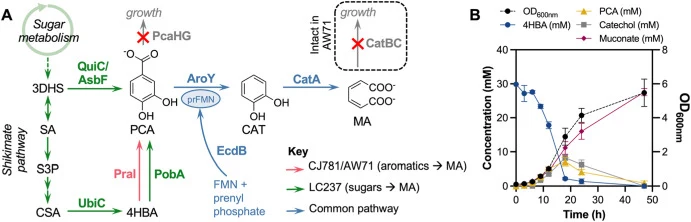
为探究AW71中的PCA分解代谢,进行了两次耐受性ALE(TALE)(Mohamed et al., 2020)实验。六份独立AW71培养物在含15 mM 4HBA或15 mM PCA的基本培养基中培养。每天将细胞传代至新鲜培养基,底物在实验过程中缓慢增加,44次传代后达到最终浓度30 mM(约300代;见方法;补充文件1)。所有进化群体在其选择所用底物上的生长均改善,表现为生长滞后时间缩短和最大比生长速率增加(图2B和C)。
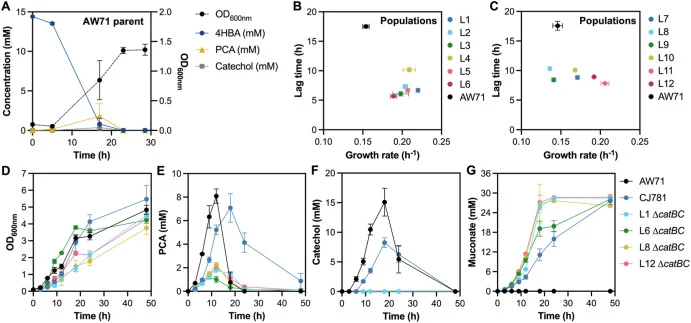
实验结束时,将进化群体划线于琼脂平板,从各群体中选择克隆独特的分离株,这些分离株表现出与其对应群体样品相似的改善表型(图S2)。整个实验过程中收集的群体的生长谱分析表明,最强的改善出现在传代早期阶段,尤其是4HBA进化的谱系,但一些谱系在整个实验过程中表现出渐进改善(图S3-S4A,B)。当在以葡萄糖为主要碳源的生长实验中评估对递增PCA浓度(高达60 mM)的耐受性时,一些分离株表现出滞后时间缩短,但没有一株表现出更快的生长速率(图S4C)——表明TALE对PCA利用的选择强于对耐受性的选择。
为评估通过ALE获得的生长改善是否以同样影响粘康酸生产的方式影响PCA分解代谢途径,在四个进化分离株(L1和L6,PCA进化;L8和L12,4HBA进化)中重新删除了catBC。三个ΔcatBC分离株(L1、L8和L12)在补充4HBA的摇瓶培养中,相对于CJ781,粘康酸生产速率表现出统计学显著增加(图2D-G;表S1)。例如,粘康酸生产速率在同一时间段内从CJ781的0.67 ± 0.10 mM h⁻¹增加至L1 ΔcatBC的1.19 ± 0.02 mM h⁻¹(补充文件1;表S1;速率在培养前24小时计算,见方法)。ΔcatBC分离株还显示出低得多的PCA积累,上清中未检测到邻苯二酚积累,表明这些代谢步骤成功去瓶颈。在补充30 mM PCA的培养中,ΔcatBC分离株观察到类似但幅度较小的改善(图S5A)。当进化分离株用p-香豆酸培养时,邻苯二酚瓶颈被消除,观察到PCA瓶颈的小幅减少,但未实现粘康酸生产的改善,可能是因为分解p-香豆酸所需的额外步骤(Jiménez et al., 2002)减慢了碳通过这些瓶颈的流动(图S5B)。总之,这些结果表明进化选择了生长不再受代谢中间体积累损害的突变体,且AroY依赖生长的改善在删除catBC后转化为更快的粘康酸生产。
【数据】底物浓度:15 mM 4HBA或15 mM PCA;最终浓度:30 mM;传代数:44;代数:约300代;CJ781粘康酸速率:0.67 ± 0.10 mM h⁻¹;L1 ΔcatBC速率:1.19 ± 0.02 mM h⁻¹;PCA耐受性测试浓度:高达60 mM;速率计算时间:前24 h
2.2 突变导致进化菌株的转录变化
为探究进化表型的遗传决定因素,对AW71及各进化群体和分离株进行了全基因组测序。标准化分析流程(见方法)鉴定了各样品相对于AW71亲本的突变(补充文件1;补充文件2)。突变在catA1位点(PP_3713)以极高频率出现,十二个谱系最终传代的每个分离株在该区域至少有一个突变(图3A)。
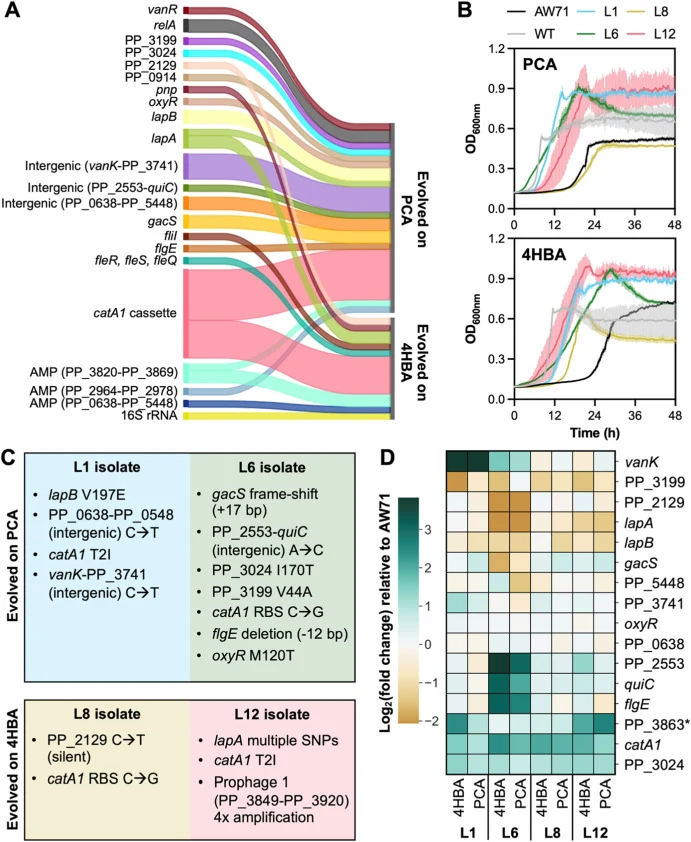
除基因组其他位置的多样单核苷酸多态性(SNPs)外,一些分离株表现出11至300 kb长度的大区域扩增(2至5倍)。在一个案例中(L9的最终分离株),约300 kb的扩增跨越了catA1基因,进一步强调了该基因突变的强选择压力。编码表面粘附蛋白LapA的基因(PP_0168)(Espinosa-Urgel et al., 2000)的突变以及跨越PP_3820-PP_3869前噬菌体区域的扩增(Martínez‐García et al., 2015)在两种底物中均有观察到。PCA进化谱系的分离株比4HBA进化的分离株表现出更多的总突变数(图S6)。若干趋同突变发生在基因间区,包括vanK(PP_3740)潜在启动子区域的SNPs,该基因编码PCA转运蛋白(Wada et al., 2021),以及PP_2553,编码一个推定MFS转运蛋白。
为阐明ALE衍生突变对基因表达的影响,对四个分离株(L1和L6,PCA进化;L8和L12,4HBA进化)相对于AW71亲本进行了全局转录组分析。这些分离株通常在两种底物上均表现出改善的生长(图3B),一些分离株的滞后时间甚至短于KT2440野生型,但它们显示出多样的突变(图3C)。细胞在含30 mM PCA或30 mM 4HBA的基本培养基中培养至中指数期收集,RNA测序和相对转录本丰度定量按先前描述的流程进行(Holmes et al., 2024)。各分离株中的突变与基因表达的相应变化对应(图3D)。例如,分离株L1在vanK启动子区域含有一个SNP,该基因在L1中相对于AW71在两种底物生长期间表达增加>27倍(补充文件3)。分离株L6在PP_2553和quiC(PP_2554)之间的基因间区含有一个SNP,我们观察到两个基因的表达均升高。正如对catA1突变的强选择所预期,该基因的转录在四个分离株和两种底物中均显著升高(q < 0.05)。除与突变相关的表达变化外,所有进化分离株均表现出PP_2034-PP_2037转录单元的显著表达增加和PP_3425-PP_3427转录单元的显著表达降低(补充文件3;图S7)。这些操纵子分别含有benE-I(PP_2035),注释为苯甲酸转运蛋白基因,以及mexEF:oprN,编码RND外排泵,表明进化分离株相对于AW71的代谢物转运可能被调节。
【数据】扩增区域长度:11-300 kb;扩增倍数:2-5倍;L9扩增:约300 kb;培养底物浓度:30 mM PCA或30 mM 4HBA;vanK表达增加:>27倍;catA1转录显著性:q < 0.05
2.3 catA1基因盒的突变缓解了代谢瓶颈
ALE中最常见的趋同突变发生在catA1基因盒(图3A)。实验中十二个进化分离株每个都含有该基因盒中至少一个突变或扩增(补充文件2),突变呈现多种形式(图4A和B)。四个分离株含有catA1 CDS中的T2I突变,七个分离株含有catA1核糖体结合位点(RBS)的突变。另外两个克隆表现出catA1 CDS中的G72A突变,但总是与RBS中的C→G SNP一起观察到。我们对来自恶臭假单胞菌的天然CatA1蛋白与来自其他真细菌的150个同源物进行了多序列比对,并评估了氨基酸的保守性……
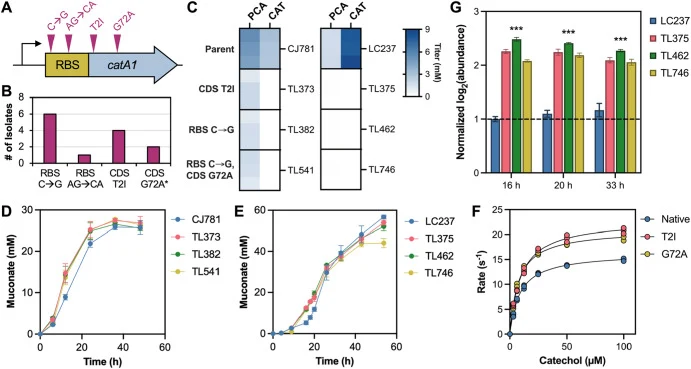
【数据】catA1突变分离株:12/12;T2I突变分离株:4个;RBS突变分离株:7个;G72A突变:2个克隆(与RBS C→G SNP联合出现);同源物比对数量:150个
讨论与解读
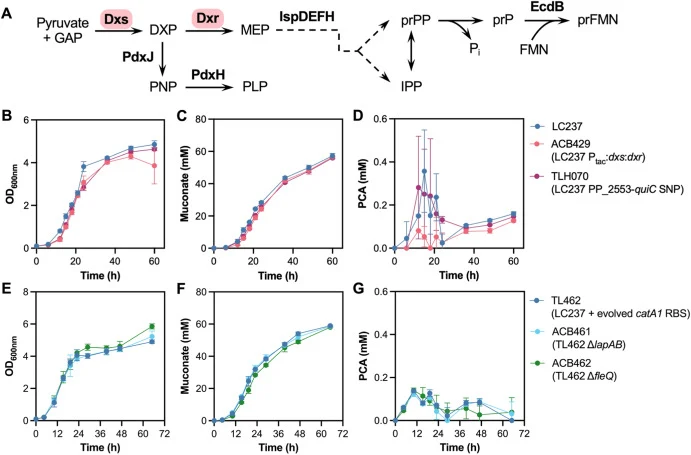
异源表达aroY使恶臭假单胞菌能够将PCA转化为邻苯二酚。本研究利用ALE提高了AroY途径生产粘康酸的效率,进化菌株在消除PCA和邻苯二酚可检测代谢瓶颈的同时表现出显著的生长提升。PCA脱羧为邻苯二酚是多种微生物天然芳香分解代谢的关键组成部分,包括克雷伯菌、肠杆菌等细菌以及Arxula adeninivorans等真菌。细菌物种通常利用UbiD型PCA脱羧酶系统,其中黄素异戊烯基转移酶生成脱羧酶高效活性所需的prFMN辅因子。我们最初假设工程恶臭假单胞菌中PCA积累源于AroY活性不足和/或aroY过表达背景下对prFMN辅因子的高需求,但ALE压倒性地选择了增加途径中下一个酶CatA的转录、翻译和周转的突变,尽管catA1在初始ALE菌株AW71和基线糖及芳香族菌株LC237和CJ781中已处于强Ptac启动子控制下。这些结果表明CatA活性……
编译者解读:本研究最有价值的发现在于颠覆性——人们长期将AroY视为粘康酸途径的限速节点,但ALE用事实指出CatA才是真正的控制点。方法上,TALE设计巧妙:以PCA为唯一碳源施加生长选择压力,使菌株不得不优化整条通路。但局限也明显:ALE获得的是多突变叠加的复杂基因型,CatA1蛋白水平提升与动力学改善的各自贡献尚未完全解耦,且扩增片段长达300 kb给工业菌株的遗传稳定性带来隐忧。后续若能用启动子工程或RBS文库精准调控catA1表达,或许能以更简洁的遗传改造复现甚至超越进化表型。
参考来源
期刊:Metabolic Engineering, 2027
DOI: 10.1016/j.ymben.2026.102558
DOI: 10.1016/j.ymben.2026.102558