来源:Impact of Aspergillus and Rhizopus solid-state fermentation on the non-volatile and volatile profiles of Moringa oleifera seeds(International Journal of Food Microbiology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
辣木籽仁营养丰富,但因固有苦味而难以融入食品体系。发酵被视为改善营养与感官品质的潜在手段,然而其对辣木籽香气挥发物轮廓的影响此前尚属空白。本研究采用黑曲霉、米曲霉和少孢根霉对脱壳辣木籽仁进行固态发酵,系统分析了糖类、有机酸、氨基酸、总酚、抗氧化能力、硫代葡萄糖苷及其异硫氰酸酯衍生物,并借助GC–MS/FID解析挥发性风味。结果显示,发酵使总游离氨基酸提升218–275%、总酚提升54.3–526.1%,抗氧化能力在黑曲霉发酵组提升133.2%,且香气轮廓呈现显著的菌株特异性。
研究背景
辣木(Moringa oleifera)素有“鼓槌树”或“奇迹树”之称,其种子营养价值突出:蛋白质约占33.4%,脂质约占41.7%,其中单不饱和脂肪酸为主,油酸占比约73.4%。种子还富含酚酸(没食子酸、咖啡酸、香草酸、阿魏酸等)、黄酮类(儿茶素、表儿茶素、槲皮素、山奈酚)、生育酚(α-、γ-、δ-生育酚)以及甾醇(β-谷甾醇、豆甾醇、菜油甾醇、Δ5-燕麦甾醇)。除基础营养外,硫代葡萄糖苷及其水解产物是辣木籽的关键生物活性成分,包括4-[(α-L-鼠李糖氧基)-苄基]-硫代葡萄糖苷(glucomoringin,GMG)及其相应的异硫氰酸酯衍生物4-[(α-L-鼠李糖氧基)苄基]异硫氰酸酯(RBITC,即moringin)。GMG本身生物活性有限,但可被植物内源黑芥子酶或肠道菌群水解生成RBITC,后者被吸收后承担了辣木籽被报道的多种健康促进效应——抗氧化、抗炎、抗菌、抗肿瘤、抗糖尿病、护肝及心脏保护等。尽管营养丰富,辣木籽的食品应用仍受其固有苦味制约。
研究方法
2.1 材料与化学试剂
本研究所用真菌菌株为黑曲霉JCM 1864(日本微生物菌种保藏中心,日本茨城县)、米曲霉Mugi Senyo Kin(Bio'c Co., Ltd.,日本爱知县)和少孢根霉(Raprima Inokulum Tempe,印度尼西亚日惹)。脱壳辣木籽仁购自Grenera Nutrients Private Limited(印度泰米尔纳德邦)。购自Sigma-Aldrich(美国密苏里州)的试剂包括葡萄糖、果糖、蔗糖、乙酸、氨基酸标准品、葫芦巴碱、茶碱、咖啡因、5-磺基水杨酸、甲酸、丁酸丁内酯、没食子酸、Folin-Ciocalteu试剂、2,2′-偶氮双(2-甲基丙脒)二盐酸盐(AAPH)和Trolox。马铃薯葡萄糖琼脂(PDA)购自Oxoid(英国贝辛斯托克)。GMG购自PhytoLab(德国Vestenbergsgreuth),moringin按Lu等(2020)此前报道的方法分离纯化。己烷、丙酮、乙醇、甲醇、乙腈等溶剂购自当地供应商(新加坡)。
【数据】菌株:黑曲霉JCM 1864、米曲霉Mugi Senyo Kin、少孢根霉;试剂来源:Sigma-Aldrich、Oxoid、PhytoLab;培养基:PDA;原文未详述其他参数
2.2 辣木籽仁的固态发酵
辣木籽仁的固态发酵参照Zhang等(2022)的方法并作部分修改。将脱壳辣木籽仁(100 g)称入1 L烧杯,冲洗后按3:1(w/v)比例在4 °C去离子水中浸泡48 h。沥干后,向籽仁中补充5%(w/w)葡萄糖,并在高压灭菌锅(Hirayama,日本)中于100 °C巴氏杀菌30 min。巴氏杀菌效率在预试验中经过检查,确认底物中无细菌孢子(如芽孢杆菌孢子)残留。葡萄糖补充也在预试验中进行,结果表明其添加对于支持孢子萌发启动及后续菌丝生长是必要的。真菌孢子从在PDA上于30 °C培养5天的产孢真菌菌株中收获,孢子浓度使用C-Chip一次性血细胞计数板(INCYTO,韩国)测定。每个发酵样品接种1%(v/w)制备好的接种物,最终孢子浓度为1 × 10⁵ spores/g。每种微生物菌株的发酵做三个重复,同时设置一组经相同预处理但未接种的对照组。所有样品在30 °C下静置培养48 h。
【数据】底物:脱壳辣木籽仁100 g;浸泡比例:3:1(w/v);浸泡温度:4 °C;浸泡时间:48 h;葡萄糖补充:5%(w/w);巴氏杀菌:100 °C、30 min;孢子培养:PDA、30 °C、5天;接种量:1%(v/w);最终孢子浓度:1 × 10⁵ spores/g;发酵温度:30 °C;发酵时间:48 h;重复数:3
2.3 微生物计数与pH
每天采集5 g样品,在10 mL 0.9%无菌生理盐水中匀浆(Rizal et al., 2021)。制备系列稀释液(10倍梯度),取100 μL涂布于PDA平板。平板在30 °C培养16 h,计数25–250范围内的菌落以估算辣木籽仁上的真菌生长。匀浆悬浮液的pH使用pH计(Mettler Toledo,瑞士)测定。
【数据】取样量:5 g;稀释液:10 mL 0.9%无菌生理盐水;涂布量:100 μL;培养温度:30 °C;培养时间:16 h;计数范围:25–250 CFU;仪器:pH计(Mettler Toledo)
2.4 发酵辣木籽仁的干燥
未发酵和发酵辣木籽仁在干燥箱(Memmert GmbH,德国Schwabach)中于40 °C干燥48 h,直至水分含量达到6–7%(Wang et al., 2020)。样品在室温下冷却,用金属研磨机(Shardor,中国)研磨成粉。研磨后的样品储存在密封袋中,于−30 °C保存待化学分析。
【数据】干燥温度:40 °C;干燥时间:48 h;目标水分含量:6–7%;储存温度:−30 °C
2.5 色泽、水分和水分活度分析
#### 2.5.1 色泽
未发酵和发酵辣木籽仁的色泽使用色差仪(Konica Minolta, Inc.,日本东京)测定(Liu et al., 2024b)。三次读数取平均以获得代表性L*值。
【数据】仪器:色差仪(Konica Minolta);读数次数:3;原文未详述其他参数
#### 2.5.2 水分含量
未发酵和发酵辣木籽仁的水分含量使用水分分析仪(Shimadzu Corporation,日本)于110 °C测定至恒重(Liu et al., 2024b)。水分百分比基于重量损失计算,做三个重复。
【数据】仪器:水分分析仪(Shimadzu);温度:110 °C;重复数:3
#### 2.5.3 水分活度(aw)
样品的水分活度使用AQUALAB 3水分活度仪(Meter Group,美国)测定。每个样品约2–3 g置于洁净样品杯中,确保样品杯填充充分、完全覆盖底部且不压实材料。随后密封样品室,待达到平衡后进行测量。每个样品分析三个重复。
【数据】样品量:2–3 g;仪器:AQUALAB 3水分活度仪;重复数:3
2.6 非挥发性分析前的脱脂
干燥研磨后的发酵辣木籽仁在非挥发性分析前脱脂(Lu et al., 2020)。每个样品分散于己烷中(1:10 w/v),使用Heidolph Rotamax 120(德国Schwabach)振荡(290 ×g,1 h),然后以10,000 rpm离心10 min。弃去上清液,再用新鲜己烷重复提取两次。固体残渣在通风橱中于环境温度下过夜干燥。
【数据】溶剂:己烷;比例:1:10(w/v);振荡:290 ×g、1 h;离心:10,000 rpm、10 min;提取次数:3次;干燥:通风橱、环境温度、过夜
2.7 糖类与酚类化合物
#### 2.7.1 提取
脱脂辣木籽仁中的糖类和酚类化合物使用80%甲醇水溶液(1:10 w/v)提取,使用Heidolph Rotamax 120(德国Schwabach)于290 ×g振荡30 min,然后在4 °C、17,400 ×g离心10 min(Liu et al., 2024a)。再用新鲜溶剂重复提取两次,三次提取的上清液合并。上清液使用CentriVap离心浓缩仪(Labconco,美国密苏里州)于50 °C蒸干,用80%甲醇(1 mL)复溶,并通过0.22 μm再生纤维素膜(Sartorius,德国Göttingen)过滤。
【数据】提取溶剂:80%甲醇;比例:1:10(w/v);振荡:290 ×g、30 min;离心:4 °C、17,400 ×g、10 min;提取次数:3次;蒸干温度:50 °C;复溶体积:1 mL;滤膜:0.22 μm再生纤维素膜
#### 2.7.2 糖类分析
糖类(如葡萄糖、果糖和蔗糖)分析通过将10 μL各样品注入配备蒸发光散射检测器(ELSD)和Zorbax碳水化合物分析柱(4.6 × 150 mm,5 μm)(Agilent,美国加州)的超高效液相色谱(UPLC)系统(Agilent,美国加州)进行(Liu et al., 2024a)。糖类使用乙腈和水(80:20,v/v)流动相分离,流速1.4 mL/min,柱温维持40 °C,运行15 min。葡萄糖、果糖和蔗糖的校准曲线(0.25–1.5 g/L)在相同条件下生成,R²值≥0.99。
【数据】进样量:10 μL;色谱柱:Zorbax碳水化合物分析柱(4.6 × 150 mm,5 μm);流动相:乙腈:水(80:20,v/v);流速:1.4 mL/min;柱温:40 °C;运行时间:15 min;校准范围:0.25–1.5 g/L;R²≥0.99
#### 2.7.3 酚类化合物分析
游离酚类化合物使用配备光电二极管阵列检测器和Eclipse Plus C18柱(4.6 × 150 mm,5 μm)(Agilent,美国加州)及Eclipse Plus C18保护柱(2.1 × 12.5 mm,5 μm)(Agilent,美国加州)的Shimadzu HPLC系统(LC-20,日本京都)分析(Liu et al., 2024a)。梯度洗脱使用0.1%乙酸超纯水溶液(A)和纯甲醇(B),流速0.4 mL/min,柱温40 °C,条件如下:0% B(0–3 min),0–5% B(3–8 min),5–20% B(8–12 min),20–30% B(12–20 min),30–40% B(20–30 min),40–95% B(30–30.01 min),95% B(30.01–40 min)。色谱柱在后续进样前用100% A重新平衡10 min。检测和定量在270 nm进行。校准曲线(R² ≥ 0.99)在相同条件下建立,葫芦巴碱(0.375–300 mg/L)、茶碱(0.125–100 mg/L)和咖啡因(0.5–400 mg/L)。
【数据】色谱柱:Eclipse Plus C18(4.6 × 150 mm,5 μm);保护柱:Eclipse Plus C18(2.1 × 12.5 mm,5 μm);流动相A:0.1%乙酸超纯水;流动相B:纯甲醇;流速:0.4 mL/min;柱温:40 °C;检测波长:270 nm;平衡时间:10 min;校准范围:葫芦巴碱0.375–300 mg/L、茶碱0.125–100 mg/L、咖啡因0.5–400 mg/L;R²≥0.99
2.8 有机酸
#### 2.8.1 提取
脱脂辣木籽仁使用去离子水(1:5 w/v)提取30 min,使用轨道摇床于290 ×g(Heidolph Rotamax 120,德国Schwabach),在4 °C、17,400 ×g离心30 min,并通过0.22 μm再生纤维素膜(Sartorius,德国Göttingen)过滤(Lee et al., 2016)。
【数据】提取溶剂:去离子水;比例:1:5(w/v);时间:30 min;振荡:290 ×g;离心:4 °C、17,400 ×g、30 min;滤膜:0.22 μm再生纤维素膜
#### 2.8.2 分析
有机酸使用Supelcogel C610H柱(30 mm × 7.8 mm,5 μm)(Supelco,美国宾夕法尼亚州Bellefonte)于40 °C分析(Lee et al., 2016)。等度洗脱使用0.1%(v/v)硫酸,流速0.4 mL/min。草酸、柠檬酸、α-酮戊二酸、苹果酸和奎宁酸的鉴定和定量使用外标校准曲线(R² ≥ 0.99),所有有机酸范围0.002–2.5 g/L,检测波长210 nm。
【数据】色谱柱:Supelcogel C610H(30 mm × 7.8 mm,5 μm);柱温:40 °C;流动相:0.1%(v/v)硫酸;流速:0.4 mL/min;检测波长:210 nm;校准范围:0.002–2.5 g/L;R²≥0.99
2.9 氨基酸
#### 2.9.1 游离氨基酸提取
游离氨基酸从脱脂辣木籽仁中使用去离子水(1:5 w/v)提取30 min,于290 ×g振荡。
【数据】提取溶剂:去离子水;比例:1:5(w/v);时间:30 min;振荡:290 ×g
研究结果
3.1 发酵辣木籽仁的真菌生长、pH、色泽与水分含量
对真菌生长和pH变化进行了监测,结果总结于图1。未接种对照组在整个发酵期间未观察到生长,而米曲霉在48 h时真菌生长最高,为6.55 log CFU/g,其次是黑曲霉5.30 log CFU/g和少孢根霉4.50 log CFU/g(图1A)。尽管少孢根霉观察到 minimal 生长,但发酵样品的目视检查显示白色丝状菌丝在整个底物中大量生长(图1C)。未发酵辣木籽仁的初始pH在5.47至5.52之间,24 h时降至pH 4.02、4.6和4.67,48 h发酵后分别回升至5.91、5.89和6.29(黑曲霉、少孢根霉和米曲霉)(图1B)。这一趋势与不同真菌生长阶段发生的动态代谢转变一致(图1A和C),其中前24 h对应菌丝发育最少的初始阶段,随后在48 h观察到大量底物定殖。在早期活跃生长阶段,初级代谢占主导,碳水化合物利用产生的有机酸导致pH下降(图1B)。进入中间和后期生长阶段导致生物量增加和胞外酶(特别是蛋白酶)分泌增强。脱氨反应可能释放氨和其他碱性含氮化合物,共同导致pH上升(图1B)。发酵和干燥显著影响了样品的色泽(L值)和水分含量。发酵样品表现出显著较低的L值(p < 0.05),尤其是米曲霉和黑曲霉发酵的辣木籽仁,表明发酵过程中可能发生了酶促褐变反应和微生物生化活动(表1)。相反,干燥显著增加了所有样品的L*值,这是由于较低的水分含量增加了光反射,从而产生较浅的样品(Pillinger et al., 2023)。发酵样品的水分含量(46–53%)显著高于干燥样品(6–8%),后者达到的水分活度水平为0.57–0.62(表1),表明干燥有效降低了水分至安全储存水平,从而促进货架期稳定性(U.S. Food and Drug Administration, 2014)。
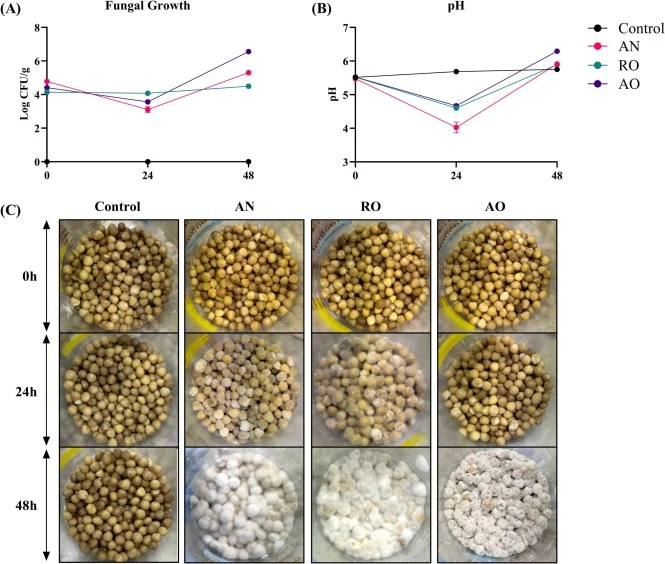
【数据】真菌生长(48 h):米曲霉6.55 log CFU/g、黑曲霉5.30 log CFU/g、少孢根霉4.50 log CFU/g;初始pH:5.47–5.52;24 h pH:黑曲霉4.02、少孢根霉4.6、米曲霉4.67;48 h pH:黑曲霉5.91、少孢根霉5.89、米曲霉6.29;发酵样品水分含量:46–53%;干燥样品水分含量:6–8%;水分活度:0.57–0.62;L*值:发酵样品显著降低(p < 0.05)
3.2 发酵对辣木籽仁非挥发性轮廓的影响
测定了发酵过程中辣木籽仁中单糖(如葡萄糖和果糖)以及二糖(蔗糖)的变化,总结于图2。未发酵辣木籽仁含蔗糖15.7–16.2 mg/g(图2A)、葡萄糖40.4–41.2 mg/g(图2B),而果糖未检出(图2C)。蔗糖在24 h内被黑曲霉和米曲霉完全消耗,而少孢根霉基本未利用(图2A)。曲霉属丝状真菌已知产生胞外转化酶,催化蔗糖分解为葡萄糖和果糖,而少孢根霉优先消耗葡萄糖而非蔗糖,可能通过分解代谢物阻遏(Nieves et al., 2015)。此外,较高的起始葡萄糖浓度可能驱动了竞争性摄取,因为葡萄糖对黑曲霉糖转运蛋白的亲和力高于果糖(Sloothaak et al., 2015),这解释了两种曲霉菌株(黑曲霉、米曲霉)在24 h和48 h果糖的积累,因其同化较慢。少孢根霉对蔗糖的有限降解与先前在混合糖系统中的报道一致,其中葡萄糖和果糖被耗尽而蔗糖在10天后仍被部分利用(Zaveri et al., 2022)。48 h残留的游离糖可能直接贡献于最终产品的甜味。发酵过程中,糖类通过糖酵解和三羧酸(TCA)循环代谢,支持能量生成和生物合成过程,导致有机酸积累。曲霉菌株发酵的辣木籽仁草酸(0.12–0.15 mg/g)、柠檬酸(0.49–1.03 mg/g)和苹果酸(1.8–2.0 mg/g)水平升高(图2),与先前关于其产酸能力的报道一致(Liaud et al., 2014)。米曲霉发酵样品中柠檬酸和α-酮戊二酸(AKG)水平显著高于黑曲霉(p < 0.05)(图2),反映了物种特异性代谢差异。在黑曲霉中,异柠檬酸可能被导向乙醛酸循环或AKG用于氨基酸生物合成,而在米曲霉中,草酰乙酸和NADH对AKG脱氢酶的产品抑制可能解释柠檬酸和AKG的积累(Kövilein et al., 2021)。相反,少孢根霉总体产生较低水平的有机酸,但观察到苹果酸显著增加。奎宁酸在所有菌株中耗竭至未检出水平,表明其生物转化为莽草酸,进入莽草酸途径合成芳香族氨基酸(Ghosh et al., 2014)。真菌发酵过程中,氨基酸平衡通过摄取、蛋白质降解、回收和从头生物合成调节。本研究评估了发酵后辣木籽仁中游离氨基酸水平的变化,以评估其对总游离氨基酸(TFAA)含量、必需氨基酸谱和总可水解氨基酸(THAA)含量的影响。原料和未发酵对照组在0 h和48 h的TFAA含量无统计学差异,但游离氨基酸组成略有变化,巴氏杀菌后L-精氨酸、L-谷氨酸和L-丙氨酸占主导(表2),与先前关于辣木籽游离氨基酸组成的报道一致(Aoki et al., 2023)。未发酵对照样品中游离氨基酸水平在30 °C、48 h保持稳定,未降解(表2)。真菌发酵导致TFAA含量增加218–275%,其中黑曲霉游离氨基酸含量最高,为478.23 mg/100 g,其次是少孢根霉442.37 mg/100 g和米曲霉405.52 mg/100 g(表2)。特别是,游离必需氨基酸水平在发酵后显著增加至183.94、164.10和154.31 mg/100 g(黑曲霉、少孢根霉和米曲霉),而未发酵辣木籽仁为33.39 mg/100 g(表2)。限制性含硫氨基酸如游离甲硫氨酸,在所有菌株中从1.13 mg/100 g增加至14.62–15.60 mg/100 g,而游离半胱氨酸在曲霉发酵的辣木籽仁中升高至可检测水平(黑曲霉:1.84 mg/100 g;米曲霉:1.19 mg/100 g)(表2)。有趣的是,所有样品中THAA含量无统计学显著变化(表2)。因此,TFAA:THAA比值增加3.14–3.73倍,反映了以代谢可及形式存在的氨基酸比例的变化(表2)。这与各种植物基底物SSF过程中由于蛋白水解酶导致的水解度和游离氨基酸增加的研究结果一致(Feng et al., 2024)。从营养角度看,这种组成变化可能影响氨基酸存在的形式而非总体氨基酸供应。游离氨基酸可直接在胃肠道吸收,而蛋白质结合氨基酸需要预先消化。因此,游离氨基酸的增加可能影响消费后氨基酸可利用性的动力学。然而,由于THAA基本未变,观察到的变化并不表明总氨基酸含量增加,也不一定在健康个体中赋予营养优势;而是反映了氨基酸的重新分布。
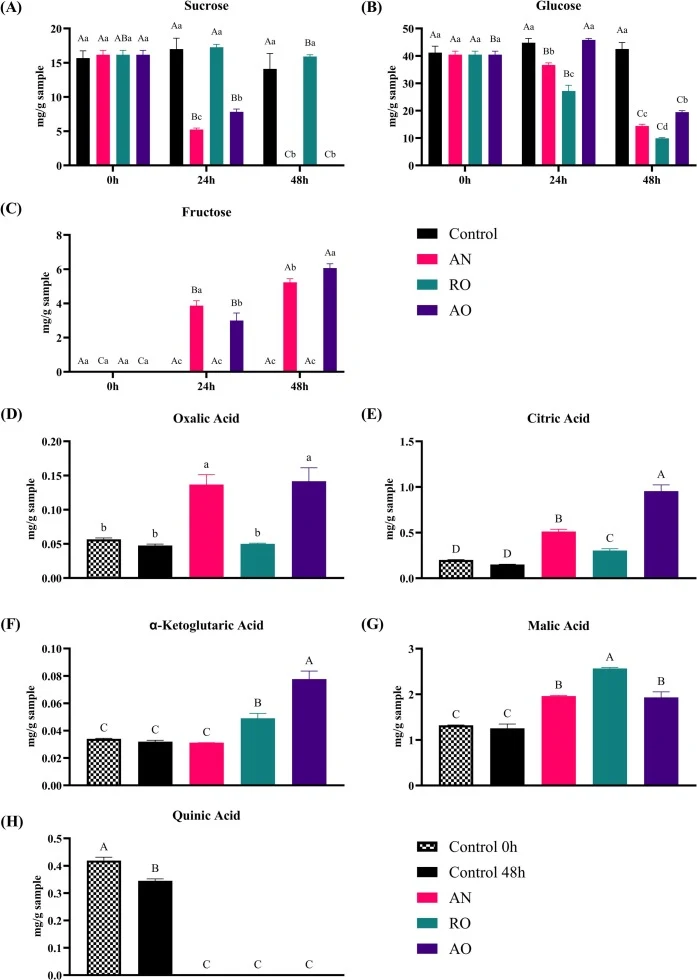
【数据】未发酵蔗糖:15.7–16.2 mg/g;未发酵葡萄糖:40.4–41.2 mg/g;未发酵果糖:未检出;草酸:0.12–0.15 mg/g;柠檬酸:0.49–1.03 mg/g;苹果酸:1.8–2.0 mg/g;TFAA增加:218–275%;黑曲霉TFAA:478.23 mg/100 g;少孢根霉TFAA:442.37 mg/100 g;米曲霉TFAA:405.52 mg/100 g;游离必需氨基酸:黑曲霉183.94 mg/100 g、少孢根霉164.10 mg/100 g、米曲霉154.31 mg/100 g、未发酵33.39 mg/100 g;游离甲硫氨酸:1.13 mg/100 g → 14.62–15.60 mg/100 g;游离半胱氨酸:黑曲霉1.84 mg/100 g、米曲霉1.19 mg/100 g;TFAA:THAA比值增加:3.14–3.73倍
3.3 发酵对辣木籽仁硫代葡萄糖苷、酚类及抗氧化能力的影响
发酵对辣木籽仁中GMG、RBITC、葫芦巴碱、茶碱、咖啡因、总酚含量及抗氧化能力的影响总结于图3。GMG在未发酵辣木籽仁中含量最高,发酵后黑曲霉组降低32%、米曲霉组降低5%,而少孢根霉发酵组GMG含量略有增加(图3A)。RBITC在所有对照和发酵样品中均下降(图3B)。葫芦巴碱、茶碱和咖啡因在所有样品中均被检出,其含量因菌株而异(图3C–E)。总酚含量在所有发酵样品中增加54.3–526.1%(图3F)。抗氧化能力(ORAC)在黑曲霉发酵样品中显著提升133.2%(图3G)。
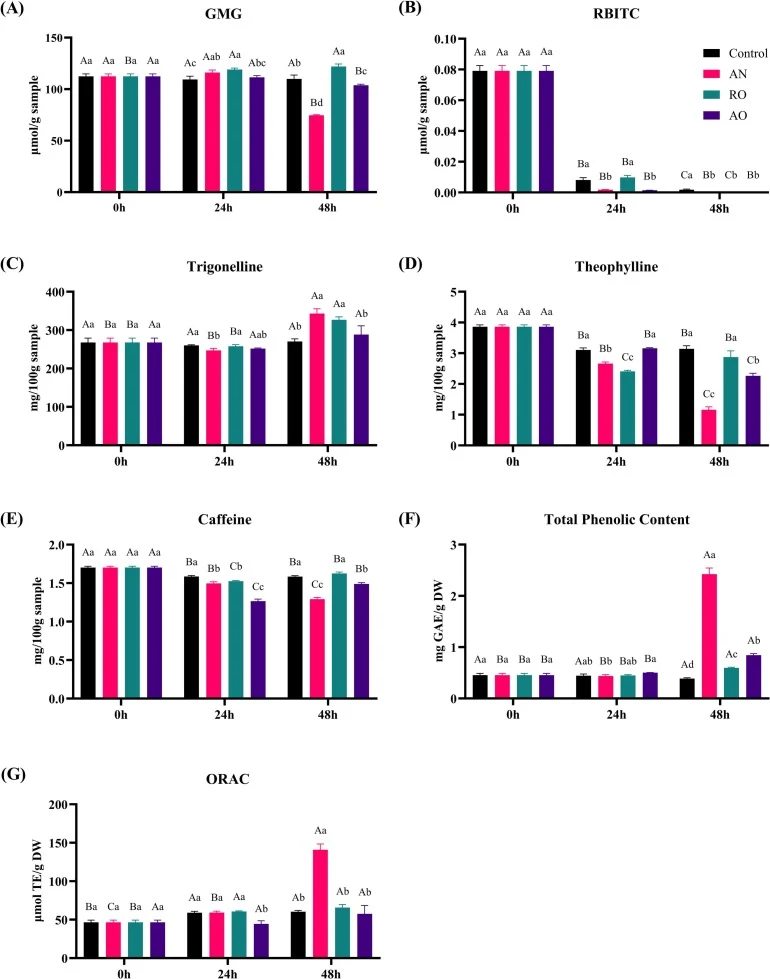
【数据】GMG降低:黑曲霉32%、米曲霉5%;少孢根霉GMG略有增加;RBITC:所有样品下降;总酚增加:54.3–526.1%;抗氧化能力(ORAC):黑曲霉组提升133.2%
3.4 发酵对辣木籽仁挥发性轮廓的影响
发酵辣木籽仁的挥发性化合物通过GC–MS/FID分析,结果总结于图4。挥发性化合物浓度如图4A所示,各样品中挥发性化合物相对于总挥发性含量的相对组成如图4B所示,挥发性化合物的主成分分析(PCA)双标图如图4C所示,展示了样品组与关键贡献化合物之间的关系。SSF导致菌株特异性香气轮廓:黑曲霉产生苯甲醛、苯乙醛、苯甲醇、1-辛烯-3-醇、3-辛酮和1-辛烯-3-酮;少孢根霉产生较高水平的乙偶姻、2,3-丁二醇和乙酯;而米曲霉以高水平2-苯乙醇为主。
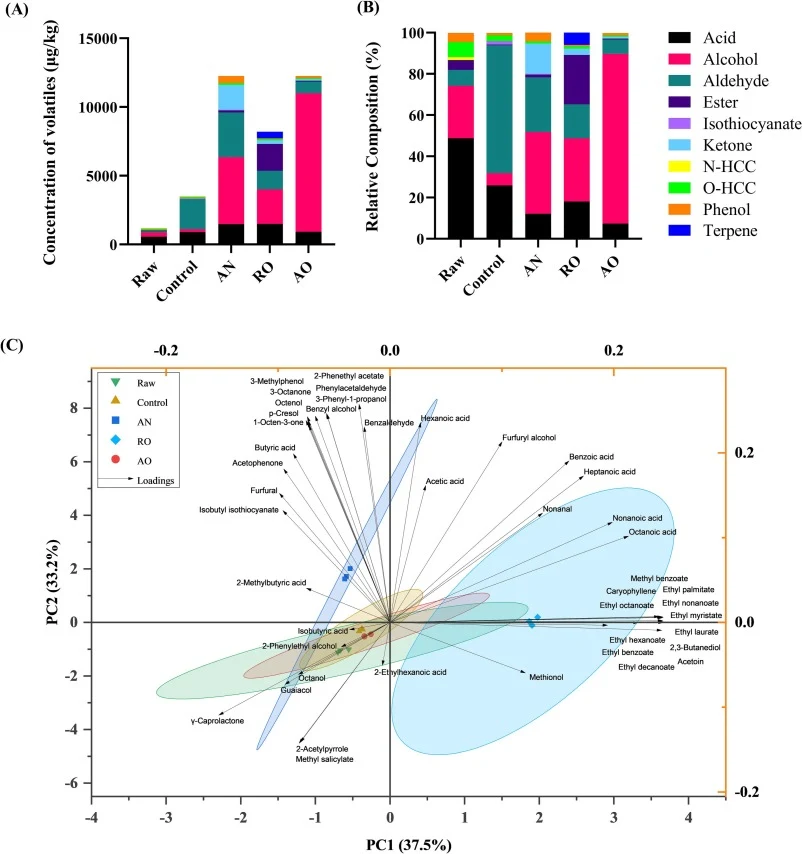
【数据】黑曲霉挥发物:苯甲醛、苯乙醛、苯甲醇、1-辛烯-3-醇、3-辛酮、1-辛烯-3-酮;少孢根霉挥发物:乙偶姻、2,3-丁二醇、乙酯;米曲霉挥发物:2-苯乙醇为主
讨论与解读
辣木籽仁的固态发酵导致了营养组成、抗氧化特性和香气轮廓的菌株依赖性改变。SSF提高了有机酸和游离氨基酸水平,包括必需氨基酸和含硫氨基酸,尤其是曲霉菌株。尽管RBITC在发酵后下降,但约68–111%的GMG在发酵辣木籽仁中保留,提示其潜在功能相关性,因为已有报道肠道微生物代谢可将硫代葡萄糖苷转化为生物活性异硫氰酸酯。总酚含量在所有发酵样品中增加,黑曲霉发酵辣木籽仁的抗氧化能力显著增强。然而,黑曲霉产生了复杂的香气轮廓,富含脂质氧化产物、酚类化合物及其他具有异味和潜在毒理学相关性的代谢物。相比之下,少孢根霉产生2,3-丁二醇、乙偶姻、乙酯和β-石竹烯,赋予甜味、奶油味和果香味,而米曲霉产生异常高水平的2-苯乙醇,为发酵辣木籽仁贡献特征性花香。这些发现表明SSF作为靶向生物加工策略调控辣木籽仁营养和感官品质的潜力。未来工作应侧重于将感官评价与生化谱分析相结合,并进行全面的安全性评估。同位素标记研究以探究GMG和moringin的机制性生物转化……
编译者解读:本研究以三种工业级丝状真菌对辣木籽仁进行固态发酵,系统描绘了非挥发性与挥发性代谢物的菌株依赖性重塑。方法上,靶向生化分析与GC–MS/FID代谢组学联用,兼顾了定量准确性与轮廓覆盖度。从合成生物学视角看,该工作为辣木籽的定向风味与功能改造提供了菌株选择依据:少孢根霉适合风味友好型发酵,黑曲霉则更利于酚类与抗氧化能力提升,但其异味代谢物警示了安全评估的必要性。局限在于缺乏感官验证与体内功效数据,GMG–moringin转化机制仍待同位素示踪阐明。
参考来源
期刊:International Journal of Food Microbiology, 2026
DOI: 10.1016/j.ijfoodmicro.2026.111930
DOI: 10.1016/j.ijfoodmicro.2026.111930