来源:Highly efficient production of β-caryophyllene in Saccharomyces cerevisiae using a novel synthase from Artemisia argyi(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
β-石竹烯是一种双环倍半萜,在农业病虫害防治和绿色农药开发中应用潜力巨大。传统植物提取和化学合成路线受限于产率和规模化瓶颈。本研究从艾蒿中挖掘到高效β-石竹烯合酶ArarCARS,通过分子对接与祖先序列重建筛选关键残基突变体,发现F117Y变体显著提升产量。分子动力学模拟揭示该突变通过增强酶稳定性促进产物积累。结合多步代谢工程策略,在1 L生物反应器中低温补料分批发酵获得35.4 g/L的β-石竹烯滴度,为目前报道最高水平。
研究背景
β-石竹烯具有抗癌、抗炎和神经保护等多种生物活性。在农业领域,它既能作为环保驱虫剂干扰害虫繁殖并吸引天敌,又可作为绿色农药前体。然而,传统植物提取受制于天然丰度低和环境波动大,化学合成则涉及有毒或危险试剂。合成生物学为萜类化合物生产提供了可行替代方案,工程化微生物已成为高效的细胞工厂。β-石竹烯的生物合成以法尼基二磷酸(FPP)为前体,由β-石竹烯合酶(CARS)催化,FPP通过甲基赤藓醇磷酸(MEP)途径或甲羟戊酸(MVA)途径供给。此前研究已在多种微生物中实现了β-石竹烯的微生物合成,Lu等人通过定向进化从黄花蒿中获得了活性更高的CPS变体E353D,并通过共表达MVA途径相关基因、β-丙氨酸代谢及ATP结合盒转运蛋白等策略提升了产量。
研究方法
2.1 质粒与菌株
β-石竹烯合酶基因由Genscript公司合成,并针对酿酒酵母表达进行了密码子优化(氨基酸序列见表S1)。表S2和表S3列出了所有使用的菌株和质粒。引物序列(表S4)由GeneCreate生物工程有限公司(中国武汉)提供。质粒组装通过酵母组装或Gibson组装完成,方法参照此前报道。酿酒酵母菌株CEN.PK2-1D被改造用于β-石竹烯生产。酵母转化采用LiAc/SS载体DNA/PEG方法进行。
【数据】菌株:CEN.PK2-1D;试剂:LiAc/SS载体DNA/PEG;基因合成公司:Genscript;引物供应商:GeneCreate;原文未详述具体转化参数
2.2 培养基与培养条件
大肠杆菌培养于含100 μg/mL氨苄青霉素的Luria-Bertani(LB)培养基中,温度37 °C。酿酒酵母菌株培养于30 °C,使用酵母提取物蛋白胨葡萄糖(YPD)或合成完全(SC)培养基。SC培养基含0.67%酵母氮源(含硫酸铵)、2%葡萄糖及适当的氨基酸缺陷混合物以维持营养缺陷型筛选。
【数据】培养基:LB(含100 μg/mL氨苄青霉素)、YPD、SC(0.67%酵母氮源+2%葡萄糖+氨基酸缺陷混合物);温度:大肠杆菌37 °C,酿酒酵母30 °C;抗生素浓度:100 μg/mL
2.3 摇瓶发酵
将冷冻甘油储液转移至5 mL SC或YPD培养基中启动种子培养,30 °C、220 rpm过夜培养。随后将种子培养液稀释至含50 mL新鲜培养基的250 mL摇瓶中,调整初始OD600至0.1。为便于原位产物回收,加入10%(v/v)肉豆蔻酸异丙酯(IPM)作为有机萃取相。培养物在30 °C、220 rpm连续振荡下维持72 h。
【数据】种子培养基体积:5 mL;发酵培养基体积:50 mL;摇瓶规格:250 mL;初始OD600:0.1;IPM浓度:10%(v/v);温度:30 °C;转速:220 rpm;时间:72 h
2.4 β-石竹烯合酶的生物信息学分析
本研究利用从国家基因组数据中心获取的Ocimum sanctum(PRJNA267195)、Artemisia argyi(PRJNA804646)和Liriodendron chinense(CNA0002404)的公开基因组数据。通过将预测蛋白质组与Pfam数据库(版本28.0)比对,筛选同时含有terpene_synth_N(PF01397)和terpene_synth_C(PF03936)结构域的推定萜类合酶(TPS)基因。基因家族分析使用TBtools中的"Simple HMM Search"工具完成。
【数据】数据库:Pfam version 28.0;结构域:PF01397、PF03936;基因组登录号:PRJNA267195、PRJNA804646、CNA0002404;分析工具:TBtools Simple HMM Search
2.5 β-石竹烯合酶的定点突变
ArarCARS蛋白结构通过AlphaFold2预测。使用Ledock将3个Mg²⁺-FPP分子对接至ArarCARS,网格中心基于NtEAS结构(PDB: 3M01)定义。结构图像使用PyMOL渲染。通过双向最佳命中分析,利用文献中已验证的β-石竹烯合酶序列从26种植物中鉴定同源基因。编码序列用MUSCLE比对,使用IQ-TREE生成最大似然系统发育树(1000次自举重复),以Taiwania cryptomerioides为外群。祖先序列按照既定方法用PAML推断。位点特异性突变通过基于PCR的突变方法按照标准方案引入,引物设计包含所需核苷酸变化。
【数据】蛋白结构预测工具:AlphaFold2;对接工具:Ledock;参考结构:PDB 3M01;物种数:26种植物;系统发育树:1000次自举重复;外群:Taiwania cryptomerioides;突变方法:PCR-based mutagenesis
2.6 分子动力学模拟
分子动力学(MD)模拟使用AMBER22进行。蛋白和溶剂分别采用Amber ff99SB力场和TIP3P水模型。配体参数用通用AMBER力场(GAFF)指定,底物部分电荷通过约束静电势(RESP)方法分配。RESP电荷计算使用Gaussian16_C.01完成,输入文件通过REDServer-Development生成。AMBER22中的tleap模块用于构建初始坐标和拓扑。突变体系统按相同流程制备。在生产运行前,系统经过标准平衡方案,包括多个阶段:氢原子最小化、溶剂分子最小化、在谐波位置约束下进行能量最小化(Mg²⁺离子和Cα原子施加5 kcal mol⁻¹ Å⁻²的约束力)。随后系统在60 ps内加热至300 K(NVT系综),并在1 bar下压力平衡100 ps(NPT系综)。之后通过一组50 ps NPT模拟逐步释放约束直至完全去除。平衡后,在300 K下进行100 ns生产模拟。MD全程使用SHAKE算法约束含氢键。从轨迹中提取结构和能量性质——包括均方根偏差(RMSD)、回转半径、相互作用能以及主链/配体均方根涨落(RMSF)——用于后续分析。分子图像使用PyMOL(版本2.5.2)制备。
【数据】软件:AMBER22;力场:ff99SB、GAFF;水模型:TIP3P;电荷方法:RESP;电荷计算软件:Gaussian16_C.01;位置约束力:5 kcal mol⁻¹ Å⁻²;加热:300 K、60 ps、NVT;压力平衡:1 bar、100 ps、NPT;约束释放:50 ps NPT;生产模拟:100 ns、300 K;SHAKE算法约束含氢键;RMSD/Rg/RMSF/相互作用能分析
2.7 酵母菌株的代谢工程
携带功能表达模块(启动子、终止子、基因、筛选标记和同源臂)的质粒及骨架经限制性内切酶消化。凝胶纯化去除骨架后,线性化表达盒整合至酵母基因组。整合片段包括:来自质粒p900A26的ArarCARS基因、ERG20基因、LEU位点同源臂和LEU标记;来自p908A26的ArarCARS基因(带YPRCdelta15同源臂和TRP标记);来自p905A26的ArarCARS基因、tHMG1基因、URA3同源臂和HIS标记。ERG9表达通过CRISPR-Cas9策略衰减,删除启动子上游激活序列(UAS)中45 bp片段(位置−220至−175)。GAL80删除通过重叠延伸PCR生成含GAL80同源臂融合URA3标记的DNA片段,作为重组模板。
【数据】质粒:p900A26、p908A26、p905A26;标记:LEU、TRP、HIS、URA3;同源臂:LEU位点、YPRCdelta15、URA3;ERG9敲低:CRISPR-Cas9删除45 bp(−220至−175);GAL80删除:重叠延伸PCR+URA3标记
2.8 β-石竹烯过产的补料分批发酵
将冷冻储液在YPD培养基中复苏24 h,然后以2%接种密度接种至800 mL低糖最小培养基(LGM)中。约16 h后,将全部培养物转移至1 L生物反应器。发酵培养基含8 g/L KH₂PO₄·7H₂O、6.2 g/L MgSO₄·7H₂O、15 g/L (NH₄)₂SO₄和40 g/L葡萄糖。温度控制在25 °C或30 °C,pH维持5.0。初始条件为300 rpm搅拌、1 V/V·min通气量和0.02 MPa压力。在此基线条件下溶解氧(DO)校准为100%,pH通过补加氨水控制在5。当DO降至30%以下时,搅拌和通气分别提高至550 rpm和2.2 V/V·min。DO完全耗尽(0%)后不再进行调整。葡萄糖补料速率调整以维持乙醇在2至7 g/L之间。24 h时加入IPM启动原位产物萃取。
【数据】复苏时间:24 h;接种密度:2%;LGM体积:800 mL;生物反应器:1 L;培养基:8 g/L KH₂PO₄·7H₂O、6.2 g/L MgSO₄·7H₂O、15 g/L (NH₄)₂SO₄、40 g/L葡萄糖;温度:25 °C或30 °C;pH:5.0;初始搅拌:300 rpm;初始通气:1 V/V·min;初始压力:0.02 MPa;DO阈值:30%;提高后搅拌:550 rpm;提高后通气:2.2 V/V·min;乙醇维持:2–7 g/L;IPM加入时间:24 h
2.9 β-石竹烯的提取与定量
相分离后,收集IPM层并通过离心(6000 rpm,10 min)澄清。有机相用己烷稀释后进行分析。β-石竹烯通过气相色谱-质谱(GC-MS)定量,使用TR-5MS毛细管柱(30 m × 0.25 mm × 0.25 μm)。柱温程序为:80 °C保持1 min,以10 °C/min升至220 °C,维持15 min。进样口和传输线分别设定为230 °C和240 °C。鉴定基于电子电离(EI)质谱与真实标准品的比较。
【数据】离心:6000 rpm、10 min;色谱柱:TR-5MS(30 m × 0.25 mm × 0.25 μm);柱温程序:80 °C 1 min→10 °C/min→220 °C 15 min;进样口温度:230 °C;传输线温度:240 °C;检测方法:GC-MS(EI)
2.10 NMR检测
经柱层析后,分离得到纯度≥90%的纯β-石竹烯,取10 mg样品溶解并与400 μL CDCl₃充分混合,然后进行600 MHz核磁共振(NMR)氢谱检测并解卷积以确定β-石竹烯的分子结构。
【数据】纯度:≥90%;样品量:10 mg;溶剂:400 μL CDCl₃;NMR频率:600 MHz;检测类型:氢谱
研究结果
3.1 β-石竹烯合酶的功能表征
我们此前已从艾蒿、丁香罗勒和鹅掌楸中表征了多种植物萜类合酶(图1A)。通过在产萜类酵母菌株JTP04中共表达酵母法尼基焦磷酸合酶(ERG20)和这些萜类合酶,成功鉴定了三个未报道的β-石竹烯合酶基因:ArarCARS、OcsaCARS和LichCARS(图1B、1C,表S1,图S1–2)。随后将ArarCARS、OcsaCARS和LichCARS整合至酵母底盘JTP04的染色体中,分别获得单拷贝基因整合菌株JAM1-1、JAM2-1和JAM3-1(表S2)。这些菌株在摇瓶发酵中的β-石竹烯产量分别为335.6 mg/L、306.3 mg/L和33.4 mg/L(图1D)。因此,ArarCARS因其在酵母底盘中的优异活性被选为进一步研究对象。
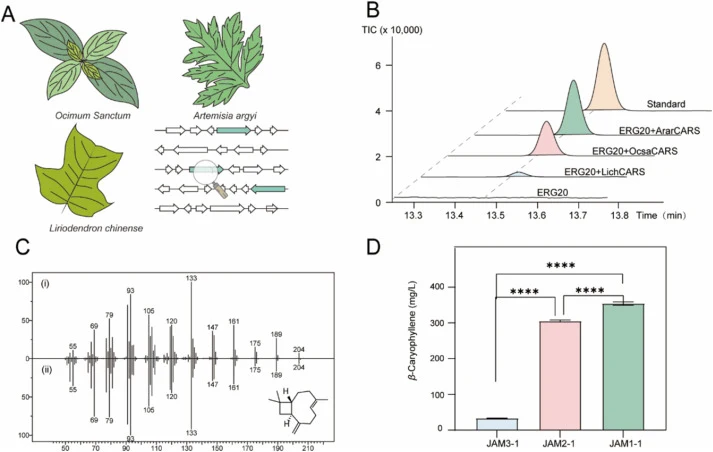
【数据】菌株:JTP04、JAM1-1、JAM2-1、JAM3-1;β-石竹烯产量:335.6 mg/L(ArarCARS)、306.3 mg/L(OcsaCARS)、33.4 mg/L(LichCARS);发酵方式:摇瓶
3.2 结构导向突变与祖先重建用于酶优化
为提升ArarCARS的催化活性和工业稳健性,我们采用定向分子进化方法构建突变体文库。由于底物结合口袋周围的氨基酸通过底物相互作用关键影响酶活性,我们对这些残基进行了丙氨酸扫描突变。我们鉴定了位于底物结合口袋5 Å半径内的23个氨基酸残基(图2A,表S5)。其中两个残基本身即为丙氨酸,因此我们构建了21个丙氨酸取代突变体:R264A、C270A、W273A、V293A、I294A、S295A、T298A、D301A、F372A、Y376A、S401A、S402A、G403A、Y404A、M406A、L407A、R442A、D445A、M517A、Y521A和F527A。重建的祖先酶通常比天然酶表现出更高的可溶性、热稳定性和通用性,为工业应用提供显著优势。因此,我们基于已验证的植物β-石竹烯合酶基因进行了祖先序列重建(ASR)(表S6)。该方法在蒿属中重建了三个祖先β-石竹烯合酶(N1、N2和N3),并在ArarCARS中鉴定了13个关键突变位点:F117Y、Y134F、T140N、G160D、V161I、D174E、V176I、N189T、G232D、M418I、A503P、G536D和S547P(图2B,图S3)。我们构建了包含全部34个变体(21个丙氨酸突变体加13个祖先突变)的综合突变体文库,并使用24孔板发酵筛选β-石竹烯产量。15个突变体表现出显著功能丧失,5个表现出产量提升趋势:ArarCARS^C270A、ArarCARS^S295A、ArarCARS^F117Y、ArarCARS^D174E和ArarCARS^N189T(图2C)。这些有前景的突变体在摇瓶发酵中进一步验证,其中ArarCARS^F117Y产量最高,达409.4 mg/L——相比野生型对照提升22%(图2D)。这表明结构导向突变与祖先重建的成功整合用于酶优化。
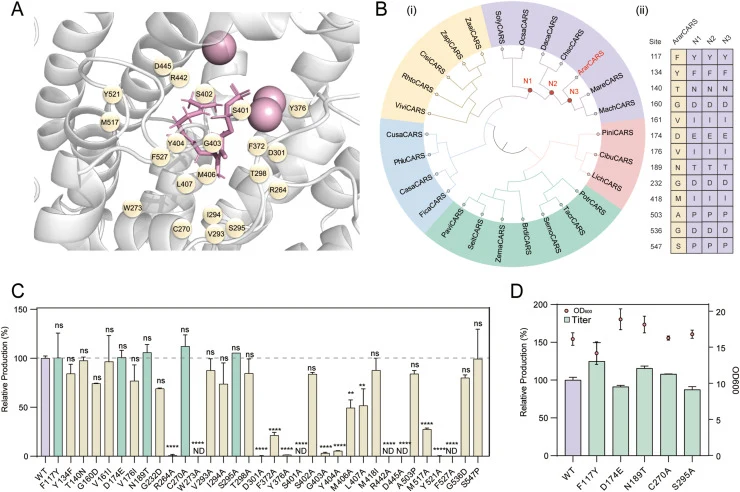
【数据】底物结合口袋5 Å内残基:23个;丙氨酸突变体:21个(R264A、C270A、W273A、V293A、I294A、S295A、T298A、D301A、F372A、Y376A、S401A、S402A、G403A、Y404A、M406A、L407A、R442A、D445A、M517A、Y521A、F527A);祖先合酶:N1、N2、N3;祖先突变位点:13个(F117Y、Y134F、T140N、G160D、V161I、D174E、V176I、N189T、G232D、M418I、A503P、G536D、S547P);总变体数:34个;功能丧失突变体:15个;产量提升突变体:5个;最高产量:409.4 mg/L(F117Y);提升幅度:22%;筛选方式:24孔板;验证方式:摇瓶发酵
3.3 分子动力学模拟揭示F117Y突变体的增强稳定性
为探究F117Y突变体增强β-石竹烯产量的结构机制,我们对野生型和突变型FPP结合的ArarCARS进行了分子对接分析(图3A)。虽然残基F117位于酶表面(距活性位点32.3 Å),不直接参与催化,但其被酪氨酸取代后,在Tyr117的酚羟基与Gln90的酰胺基之间引入了氢键。这种相互作用可能增强蛋白质折叠和结构稳定性,为突变体性能提升提供了合理解释。为进一步评估野生型和突变体酶的动态稳定性,我们对ArarCARS-FPP和ArarCARS^F117Y-FPP复合物在300 K下进行了100 ns分子动力学(MD)模拟。均方根偏差(RMSD)分析显示,ArarCARS-FPP复合物最初在0.5 Å附近波动,40 ns后稳定在1.0 Å,而F117Y突变体在整个模拟过程中稳定在0.5 Å(图3B)。这表明突变体在底物结合后采取更刚性、更稳定的构象。为评估局部柔性,我们分析了均方根涨落(RMSF),发现两个复合物的涨落均在0至0.4 nm之间(图3C)。然而,F117Y突变体中残基117周围区域的柔性降低,表明局部刚性增强。此外,回转半径(Rg)计算表明,经过初始平衡阶段后,F117Y突变体采取更紧凑的结构,平均Rg为24.8087 Å,而野生型酶为24.8949 Å(图3D)。总体而言,这些发现表明F117Y突变通过形成与Gln90的稳定氢键及随后降低构象柔性来增强ArarCARS的结构稳定性。这种刚性增加可能有助于观察到的β-石竹烯生物合成产量提升,为未来酶工程提供了有价值的见解。
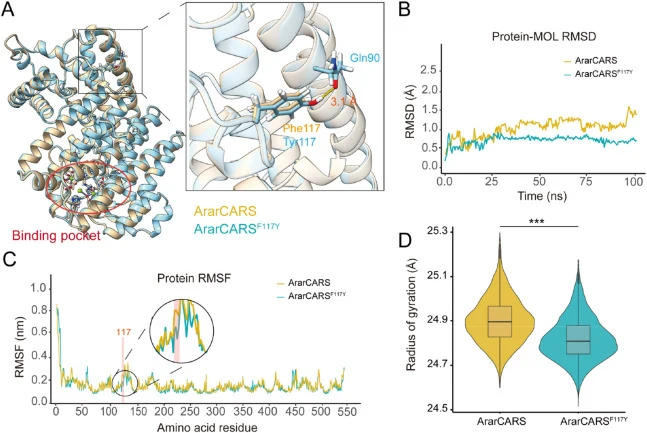
【数据】F117距活性位点距离:32.3 Å;氢键:Tyr117酚羟基与Gln90酰胺基;MD模拟时间:100 ns;温度:300 K;RMSD:野生型40 ns后稳定于1.0 Å,突变体全程稳定于0.5 Å;RMSF范围:0–0.4 nm;平均Rg:突变体24.8087 Å vs 野生型24.8949 Å
3.4 增强β-石竹烯产量的代谢工程策略
对酿酒酵母JTP04底盘应用了系统性多步代谢工程策略以开发增强β-石竹烯生物合成的菌株。初始菌株(JAM01)通过整合模块I构建,该模块含GAL启动子驱动的ArarCARS^F117Y和ERG20。该基础菌株产生409.4 mg/L β-石竹烯。为扩大生产能力,我们随后引入两个额外遗传模块:模块II(第二拷贝ArarCARS^F117Y)和模块III(第三拷贝ArarCARS^F117Y及限速酶基因tHMG1)(图4A、4B,表S2)。通过前体通量优化解决了关键代谢瓶颈。由于ERG9(角鲨烯合酶)竞争性消耗FPP用于麦角固醇生物合成,我们敲低ERG9以增加FPP用于β-石竹烯合成的可用性,同时维持足够的麦角固醇生产以保障细胞活力。所得菌株(JAM101)产量相比初始JAM1-1提升3.6倍(1204.2 mg/L)(图4A、4B,表S2)。为增强工业适用性,我们进一步改造了半乳糖诱导系统。通过在菌株JAM102中敲除Gal80,实现了无需补充半乳糖的启动子激活,从而降低发酵成本。最终优化菌株达到1458.7 mg/L β-石竹烯产量,相对于初始菌株提升334.7%,证明了组合工程策略的成功(图4A、4B,表S2)。
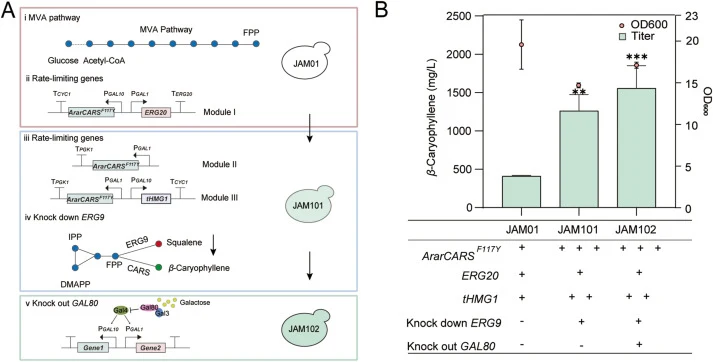
【数据】菌株:JAM01、JAM101、JAM102;模块I产量:409.4 mg/L;模块II+III:第二、三拷贝ArarCARS^F117Y + tHMG1;ERG9敲低后产量:1204.2 mg/L(提升3.6倍);Gal80敲除后产量:1458.7 mg/L;相对初始菌株提升:334.7%
3.5 优化补料分批发酵实现高滴度β-石竹烯生产
在1 L生物反应器中进行补料分批发酵以评估菌株JAM102的工业潜力。最初在30 °C下发酵,120 h后β-石竹烯滴度为26.8 g/L(图5A)。基于低温有利于β-石竹烯积累的报道,我们在摇瓶中评估了不同温度下的β-石竹烯产量,确定25 °C为最优(图S4)。因此,JAM102在25 °C下以其他条件相同的方式进行补料分批发酵。虽然细胞生长未受影响,但生产曲线显示后期积累显著增强,最终在120 h达到创纪录的35.4 g/L滴度——迄今报道的最高产量(图5B、5C、5D,表1)。值得注意的是,虽然25 °C下初始生产略慢于30 °C,但后期产量的显著提升证明了温度优化对β-石竹烯生产的有效性。
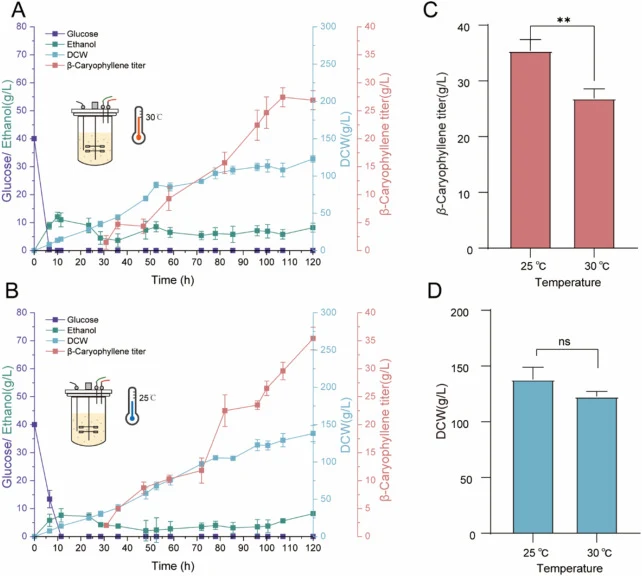
【数据】生物反应器:1 L;30 °C产量:26.8 g/L(120 h);最优温度:25 °C;25 °C产量:35.4 g/L(120 h);细胞生长:不受温度影响;25 °C初始生产略慢于30 °C
讨论与解读
本研究通过筛选高效β-石竹烯合酶、构建突变体文库及增强MVA途径通量等策略系统优化了β-石竹烯生物合成,摇瓶培养滴度达1458.7 mg/L,1 L生物反应器放大后达35.4 g/L,为迄今报道最高水平。F117Y突变提升产物产量,但其底层机制——是改善蛋白表达、可溶性还是催化活性——尚待完全阐明。分子对接和分子动力学模拟提示该突变可能增强蛋白稳定性,但催化机制的明确阐明需要系统实验方法,尤其是晶体结构解析。当前突变体活性仅提升22%,未来将通过累积突变和结构导向理性设计进一步提升催化效率。鉴于解脂耶氏酵母底盘在提升代谢工程效率方面的潜力,在该系统中应用ArarCARS^F117Y值得探究,有望实现产量显著提升。此外,尽管当前已实现高滴度,葡萄糖补料条件下的碳转化效率仍需进一步优化。
编译者解读
该研究的方法论亮点在于将祖先序列重建与结构导向突变相结合——从蒿属祖先酶中提取的13个突变位点中筛选出F117Y,这一策略比单纯随机突变更有方向性。但22%的活性提升幅度有限,说明单一表面残基的氢键稳定效应难以大幅改变催化效率。真正将产量推至35.4 g/L的是多拷贝整合、ERG9敲低和Gal80敲除的组合代谢工程。低温发酵策略虽有效,但25 °C下初始生产速率下降提示需权衡生产周期与最终滴度。该工作为倍半萜类化合物的工业规模微生物合成提供了可复制的工程框架。
参考来源
期刊:Synthetic and Systems Biotechnology, 2027
DOI: 10.1016/j.synbio.2026.04.017
DOI: 10.1016/j.synbio.2026.04.017