来源:De novo biosynthesis of 1,5-diamino-2-hydroxypentane from glucose via combination of fermentation and whole-cell catalysis(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
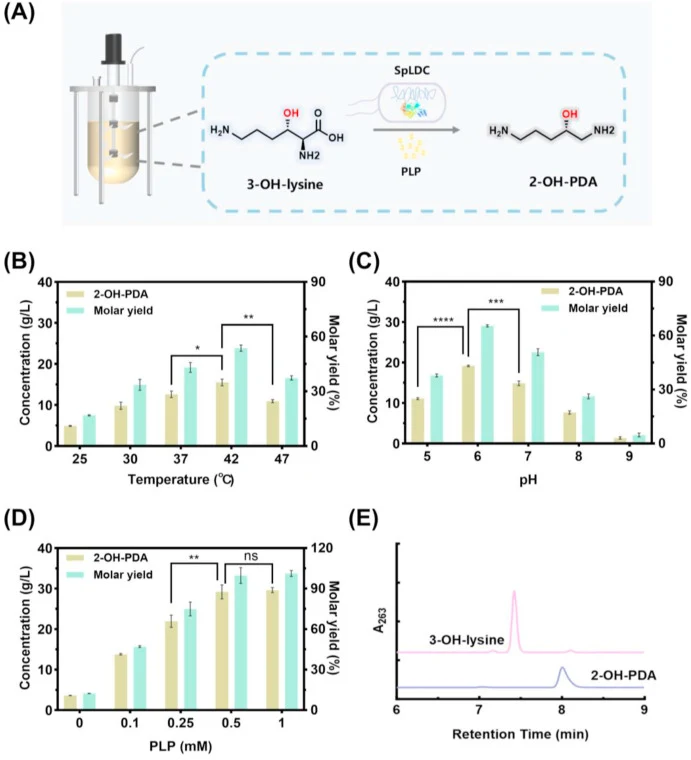
1,5-二氨基-2-羟基戊烷(2-OH-PDA)是一种结构新颖的脂肪族β-氨基醇,兼具β-氨基醇模块与伯胺基团,在合成化学与医药领域具有广阔应用前景。本研究首次构建了从葡萄糖出发的2-OH-PDA全生物合成路线:在高产L-赖氨酸的大肠杆菌底盘NT1003中异源表达Fe²⁺/α-酮戊二酸依赖的L-赖氨酸-3-羟化酶(K3H),通过启动子/RBS/基因拷贝数优化、引入L-谷氨酸驱动的α-KG再生系统以及发酵条件优化,在5 L生物反应器中实现40.2 g/L 3-羟基赖氨酸(3-OH-lysine)的产量;随后利用赖氨酸脱羧酶SpLDC进行全细胞催化,以99.7%的摩尔转化率获得29.2 g/L 2-OH-PDA。该工作为多功能氨基醇的绿色生物合成提供了可推广的模块化蓝图。
研究背景
β-氨基醇类化合物在相邻碳原子上同时带有氨基(–NH₂)和羟基(–OH),是合成化学与药物化学中的通用砌块。其双重氢键能力和金属配位特性使其成为众多生物活性分子不可或缺的结构基元。β-氨基醇骨架是氯霉素、甲砜霉素等临床重要抗生素的关键药效团,同时也作为药物合成的重要中间体——典型代表是(S)-2-氨基-3-甲基-1-丁醇,它是FDA批准的HIV-1整合酶抑制剂埃替拉韦工业生产的 chiral 前体。然而,尽管芳香族和环状β-氨基醇已被广泛研究,具有新颖结构和多官能团的脂肪族β-氨基醇报道甚少,远未被充分开发。2-OH-PDA正是基于其独特分子结构而选定的目标分子:与腐胺、尸胺等常规生物基二胺相比,2-OH-PDA在单一脂肪链中同时包含β-氨基醇模块和空间分离的伯胺基团。这种结构差异赋予2-OH-PDA独特的反应性。传统3-OH-lysine生产主要依赖外源L-赖氨酸补加或体外酶催化,成本高昂,限制了工业可扩展性与经济可行性。因此,构建从廉价碳源葡萄糖出发的从头合成路线具有重要价值。
研究方法
2.1 化学试剂
L-赖氨酸盐酸盐、α-酮戊二酸(α-KG)、(NH₄)₂Fe(SO₄)₂·6H₂O、谷氨酸和抗坏血酸钠购自Sigma-Aldrich公司(中国上海)。其他所有化学试剂均购自当地供应商(中国南京),为分析纯级别。
【数据】试剂:L-赖氨酸盐酸盐、α-KG、(NH₄)₂Fe(SO₄)₂·6H₂O、谷氨酸、抗坏血酸钠;供应商:Sigma-Aldrich(上海);其他试剂:分析纯,南京本地供应商
2.2 菌株、质粒与引物
大肠杆菌DH5α用作质粒构建的克隆宿主。大肠杆菌BL21(DE3)用于蛋白表达。产L-赖氨酸菌株大肠杆菌NT1003由Yu Long教授提供,用作通过K3H表达进行3-OH-lysine生物合成的底盘。本研究所用质粒(包括所有重组构建体)列于表S1。相应引物详见表S2。
【数据】克隆宿主:E. coli DH5α;表达宿主:E. coli BL21(DE3);底盘菌株:E. coli NT1003(由Yu Long教授提供);质粒信息:表S1;引物信息:表S2
2.3 3-OH-lysine生产菌株的构建
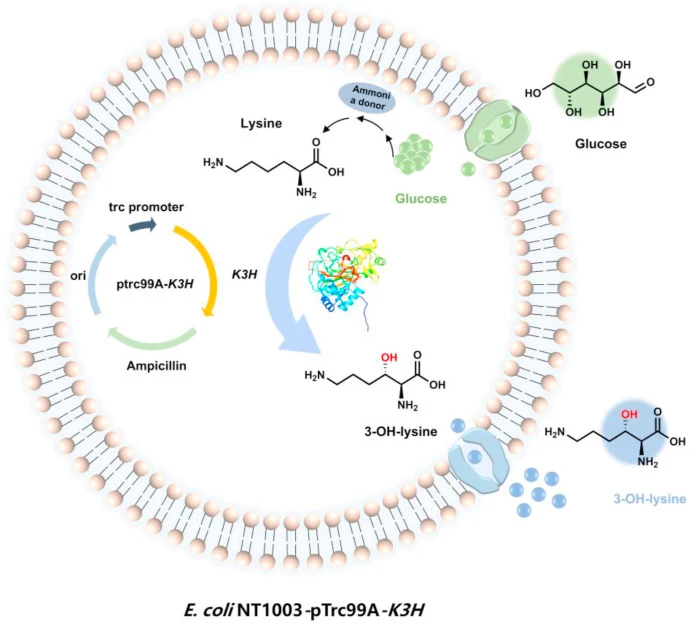
来自耐辐射考克氏菌(Kocuria radiotolerans)的K3H基因经密码子优化以适应大肠杆菌表达,由安徽通用生物科技有限公司合成。该基因首先克隆到pRSFDuet-1载体的NdeI和XhoI位点之间。随后,通过PCR扩增K3H片段,经同源重组插入pTrc99A载体的EcoRI和HindIII位点之间,得到重组质粒pTrc99A-K3H。该重组质粒转化到大肠杆菌NT1003菌株中,获得大肠杆菌NT1003-pTrc99A-K3H。
【数据】基因来源:Kocuria radiotolerans K3H;密码子优化后由安徽通用生物合成;初始载体:pRSFDuet-1(NdeI/XhoI);表达载体:pTrc99A(EcoRI/HindIII);宿主:E. coli NT1003
2.4 摇瓶中3-OH-lysine生产的发酵优化
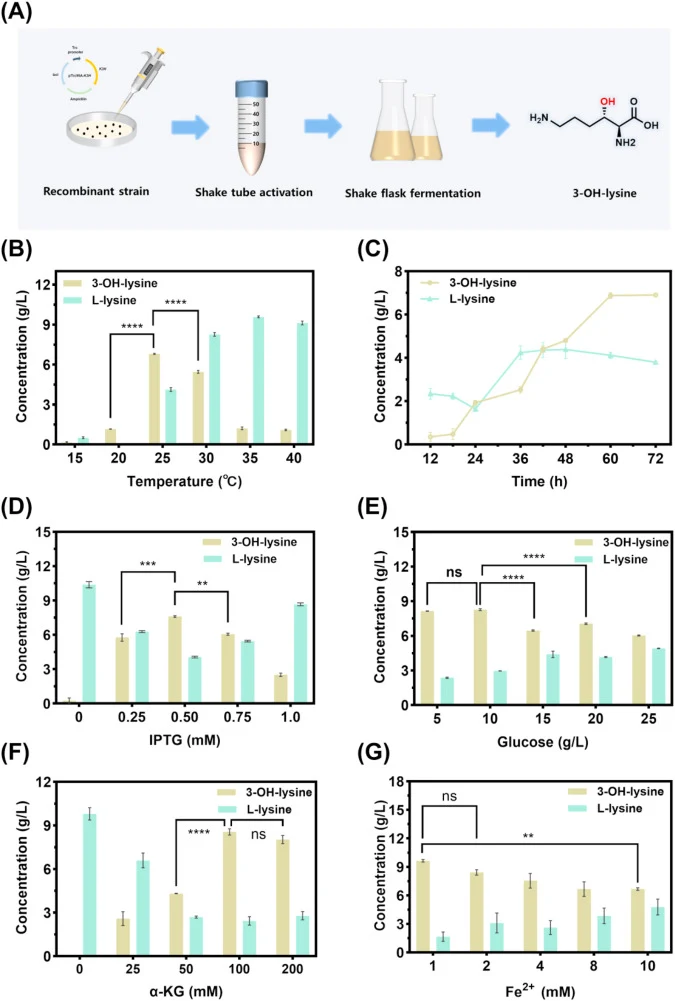
将重组菌株大肠杆菌NT1003-pTrc99A-K3H的单菌落接种到5 mL LB液体培养基中,37 °C、200 rpm培养12 h。随后,将1 mL种子培养液转移到含有100 mL新鲜LB培养基的500 mL摇瓶中,37 °C、200 rpm培养。当600 nm光密度(OD₆₀₀)达到0.6–0.8时,加入异丙基-β-D-硫代半乳糖苷(IPTG)至终浓度0.5 mM,随后在25 °C继续诱导24 h。为研究关键参数对3-OH-lysine生产的影响,在500 mL摇瓶中仅改变一个因素而保持其他条件不变进行实验。测试条件包括:诱导温度(15、20、25、30、35和40 °C)、发酵培养时长(12、24、36、48、60和72 h)、IPTG浓度(0、0.1、0.2、0.4、0.6、0.8和1.0 mM)、初始葡萄糖浓度(5、10、15、20和25 g/L)、α-KG浓度(0、50、100、150和200 mM)以及Fe²⁺浓度(0、0.5、1、2、5和10 mM)。所有实验均设三个平行。
【数据】种子培养:5 mL LB,37°C,200 rpm,12h;发酵:100 mL LB/500 mL摇瓶,37°C,200 rpm;诱导条件:OD₆₀₀ 0.6–0.8,IPTG 0.5 mM,25°C,24h;温度梯度:15/20/25/30/35/40°C;时长梯度:12/24/36/48/60/72h;IPTG梯度:0/0.1/0.2/0.4/0.6/0.8/1.0 mM;葡萄糖梯度:5/10/15/20/25 g/L;α-KG梯度:0/50/100/150/200 mM;Fe²⁺梯度:0/0.5/1/2/5/10 mM;平行:3个
2.5 基因工程增强3-OH-lysine生物合成
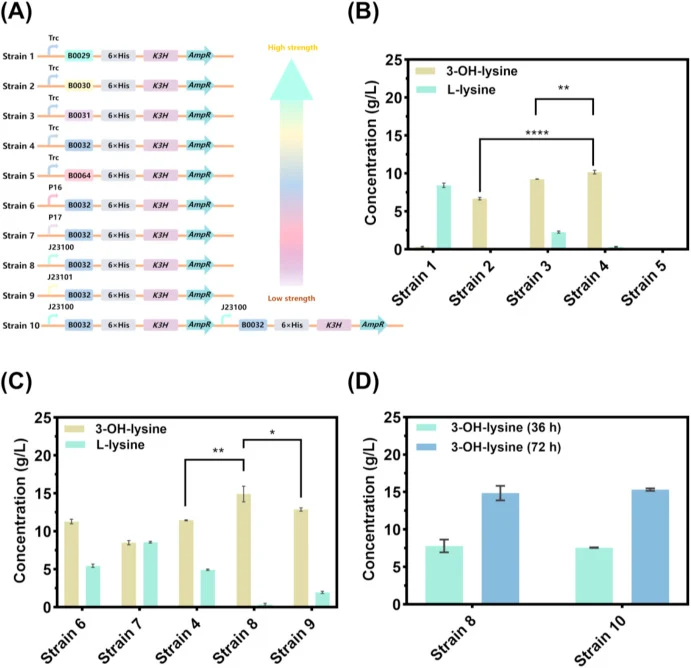
在基因水平上优化K3H基因的表达。首先,为评估翻译效率的影响,从iGEM Registry(http://parts.igem.org/Ribosome_Binding_Sites/Catalog)选取了四个强度不同的额外RBS序列(B0029、B0030、B0032和B0064)。以pTrc99A-K3H(含天然B0031 RBS)为模板,使用SnapGene软件设计的引物进行反向PCR以替换原始RBS。每个得到的质粒构建体转化到大肠杆菌NT1003中,产生突变菌株用于后续分析。随后,研究启动子强度对转录活性的影响。选取了四个具有不同表征强度的启动子(PJ23100、PJ23101、P16和P17)。以携带最有效RBS变体的质粒为模板,再次采用反向PCR替换天然trc启动子。每个启动子重组质粒转化到大肠杆菌NT1003中,构建一系列菌株用于进一步评估。最后,为研究基因剂量增加的影响,构建了双拷贝K3H表达盒。以含有最优启动子-RBS组合的亲本质粒为模板,使用设计用于引入表达单元串联重复的引物进行反向PCR。所得线性产物转化到大肠杆菌NT1003后通过体内同源重组自连,得到携带两个连续K3H表达盒拷贝的质粒。
【数据】RBS变体:B0029、B0030、B0032、B0064(对照B0031);启动子变体:PJ23100、PJ23101、P16、P17(对照Trc);方法:反向PCR,SnapGene设计引物;基因剂量:双拷贝K3H表达盒串联;宿主:E. coli NT1003
2.6 L-谷氨酸驱动的α-KG供应系统的构建
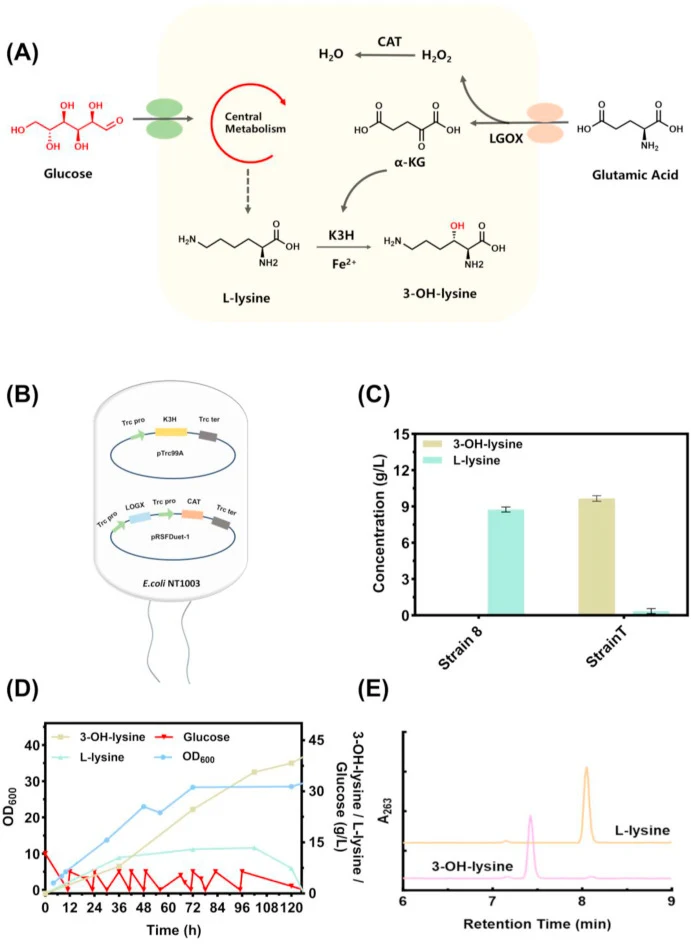
为实现α-KG的经济供应,通过共表达来自绿色产色链霉菌(Streptomyces viridochromogenes)的L-谷氨酸氧化酶(LGOX)和来自短小芽孢杆菌(Bacillus pumilus)的过氧化氢酶(CAT)构建酶再生系统。通过反向PCR将天然T7启动子替换为trc启动子,以允许在非T7系统中组成型表达。重组质粒pRSFDuet-trc-LGOX-CAT经测序验证。该质粒与经启动子、RBS和基因拷贝数优化的工程化K3H表达构建体共转化到大肠杆菌NT1003中,产生双质粒菌株。α-KG供应系统的功能在摇瓶中评估,比较该菌株与仅携带K3H表达质粒的对照菌株之间的3-OH-lysine产量。所有培养物在相同条件下维持,诱导时添加25 mM L-谷氨酸并每12 h补充一次。
【数据】LGOX来源:Streptomyces viridochromogenes;CAT来源:Bacillus pumilus;启动子替换:T7→trc(反向PCR);质粒:pRSFDuet-trc-LGOX-CAT;L-谷氨酸浓度:25 mM,每12h补充;宿主:E. coli NT1003(双质粒)
2.7 5 L生物反应器中3-OH-lysine的发酵
为在受控生物反应器条件下评估整合的α-KG供应与赖氨酸羟化通路的性能,将补料分批发酵放大到5 L生物反应器。种子在500 mL摇瓶中用100 mL LB培养基、37 °C、200 rpm制备12 h,然后转移到含2.5 L确定发酵培养基的5 L发酵罐中(培养基成分:20 g/L葡萄糖、10 g/L (NH₄)₂SO₄、5 g/L蛋白胨、2 g/L酵母提取物、0.5 g/L KCl、0.032 g/L FeSO₄·7H₂O、1.6 g/L MgSO₄·7H₂O、0.086 g/L ZnSO₄·7H₂O、0.077 g/L CuSO₄、0.032 g/L MnSO₄·H₂O、10 g/L CaCO₃、0.3 g/L甲硫氨酸、0.1 g/L苏氨酸、0.06 g/L维生素B1、0.01 g/L烟酰胺、30 μg/L生物素)。初始发酵温度为37 °C。通过自动添加25%(w/v)NH₄OH维持pH在7.0。通过调节搅拌速度(300–800 rpm)和通气速率(1.0–4.0 vvm)保持溶解氧(DO)高于30%。当残余葡萄糖耗尽时(8–10 h)启动补料分批。含500 g/L葡萄糖和250 g/L (NH₄)₂SO₄的补料液连续供应,调节补料速率以维持葡萄糖浓度低于5 g/L。当OD₆₀₀达到约10时,加入0.5 mM IPTG诱导蛋白表达。同时,基于前期摇瓶实验补充25 mM L-谷氨酸(每12 h补充25 mM L-谷氨酸以确保充足的α-KG供应),温度切换至25 °C。当3-OH-lysine浓度增长缓慢时终止补料,随后继续培养6 h以转化残余底物。最后,发酵液在4 °C、8000×g离心15 min,上清液直接用于后续脱羧反应(无需pH调节或额外纯化)。
【数据】发酵规模:5 L生物反应器,工作体积2.5 L;培养基:20 g/L葡萄糖、10 g/L (NH₄)₂SO₄、5 g/L蛋白胨、2 g/L酵母提取物、0.5 g/L KCl、0.032 g/L FeSO₄·7H₂O、1.6 g/L MgSO₄·7H₂O、0.086 g/L ZnSO₄·7H₂O、0.077 g/L CuSO₄、0.032 g/L MnSO₄·H₂O、10 g/L CaCO₃、0.3 g/L甲硫氨酸、0.1 g/L苏氨酸、0.06 g/L维生素B1、0.01 g/L烟酰胺、30 μg/L生物素;初始温度:37°C;pH:7.0(25% NH₄OH自动调节);DO:>30%;搅拌:300–800 rpm;通气:1.0–4.0 vvm;补料启动:8–10 h(葡萄糖耗尽);补料液:500 g/L葡萄糖+250 g/L (NH₄)₂SO₄;葡萄糖维持:<5 g/L;诱导:OD₆₀₀≈10,IPTG 0.5 mM;L-谷氨酸:25 mM,每12h补充;诱导温度:25°C;补料后延长:6h;离心:8000×g,15 min,4°C
2.8 利用脱羧酶SpLDC全细胞合成2-OH-PDA
携带SpLDC基因的质粒pETDuet-SpLDC转化到大肠杆菌BL21(DE3)中用于重组蛋白表达。全细胞生物催化剂通过将工程菌株在含LB培养基的5 L生物反应器中37 °C培养制备。在OD₆₀₀为0.4时加入IPTG至终浓度0.1 mM诱导蛋白表达,随后在18 °C孵育14 h。通过离心(8000×g,15 min,4 °C)收获细胞,用50 mM磷酸缓冲液(pH 7.0)洗涤,并重悬于相同缓冲液中。为系统评估各因素对2-OH-PDA合成的影响,仅改变所研究的参数而保持其他条件不变进行实验。考察了反应温度(25、30、37、42、47 °C)、pH(5.0、6.0、7.0、8.0、9.0)和磷酸吡哆醛(PLP)浓度(0、0.1、0.25、……)的影响。
【数据】质粒:pETDuet-SpLDC;表达宿主:E. coli BL21(DE3);培养规模:5 L生物反应器,LB培养基,37°C;诱导:OD₆₀₀ 0.4,IPTG 0.1 mM,18°C,14h;收获:8000×g,15 min,4°C;洗涤/重悬缓冲液:50 mM磷酸缓冲液,pH 7.0;温度梯度:25/30/37/42/47°C;pH梯度:5.0/6.0/7.0/8.0/9.0;PLP梯度:0/0.1/0.25/…(原文截断)
研究结果
3.1 3-OH-lysine从头合成菌株的构建
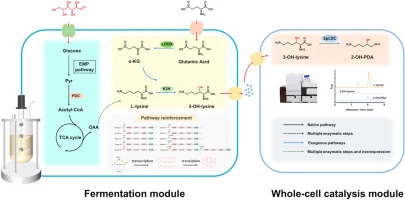
此前3-OH-lysine的生产主要依赖外源L-赖氨酸补加 via 体外酶催化(如KDO1、KDO2或KDO5)或K3H介导的全细胞生物催化。这带来显著的成本负担,限制了工业可扩展性和经济可行性。如图1所示,构建了发酵菌株大肠杆菌NT1003-pTrc99A-K3H用于3-OH-lysine的从头生物合成。羟化酶K3H的可溶性表达通过SDS-PAGE分析确认(图S1)。该工程菌株在摇瓶发酵中24 h内产生2.3 g/L 3-OH-lysine(图S2),效价通过HPLC定量,使用本课题组前期研究中纯化的3-OH-lysine建立的标准曲线。这些结果共同确认了功能性3-OH-lysine从头生物合成菌株的成功构建。
【数据】菌株:E. coli NT1003-pTrc99A-K3H;3-OH-lysine产量:2.3 g/L(24h,摇瓶);检测方法:HPLC,标准曲线法;可溶性表达验证:SDS-PAGE(图S1)
3.2 摇瓶中3-OH-lysine生产的发酵参数优化
为提高3-OH-lysine产量,对关键参数进行了优化(图2A)。如图2B所示,3-OH-lysine浓度随诱导温度从15 °C升高到25 °C而增加,在25 °C达到最大值6.78 g/L。温度进一步超过25 °C导致3-OH-lysine产量下降。该结果表明K3H活性依赖于正确的蛋白折叠和热稳定性。低于25 °C时,较慢的蛋白合成速率限制了活性蛋白的积累;相对较高的温度则增加蛋白错误折叠和酶变性。培养时长对3-OH-lysine生产的影响见图2C。3-OH-lysine浓度从12 h到60 h持续增加,达到峰值6.87 g/L。在60 h至72 h之间,积累以降低的速率继续,可能是由于前体限制或代谢稳态。尽管如此,选择72 h作为后续摇瓶实验的标准培养时间以最大化产量。IPTG浓度的影响也进行了评估(图2D)。3-OH-lysine效价随IPTG浓度从0增加到0.5 mM而升高,在0.5 mM达到最大值7.61 g/L。IPTG浓度进一步增加导致产量下降。该现象可能是因为较高IPTG浓度使蛋白错误折叠形成包涵体并增加细胞毒性,最终降低3-OH-lysine产量。如图2E所示,葡萄糖浓度对3-OH-lysine生产的影响表明最佳葡萄糖浓度为10 g/L,最大效价8.27 g/L。高于此浓度观察到效价显著下降,葡萄糖过量下的这种下降与分解代谢阻遏一致——这是大肠杆菌中已被充分记录的现象,升高的葡萄糖水平通过下调cAMP抑制非偏好代谢通路的表达。α-KG浓度变化与3-OH-lysine生产的关系见图2F。效价随α-KG补充从0到100 mM稳步增加,在100 mM达到最大值8.56 g/L。浓度进一步超过100 mM后,效价几乎保持不变。最后,由于Fe²⁺对K3H活性至关重要,对其浓度进行了优化。如图2G所示,3-OH-lysine效价在1.0 mM Fe²⁺时达到最高值9.65 g/L,而在10 mM时显著下降,可能是由于金属离子毒性。该观察与Feng等人的报道一致,其证明过量金属离子可抑制酶活性。最终,在诱导温度25 °C、培养时间72 h、IPTG浓度0.5 mM、初始葡萄糖浓度10 g/L、α-KG补充100 mM、Fe²⁺ 1 mM的摇瓶发酵条件下,获得9.65 g/L的3-OH-lysine浓度。
【数据】最优诱导温度:25°C(6.78 g/L);最优培养时长:72h(峰值60h为6.87 g/L);最优IPTG:0.5 mM(7.61 g/L);最优葡萄糖:10 g/L(8.27 g/L);最优α-KG:100 mM(8.56 g/L);最优Fe²⁺:1.0 mM(9.65 g/L);综合最优条件摇瓶产量:9.65 g/L
3.3 K3H基因表达强度的优化
精细调控限速酶的表达是代谢工程中增强产物合成的核心策略。因此,基于摇瓶发酵的最优条件(第3.2节),通过工程化RBS、启动子和基因拷贝数对K3H基因的表达进行了系统优化。RBS工程调控翻译起始是平衡酶表达和降低代谢负担的广泛使用方法。本研究选取了五个翻译强度不同的RBS变体(B0029 > B0030 > B0032 > B0064 > B0031;图S3),引入工程菌株(菌株1–5;图3A)。如图3B所示,菌株4(携带B0032)产生最高的3-OH-lysine效价10.1 g/L,比天然RBS对照(菌株3,9.2 g/L)提高9.7%。相比之下,更强(菌株1–2)和更弱(菌株5)的RBS变体均导致产物积累减少。这些发现表明中等翻译强度最有利于3-OH-lysine合成,且翻译强度与产物效价之间呈非线性关系。这种非线性关系反映了酶表达与折叠之间的权衡。强RBS变体(如B0029)压垮细胞折叠能力,导致K3H聚集;弱变体(如B0031)则使表达低于通量需求。B0032提供了最佳平衡以最大化活性K3H,从而产生最高的3-OH-lysine产量。这些结果与先前研究相似。接下来,为进一步增强转录效率,在菌株4背景下评估了五个强度递减的启动子(PJ23100 > PJ23101 > Trc > P16 > P17;图S4),得到菌株6–9(图3A)。如图3C所示,结果表明3-OH-lysine产量随启动子强度增强而增加。菌株8(PJ23100)达到最大效价14.91 g/L,比原始Trc启动子(菌株4)提高30%。这意味着强启动子驱动的增强转录提升了K3H mRNA水平并显著促进3-OH-lysine合成,指出转录能力是宿主菌株的关键瓶颈。为评估基因剂量对3-OH-lysine合成的影响,通过将额外的PJ23100-B0032-K3H表达盒整合到菌株8的基因组中构建了双拷贝菌株(菌株10)(图3A)。如图3D所示,菌株8和菌株10在36 h或72 h的3-OH-lysine产量均无显著差异。这表明增加基因剂量并未增强酶表达或产物形成,可能是由于转录/翻译能力限制或代谢压力升高。该结果与某些系统中基因剂量与蛋白表达水平正相关的现象形成对比,表明这种关系并非普遍适用。总体而言,启动子强度对3-OH-lysine生产影响最显著,中等RBS强度最优,基因重复无益处。因此,选择携带PJ23100启动子、B0032 RBS和单拷贝K3H基因的菌株8作为后续实验的最优菌株。
【数据】RBS变体强度排序:B0029 > B0030 > B0032 > B0064 > B0031;最优RBS:B0032(菌株4,10.1 g/L,比对照提高9.7%);对照菌株3(天然RBS):9.2 g/L;启动子强度排序:PJ23100 > PJ23101 > Trc > P16 > P17;最优启动子:PJ23100(菌株8,14.91 g/L,比Trc提高30%);双拷贝菌株10 vs 菌株8:36h和72h均无显著差异;最优菌株:菌株8(PJ23100-B0032-K3H单拷贝)
3.4 L-谷氨酸驱动的α-KG供应系统的构建
α-KG是Fe²⁺/α-KG依赖双加氧酶(如K3H,催化L-赖氨酸羟化为3-OH-lysine)的必需辅底物。为规避外源α-KG补充相关的成本和可扩展性限制,基于LGOX和CAT的共表达构建了酶再生系统(图4A)。LGOX和CAT的成功共表达通过SDS-PAGE验证(图S5)。工程菌株T的设计整合了该α-KG供应系统……
【数据】α-KG供应系统:LGOX+CAT共表达;验证方法:SDS-PAGE(图S5);工程菌株:T(双质粒)
讨论与解读
本研究报道了首个从葡萄糖出发经两步发酵-生物催化过程合成2-OH-PDA的从头生物合成路线。通过整合高产L-赖氨酸的大肠杆菌底盘、K3H羟化酶和谷氨酸驱动的α-KG供应模块,在5 L生物反应器中实现40.2 g/L 3-OH-lysine,消除了对外源L-赖氨酸和昂贵α-KG的需求。随后SpLDC全细胞脱羧将3-OH-lysine转化为2-OH-PDA,摩尔产率99.7%(29.2 g/L)。尽管L-谷氨酸需外源供应,但其作为低成本、可扩展的原料,相比α-KG降低了工艺复杂性。该模块化策略将内源前体过量生产、α-KG供应和酶级联相耦合,为多功能氨基醇的生物合成提供了可推广的蓝图。
编译者解读:该工作的核心亮点在于用廉价L-谷氨酸替代昂贵α-KG作为辅底物,通过LGOX-CAT双酶再生系统持续供给α-KG,大幅降低羟化步骤成本。启动子/RBS/拷贝数的系统优化表明,K3H表达的转录瓶颈比翻译瓶颈更关键——强启动子提升30%而RBS仅提升9.7%,且基因加倍无效,提示宿主转录机器已近饱和。两步法(发酵+全细胞催化)避免了脱羧酶与羟化酶在同一细胞内的辅因子冲突,但上清液直接用于催化也意味着产物分离纯化仍待解决。总体而言,该路线为β-氨基醇类化合物的绿色制造提供了可复制的模块化范式。
参考来源
期刊:Synthetic and Systems Biotechnology, 2026
DOI: 10.1016/j.synbio.2026.01.036
DOI: 10.1016/j.synbio.2026.01.036