来源:Biosynthesis and functionalization of recombinant bovine lactoferrin: Alginate-mediated stabilization and MTGase-induced gelation for anthocyanin delivery(International Journal of Biological Macromolecules)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
牛乳铁蛋白(BLF)具有抗菌、抗氧化和免疫调节等多种生物活性,但传统提取效率低、胃肠道稳定性差、应用形式单一,严重制约其实际应用。本研究构建了一条从高效生产到功能应用的完整技术路径:通过信号肽工程与分子伴侣共表达优化毕赤酵母表达系统,摇瓶发酵实现重组BLF(rBLF)产量232.6 mg/L;利用海藻酸钠(NaAlg)静电自组装形成纳米复合物,显著提升胃蛋白酶抗性;再通过微生物转谷氨酰胺酶(MTGase)催化交联构建三维水凝胶递送系统,实现花青素的包封与缓释。该工作将rBLF从脆弱的生物活性蛋白转化为兼具营养与递送功能的双功能材料。
研究背景
牛乳铁蛋白由690个氨基酸残基组成,是一种铁结合糖蛋白,也是牛乳中关键的功能性生物活性成分。除营养价值外,BLF复杂的空间构象赋予其抗菌、抗病毒、抗氧化和免疫调节等多种生物活性,使其成为功能性食品、营养保健品和生物医药领域的高价值原料。
目前工业上主要依赖从牛乳清中提取BLF,但天然丰度低、供应链波动大、下游纯化效率低等问题限制了其规模化供应。重组表达系统因此成为满足全球日益增长需求的可替代方案。其中,甲基营养型酵母毕赤酵母兼具高密度生长、强大的翻译后修饰能力和高效的蛋白分泌能力,可有效缓解细菌系统中常见的宿主毒性和蛋白错误折叠问题。这些优势使重组蛋白能够保留与天然对应物相当的生物活性。在毕赤酵母表达系统中,信号肽优化和分子伴侣共表达等策略可协同提升分泌效率。
然而,BLF的实际应用仍面临三大挑战:传统提取方法效率低、胃肠道稳定性差、应用形式范围窄。针对这些问题,本研究开发了一套从高效生产到功能应用的整合策略。
研究方法
2.1 材料与试剂
所有测序和基因合成服务由通用生物(安徽)有限公司提供。质粒pPICZαA-CPR5(实验室保存)和毕赤酵母X-33(上海翊圣)用于rBLF表达。Zeocin™(上海泰坦)作为筛选抗生素。菌株、质粒和引物列于表S1–S2。一步法SDS-PAGE凝胶快速制备试剂盒(12%)、DNA聚合酶和DNA marker购自南京诺唯赞生物。限制性内切酶Sac I购自宝日医生物(北京)。小鼠抗His标签抗体购自上海翊圣生物。Heparin 6FF树脂购自上海生工生物。海藻酸钠购自精化未来科化工技术(中国)。模拟胃液(货号FY42779,胃蛋白酶28–32 U/mL)和模拟肠液(货号FY42772,胰蛋白酶2000–3000 U/mL)购自南通飞宇生物(南通,中国)。MTGase购自上海源叶生物(中国)。Bradford蛋白定量试剂盒购自上海碧云天生物。其余试剂均购自上海麦克林生化科技(上海,中国)。
【数据】胃蛋白酶活性:28–32 U/mL;胰蛋白酶活性:2000–3000 U/mL;SDS-PAGE凝胶浓度:12%
2.2 rBLF表达重组菌株的构建与发酵
#### 2.2.1 质粒构建
BLF基因(NCBI JX294418.1)由通用生物合成,以pET28a-BLF形式提供,使用引物BLF-F/R(表S2)扩增后,通过一步克隆试剂盒组装入线性化pPICZαA载体。构建体转化至大肠杆菌DH5α,在含50 μg/mL Zeocin™的LB琼脂平板上筛选。12–16 h后,阳性转化子送测序验证。重组质粒经Sac I线性化后电转化至毕赤酵母X-33。转化子在含100 μg/mL Zeocin的YPD平板上筛选36–48 h,阳性克隆通过测序确认。
【数据】抗生素浓度:50 μg/mL Zeocin™(大肠杆菌)、100 μg/mL Zeocin(毕赤酵母);筛选时间:12–16 h(大肠杆菌)、36–48 h(毕赤酵母);限制性内切酶:Sac I
#### 2.2.2 信号肽优化
为增强分泌,将pPICZαA中天然α-因子信号肽替换为杂合OST-α-因子信号肽。OST-α-因子片段(由通用生物合成)使用引物OST-α-F/R(表S2)扩增后插入pPICZαA,生成pPICZαA-OST-α-BLF。质粒经Sac I线性化后电转化至毕赤酵母X-33。
【数据】限制性内切酶:Sac I;宿主:毕赤酵母X-33
#### 2.2.3 分子伴侣共表达
为改善蛋白折叠和分泌,将酿酒酵母S288C菌株的分子伴侣CPR5与rBLF共表达。CPR5基因使用引物CPR5-F和CPR5-R(表S2)扩增。通过重叠PCR构建伴侣表达盒,使用GAP启动子(引物PCPR5-F和PCPR5-R扩增)和AOX1终止子(引物TCPR5-F和TCPR5-R扩增)。该表达盒通过一步克隆组装入线性化pPICZαA-OST-α-BLF载体,获得最终重组质粒。经Sac I线性化后电转化至毕赤酵母X-33,转化子通过测序验证。
【数据】启动子:GAP;终止子:AOX1;限制性内切酶:Sac I;宿主:毕赤酵母X-33
#### 2.2.4 菌株发酵培养
挑取重组菌株单菌落接种至5 mL YPD培养基,30 °C、220 rpm振荡培养20–24 h制备一级种子液。种子液以2%(v/v)接种量转接至BMGY培养基。待细胞密度达到OD600 0.8–1.0时,收集细胞,用无菌水洗涤去除残留甘油,重悬于BMMY诱导培养基。诱导培养120 h,每24 h补加1%(v/v)甲醇。发酵结束后,培养上清于4 °C、4000 ×g离心10 min收集。
【数据】种子培养:30 °C、220 rpm、20–24 h;接种量:2%(v/v);诱导条件:120 h、每24 h补加1%甲醇;离心条件:4 °C、4000 ×g、10 min;诱导OD600:0.8–1.0
2.3 rBLF的制备
rBLF通过肝素亲和层析从发酵上清中纯化。上清于4 °C、4000 ×g离心10 min收集,经0.45 μm膜过滤。澄清上清以1 mL/min流速上样至预平衡的Heparin 6FF亲和柱(上海生工)。上样后,用5倍柱体积结合缓冲液(20 mM磷酸缓冲液,pH 7.4)洗涤去除未结合蛋白。结合的rBLF用同一缓冲液中0–1 M NaCl线性梯度洗脱。通过SDS-PAGE和Western blot鉴定富含rBLF的组分,合并后用50 kDa截留分子量的超滤装置浓缩。纯化的rBLF于−80 °C保存备用。
【数据】流速:1 mL/min;洗涤体积:5倍柱体积;结合缓冲液:20 mM磷酸缓冲液、pH 7.4;洗脱梯度:0–1 M NaCl;超滤截留分子量:50 kDa;储存温度:−80 °C;过滤孔径:0.45 μm
2.4 不同比例复合物的制备
首先将rBLF分别与海藻酸钠(NaAlg)或聚γ-谷氨酸(γ-PGA)以不同质量比(1:0.5、1:1、1:2、1:5和1:10)混合,制备二元复合物以探索其复合行为。混合物在室温下磁力搅拌1 h以促进静电相互作用。为探索更复杂的三元体系,将NaAlg和γ-PGA按一系列梯度比例(9:1、8:2、6:4、5:5、4:6、2:8和1:9)在相同搅拌条件下预混,所得二元聚电解质混合物随后以1:2的固定质量比与rBLF复合。根据最高静电复合效率(ECE)选择最优配方。为确保所有后续实验的一致性,所有最终复合体系中rBLF浓度统一为0.2 mg/mL。
【数据】二元复合物质量比:1:0.5、1:1、1:2、1:5、1:10;三元体系NaAlg:γ-PGA比例:9:1、8:2、6:4、5:5、4:6、2:8、1:9;rBLF与聚电解质固定质量比:1:2;搅拌时间:1 h;rBLF终浓度:0.2 mg/mL
2.5 静电复合效率的测定
复合物通过离心(8050 ×g,20 min)沉淀。初始溶液(C0)和上清(Cf)中的蛋白浓度通过Bradford法在595 nm测定。静电复合效率(AP,%)计算公式为:AP (%) = [(C0 − Cf) / C0] × 100。
【数据】离心条件:8050 ×g、20 min;检测波长:595 nm
2.6 模拟体外消化
体外消化分两阶段进行。胃阶段:将10 mL rBLF、rBLF-NaAlg复合物或去离子水(对照)分别与10 mL模拟胃液混合,pH调至2.5,于37 °C、100 rpm孵育2 h。在5、30、60、120 min取样进行SDS-PAGE。肠阶段:将20 mL胃消化液与20 mL模拟肠液混合,pH调至7,于37 °C、100 rpm孵育2 h。在相同时间间隔取样进行SDS-PAGE。最终消化液于−20 °C保存。
【数据】胃阶段pH:2.5;肠阶段pH:7;孵育温度:37 °C;转速:100 rpm;取样时间点:5、30、60、120 min;胃阶段体积:10 mL+10 mL;肠阶段体积:20 mL+20 mL;保存温度:−20 °C
2.7 粒径测定
将各样品溶液(1 mL)转移至样品池中,25 °C平衡2 min后分析粒径。测定前将溶液稀释至适当浓度,以确保足够的衰减以获得最佳散射强度。
【数据】样品体积:1 mL;平衡温度:25 °C;平衡时间:2 min
2.8 Zeta电位测定
Zeta电位通过激光多普勒电泳(Smoluchowski模型)测定。样品(900 μL)不稀释,25 °C平衡120 s后分析。每个样品重复测定三次,每次100个读数。
【数据】样品体积:900 μL;平衡温度:25 °C;平衡时间:120 s;重复次数:3次;每次读数:100个
2.9 激光扫描共聚焦显微镜观察
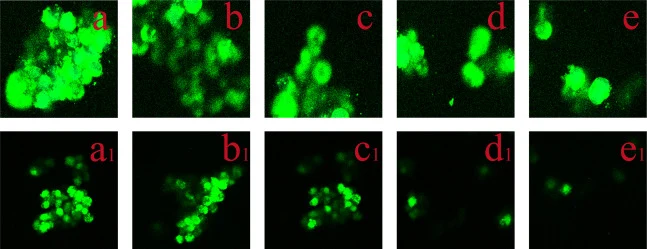
样品用尼罗蓝染色(1 mg/mL乙醇溶液,1:100稀释),孵育5 min,通过CLSM观察(400×,633 nm激发)。
【数据】染色剂:尼罗蓝(1 mg/mL乙醇溶液,1:100稀释);孵育时间:5 min;放大倍数:400×;激发波长:633 nm
2.10 rBLF-MTGase凝胶的制备
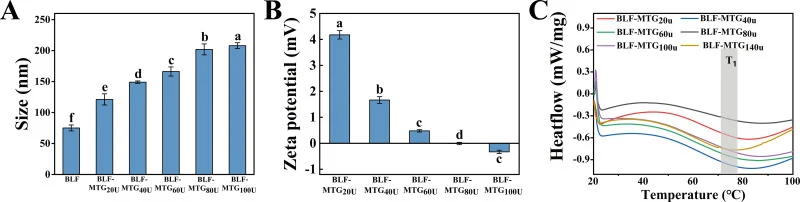
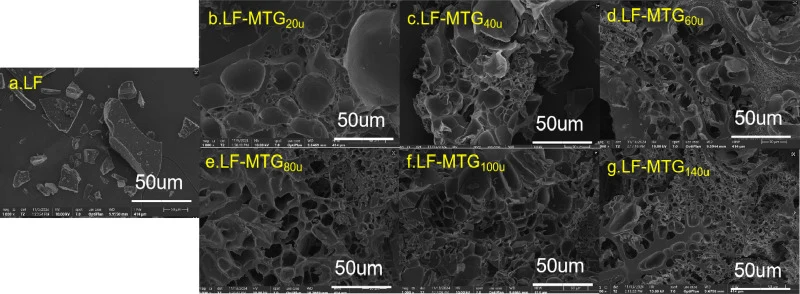
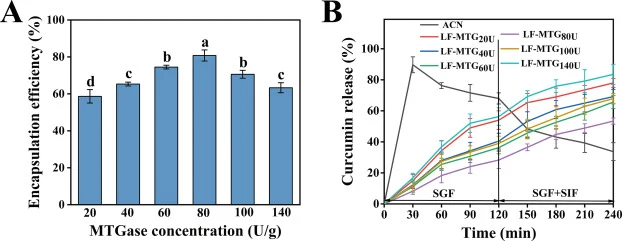
将rBLF粉末分散于去离子水中(16% w/v),室温搅拌3 h,4 °C水化过夜。溶液加热至40 °C,按20、40、60、80、100和140 U/g rBLF加入MTGase,搅拌30 min。混合物于40 °C孵育2 h进行交联,然后70 °C加热15 min使酶失活并诱导凝胶化。花青素储备液(100 mg溶于10 mL无水乙醇)避光保存。包封时,取1 mL储备液与rBLF溶液混合(避光),随后加入MTGase并进行相同的交联/灭活步骤。
【数据】rBLF浓度:16% w/v;搅拌时间:3 h(室温);水化条件:4 °C过夜;MTGase用量:20、40、60、80、100、140 U/g rBLF;交联条件:40 °C、2 h;灭活条件:70 °C、15 min;花青素储备液:100 mg/10 mL无水乙醇
2.11 rBLF-MTGase凝胶的热力学稳定性
采用差示扫描量热法(DSC)分析蛋白凝胶的热变性行为。
【数据】原文未详述具体DSC参数
研究结果
3.1 rBLF在毕赤酵母中的异源表达与分离
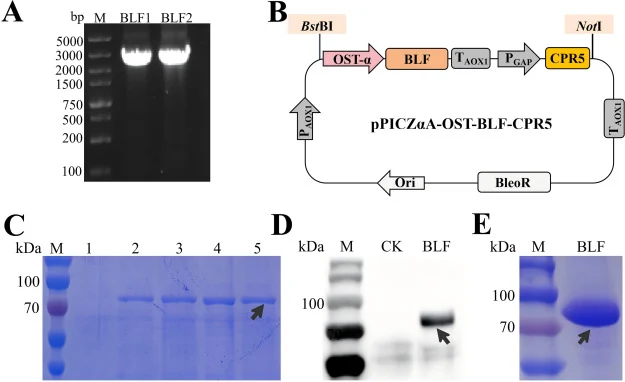
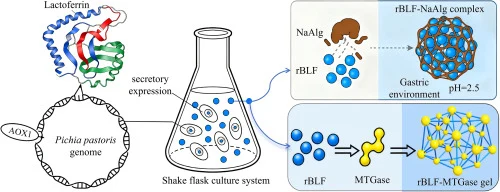
在毕赤酵母表达系统中,本研究实现了功能性rBLF的高效分泌表达。选择毕赤酵母X-33作为宿主,因其具有强大的翻译后修饰能力和低背景分泌,有利于正确的天然构象形成。BLF基因通过pPICZαA整合至宿主基因组,生成重组菌株X-33-BLF(图1A)。初始摇瓶发酵表明分泌效率是主要瓶颈:SDS-PAGE显示条带微弱(图S1),ELISA检测表达水平为213.2 μg/L。为克服这一问题,将α-因子信号肽替换为OST-α杂合信号肽,rBLF产量显著提高至25.8 mg/L(图S1),证实了分泌效率的决定性作用。随后,为缓解蛋白折叠和转运压力,过表达CPR5(图1B),进一步增强了rBLF分泌。经过这些优化,发酵产物在SDS-PAGE上于78 kDa处显示清晰条带(图1C),与rBLF预期分子量一致。最终ELISA确认摇瓶产量为232.6 mg/L,较仅优化信号肽的菌株提高9倍。抗6×His标签抗体Western blot确认了胞外rBLF的存在(图1D)。随后通过肝素亲和层析、超滤和冻干纯化,获得纯度≥85%的rBLF(图1E)。在摇瓶发酵条件下,本研究达到的产量(232.6 mg/L)显著高于Zhang等报道的优化产量(40.62 mg/L),表明信号肽工程与分子伴侣共表达的组合策略有效提升了单细胞分泌效率。高密度培养通常可实现更高的细胞密度和体积产率;Zhang等随后通过高密度发酵达到了824.93 mg/L的产量。尽管本研究仅在摇瓶规模验证了表达系统的性能,但鉴于该规模下分泌效率的明显优势,通过整合高密度发酵工艺进一步优化有望大幅提高产量。
【数据】初始表达量:213.2 μg/L;信号肽优化后产量:25.8 mg/L;最终摇瓶产量:232.6 mg/L;较信号肽优化菌株提升倍数:9倍;分子量:78 kDa;纯度:≥85%;对照产量(Zhang等):40.62 mg/L(摇瓶)、824.93 mg/L(高密度发酵)
3.2 不同复合体系中rBLF与γ-PGA/NaAlg静电复合效率的评价
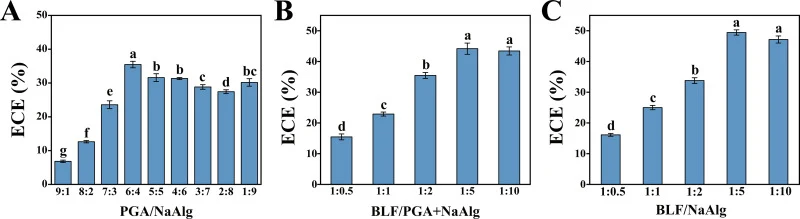
NaAlg等阴离子多糖含有丰富的羧基(COO−),可与带正电荷的乳铁蛋白通过静电自组装形成稳定的纳米复合物或凝胶载体。同时,γ-PGA是另一种分子量可调的阴离子聚合物,在食品和制药领域引起关注。为开发静电驱动的rBLF递送系统,我们比较了rBLF与γ-PGA和NaAlg在不同比例下的复合效率。在γ-PGA-NaAlg二元体系中(图2A),6:4比例获得最高效率(35.5%)。优化rBLF与多糖比例后(图2B),在1:5(rBLF:γ-PGA + NaAlg)时效率提高至44.2%。单独使用NaAlg时(图2C),rBLF:NaAlg比例为1:5时达到49.4%的效率,被选为后续研究的最优配方。这种效率差异源于两种多糖的分子特性不同。NaAlg具有高羧基密度(约1.0 mmol/g)和均匀的电荷分布,在pH < pI时能与带正电荷的rBLF发生强静电相互作用。当接近电荷中性时羧基质子化,吸引力增强,链间排斥降低,通过范德华力促进聚集。结构上,NaAlg的β-1,4糖苷键提供适度的链刚性,有利于形成稳定的三维包封网络。相比之下,γ-PGA的γ-酰胺键赋予其过度的柔性,损害了有效包封所需的结构完整性。
【数据】γ-PGA:NaAlg最优比例:6:4;最高效率:35.5%;rBLF:(γ-PGA+NaAlg)最优比例:1:5;效率:44.2%;rBLF:NaAlg最优比例:1:5;效率:49.4%;NaAlg羧基密度:约1.0 mmol/g
3.3 模拟胃肠道消化过程中rBLF和rBLF-NaAlg复合物的SDS-PAGE分析
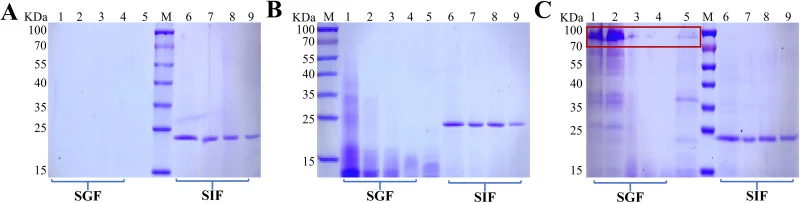
模拟消化后的SDS-PAGE分析(图3)显示,未保护的rBLF在胃阶段快速降解:5 min内出现<10 kDa的片段,30 min时完整条带消失。肽段条带逐渐褪色,表明蛋白水解主要发生在前30 min。在肠阶段,所有残留肽段在5 min内被消化。这种快速降解是由于rBLF在酸性条件下去折叠,暴露了胃蛋白酶切割位点。在中性肠道环境中,rBLF重新折叠,将大部分胰蛋白酶位点(Arg、Lys)埋藏,从而减缓蛋白水解。相比之下,rBLF-NaAlg复合物表现出显著增强的胃稳定性,在5、30和60 min时仍可检测到完整的rBLF条带,仅伴有少量<10 kDa片段和微弱的15 kDa条带。不溶性复合物在空间上阻碍了胃蛋白酶的可及性。中和后,被包封的rBLF释放出来进行肠道消化,因为NaAlg不能抵御胰腺蛋白酶。因此,NaAlg包封有效保护了rBLF在胃转运过程中的稳定性,同时保持在肠道中的释放,这与先前关于天然BLF-NaAlg复合物的报道一致。
【数据】游离rBLF胃阶段:5 min出现<10 kDa片段、30 min完整条带消失;肠阶段:5 min内全部消化;rBLF-NaAlg复合物:5、30、60 min可检测完整条带;胃蛋白酶切割位点暴露机制:酸性去折叠;胰蛋白酶位点:Arg、Lys
3.4 不同阶段消化产物的表征
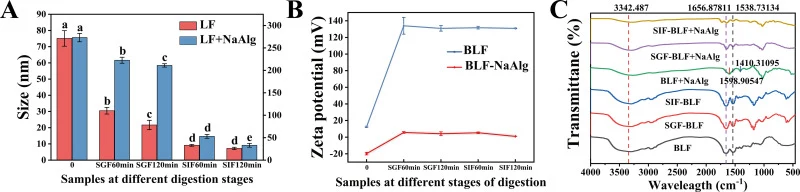
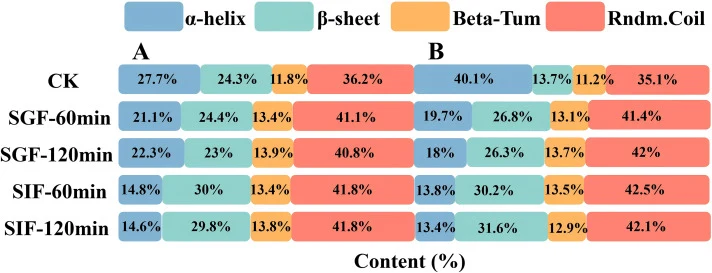
我们采用多层面分析方法,整合动态光散射、Zeta电位测定和FTIR光谱,系统阐明NaAlg包封的rBLF在模拟胃肠道条件下的保护机制和消化动力学。图4A显示粒径变化。游离rBLF平均直径为75.1 ± 4.8 nm;与NaAlg复合后增至272.9 ± 9.3 nm,证实了包覆。胃消化过程中,游离rBLF粒径降至30.5 ± 2.1 nm(60 min)和21.7 ± 2.9 nm(120 min),反映了广泛的切割。相比之下,rBLF-NaAlg复合物在60 min时仅下降22.6%,120 min时下降23.7%,而游离rBLF分别下降59.4%和71.1%。这种保护作用源于NaAlg在酸性条件下质子化,形成致密凝胶阻碍胃蛋白酶可及性。在肠阶段,游离rBLF进一步降解至9.1 ± 0.6 nm(60 min)和7.2 ± 0.7 nm(120 min)。包封组显示较大粒径(60 min时为52.9 ± 4.3 nm),表明降解延迟;120 min时,随着NaAlg溶解,粒径降至约33 nm。因此,NaAlg增强了胃稳定性并实现了肠道可控释放。游离rBLF在中性条件下的Zeta电位为正值(+12.4 mV);与NaAlg复合后转为负值,证实了静电相互作用。在胃液中,游离rBLF电位急剧升高,而复合物从负值向中性转变。接近中性减少了静电排斥,促进凝聚并增强保护。这种结构重组通过限制蛋白酶对rBLF的可及性增强了NaAlg基质的保护能力,后续实验分析支持这一结论。进一步通过傅里叶变换红外光谱(FTIR)分析复合前后的结构变化,如图4C所示。rBLF表现出典型的蛋白吸收带:酰胺I(1600–1700 cm−1,主要为C=O伸缩)、酰胺II(1500–1600 cm−1,C-N弯曲与N-H弯曲耦合)和酰胺III(1223–1330 cm−1,C-N和N-H弯曲振动),以及约3000 cm−1处的宽OH伸缩带,与天然乳铁蛋白的报道值一致。与NaAlg复合后,酰胺I和酰胺II区域发生显著位移,表明NaAlg基团与rBLF带正电荷残基之间发生静电相互作用。同时,OH振动强度显著降低。
【数据】游离rBLF粒径:75.1 ± 4.8 nm;rBLF-NaAlg复合物粒径:272.9 ± 9.3 nm;游离rBLF胃消化60 min:30.5 ± 2.1 nm;120 min:21.7 ± 2.9 nm;复合物60 min下降:22.6%;120 min下降:23.7%;游离rBLF 60 min下降:59.4%;120 min下降:71.1%;游离rBLF肠阶段60 min:9.1 ± 0.6 nm;120 min:7.2 ± 0.7 nm;复合物肠阶段60 min:52.9 ± 4.3 nm;120 min:约33 nm;游离rBLF Zeta电位:+12.4 mV;FTIR酰胺I:1600–1700 cm−1;酰胺II:1500–1600 cm−1;酰胺III:1223–1330 cm−1;OH伸缩带:约3000 cm−1
讨论与解读
本研究成功建立了rBLF的整合结构与功能平台,克服了其传统上生产效率低和胃肠道易感性高的局限。工程化rBLF从脆弱的营养补充剂转变为稳健的双功能生物材料。机制上,与NaAlg的静电复合形成了pH响应性保护屏障,物理屏蔽蛋白质天然结构免受胃蛋白酶水解,确保靶向肠道递送。此外,通过MTGase催化交联精心调控结构刚性化,rBLF的大分子网络被成功重编程为三维水凝胶。这种酶法定制的基质在包封和控制释放敏感小分子(如花青素)方面表现出高效性,且呈交联密度依赖性。总体而言,这些发现表明rBLF可同时保留其营养功能并被工程化为多功能递送基质。这一综合策略涵盖从高产微生物生物合成到序贯物理化学稳定化,为快速开发功能性蛋白为营养保健品和食品应用的高级递送系统提供了新范式,尽管工业转化仍需进一步的体内验证。
编译者解读:该研究的方法学亮点在于"一蛋白双功能"的设计逻辑——先通过信号肽工程与伴侣共表达解决产量瓶颈,再利用多糖静电复合解决稳定性问题,最后借酶催化交联拓展递送功能。三步环环相扣,每步都有明确的定量指标(232.6 mg/L、23.7%粒径降幅、MTGase浓度依赖性)。但局限也明显:仅摇瓶规模验证,未涉及高密度发酵;体外消化数据不能替代体内药代动力学;MTGase交联密度与释放动力学的定量构效关系尚需更系统的参数扫描。对于合成生物学社区,该工作提供了一个"生产-稳定-功能化"模块化范本,但各模块间的可迁移性仍需在不同蛋白体系中检验。
参考来源
期刊:International Journal of Biological Macromolecules, 2026
DOI:10.1016/j.ijbiomac.2026.153536
DOI: 10.1016/j.ijbiomac.2026.153536