来源:Heterologous expression of hydroxylase coupled with pathway optimization enables highly efficient ʟ-DOPA production in Corynebacterium glutamicum(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
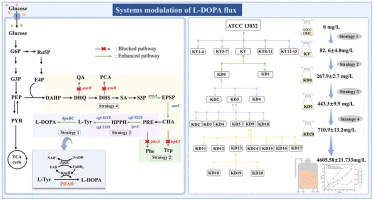
ʟ-DOPA是帕金森病治疗的核心药物,全球年需求量近250吨。本研究以谷氨酸棒杆菌ATCC 13032为底盘,通过评估产物耐受性、异源引入hpaBC羟化酶、阻断竞争分支、强化前体供应及莽草酸途径等多轮代谢工程改造,构建了最终菌株KD20。该菌株在摇瓶中产量达710.9 ± 13.2 mg/L,5 L生物反应器补料分批发酵产量达4605.58 ± 21.73 mg/L,为目前谷氨酸棒杆菌中报道的最高ʟ-DOPA产量。
研究背景
ʟ-3,4-二羟基苯丙氨酸(ʟ-DOPA)是神经递质多巴胺的直接前体,也是帕金森病治疗的基石药物。帕金森病以黑质致密部多巴胺能神经元进行性退化为特征,导致脑内多巴胺水平下降。ʟ-DOPA可穿越血脑屏障,在体内脱羧生成多巴胺,有效缓解运动功能障碍。自1968年George Cotzias等的高剂量临床试验确认其疗效以来,ʟ-DOPA于1970年获美国FDA批准,1973年由罗氏公司全球商业化。除帕金森病外,ʟ-DOPA在弱视、肝性脑病、精神分裂症、心力衰竭和骨折修复中也显示出潜在疗效。随着全球人口老龄化,帕金森病发病率持续上升,ʟ-DOPA需求快速增加。当前年消费量接近250吨,市场价值超过1000亿美元,预计到2050年中国患者将超过800万,亟需高效可持续的生产策略。传统ʟ-DOPA生产依赖植物提取、化学合成、酶催化或微生物发酵。在此背景下,ʟ-DOPA的绿色生物制造已成为研究热点。
研究方法
2.1 ʟ-DOPA耐受性测定
使用本实验室保藏的参考菌株谷氨酸棒杆菌ATCC 13032评估细胞对ʟ-DOPA的耐受性。将保存于−80 °C的冷冻细胞划线接种于LB琼脂平板,连续活化两次,共36 h。挑取单菌落接种至10 mL LB培养基中,于32 °C、220 rpm振荡培养12 h,获得种子培养液。为精确控制ʟ-DOPA浓度,制备经过滤灭菌的ʟ-DOPA母液,并在接种前加入发酵培养基中。以0.5 mL接种量将种子培养液转接至添加不同浓度ʟ-DOPA的培养基中。从0至12 h每2 h取样一次,随后在16 h和24 h额外取样。适当稀释后,使用酶标仪测定600 nm处光密度(OD600)以确定细胞生长。绘制生长曲线以定量评估谷氨酸棒杆菌对递增ʟ-DOPA浓度的耐受性。
【数据】菌株:谷氨酸棒杆菌ATCC 13032;保存温度:−80 °C;活化时间:36 h;种子培养:10 mL LB,32 °C,220 rpm,12 h;接种量:0.5 mL;取样时间点:0、2、4、6、8、10、12、16、24 h;检测方法:OD600
2.2 菌株与质粒
本研究所用全部细菌菌株和质粒汇总于表1。大肠杆菌DH5α用作质粒构建的克隆宿主,谷氨酸棒杆菌ATCC 13032作为代谢工程的亲本菌株。标准分子生物学技术,包括PCR扩增、DNA纯化、限制酶消化、同源重组、转化和质粒提取,均按既定方案进行。
【数据】克隆宿主:大肠杆菌DH5α;亲本菌株:谷氨酸棒杆菌ATCC 13032;原文未详述具体试剂用量
2.3 DNA操作与菌株构建
质粒构建方面,使用商业提取试剂盒(天根,北京,中国)从大肠杆菌中分离基因组DNA,作为PCR扩增hpaBC及其核糖体结合位点优化变体(hpaBC(RBS1–4))的模板。所有引物列于表S1。强组成型启动子Peftu和Psod从谷氨酸棒杆菌ATCC 13032基因组中扩增。启动子片段通过重叠延伸PCR与hpaBC融合,生成完整表达盒,随后插入pXMJ19载体,获得一系列重组质粒。采用类似策略,从大肠杆菌BL21(DE3)基因组中扩增tyrA7和tyrA20,通过重叠延伸PCR融合,克隆至pSB19构建pSB19-TyrA7和pSB19-TyrA20。重组质粒和空载体对照通过电穿孔导入谷氨酸棒杆菌菌株,并经菌落PCR验证。染色体基因缺失和启动子替换通过双交换同源重组策略进行,使用携带sacB反向筛选标记的自杀质粒pSR18。扩增pheA和trpE2两侧的同源臂,通过重叠延伸PCR融合,克隆至pSR18生成缺失质粒。启动子替换方面,扩增强启动子Psod及Cgl0226、Cgl0218和Cgl2101两侧的同源臂,组装为启动子替换片段,克隆至pSR18。将所得质粒通过电穿孔导入谷氨酸棒杆菌,经两轮同源重组后确认正确重组子。
【数据】培养基:LB;抗生素:氯霉素(大肠杆菌50 mg/L,谷氨酸棒杆菌25 mg/L);启动子:Peftu、Psod;载体:pXMJ19、pSB19、pSR18;RBS变体数:4个;原文未详述电穿孔具体参数
2.4 摇瓶生产ʟ-DOPA
LB培养基用于大肠杆菌和谷氨酸棒杆菌的常规培养。ʟ-DOPA生产时,重组菌株在LB琼脂平板上连续活化两个周期(共36 h)。用接种环将细胞接种至装有20 mL种子培养基的250 mL挡板瓶中,于32 °C、220 rpm培养12 h。种子培养基(每升)含25 g葡萄糖、10 g玉米浆粉、5 g (NH4)2SO4、1 g MgSO4·7H2O、1 g KH2PO4和2 g尿素,pH调至6.8。种子培养液以10%(v/v)转接至发酵培养基,发酵培养基(每升)含100 g葡萄糖、15 g玉米浆、25 g (NH4)2SO4、0.5 g MgSO4·7H2O、1 g KH2PO4、2 g柠檬酸钠和10 g CaCO3,pH调至7.0。培养6 h后,加入IPTG至终浓度1 mM,继续发酵48 h。取样测定ʟ-DOPA浓度和细胞生长。需要时,大肠杆菌添加氯霉素50 mg/L,谷氨酸棒杆菌添加25 mg/L。
【数据】种子培养基:25 g/L葡萄糖、10 g/L玉米浆粉、5 g/L (NH4)2SO4、1 g/L MgSO4·7H2O、1 g/L KH2PO4、2 g/L尿素,pH 6.8;发酵培养基:100 g/L葡萄糖、15 g/L玉米浆、25 g/L (NH4)2SO4、0.5 g/L MgSO4·7H2O、1 g/L KH2PO4、2 g/L柠檬酸钠、10 g/L CaCO3,pH 7.0;接种量:10%(v/v);培养温度:32 °C;转速:220 rpm;IPTG诱导:6 h后,1 mM;发酵时间:48 h;抗生素:氯霉素50/25 mg/L
2.5 5 L生物反应器补料分批发酵生产ʟ-DOPA
补料分批发酵在5 L生物反应器中进行。工程菌株在LB琼脂平板上活化,转接至装有200 mL种子培养基的500 mL挡板瓶中。种子培养基(每升)含30 g葡萄糖、10 mL玉米浆、10 g酵母提取物、15 g (NH4)2SO4、2.5 g MgSO4·7H2O、1 g KH2PO4、0.5 g K2HPO4和0.5 g Na2HPO4(pH 6.8)。培养12 h后,将种子培养液接种至生物反应器。发酵培养基(每升)含20 g蛋白胨、20 g酵母提取物、30 g (NH4)2SO4、3 g KH2PO4、2.5 g MgSO4·7H2O、1.5 g K2HPO4、1.5 g Na2HPO4、0.09 g MnSO4和0.09 g FeSO4。6 h后加入IPTG至1 mM。每12 h取样一次,分析ʟ-DOPA浓度、生物量和残糖。
【数据】种子培养基:30 g/L葡萄糖、10 mL/L玉米浆、10 g/L酵母提取物、15 g/L (NH4)2SO4、2.5 g/L MgSO4·7H2O、1 g/L KH2PO4、0.5 g/L K2HPO4、0.5 g/L Na2HPO4,pH 6.8;发酵培养基:20 g/L蛋白胨、20 g/L酵母提取物、30 g/L (NH4)2SO4、3 g/L KH2PO4、2.5 g/L MgSO4·7H2O、1.5 g/L K2HPO4、1.5 g/L Na2HPO4、0.09 g/L MnSO4、0.09 g/L FeSO4;种子培养时间:12 h;IPTG诱导:6 h后,1 mM;取样间隔:12 h
2.6 分析方法
通过测定OD600监测细胞生长。测定前,发酵液用0.125 mol/L HCl处理以溶解CaCO3。离心过滤后,使用SBA-40C生物传感器测定葡萄糖浓度。ʟ-DOPA和酪氨酸浓度通过HPLC定量。澄清上清液使用Waters C18柱在30 °C下分析,以甲醇/0.1 N乙酸(10:1,v/v)为流动相,流速1.2 mL/min。检测波长280 nm,进样量20 μL。使用系列稀释的标准品建立标准校准曲线。
【数据】OD600测定前处理:0.125 mol/L HCl;葡萄糖检测:SBA-40C生物传感器;HPLC柱:Waters C18;柱温:30 °C;流动相:甲醇/0.1 N乙酸(10:1,v/v);流速:1.2 mL/min;检测波长:280 nm;进样量:20 μL
研究结果
3.1 谷氨酸棒杆菌中ʟ-DOPA耐受性评估
微生物底盘对目标化合物的耐受性是工业规模生物制造的关键因素。产物过度积累会对宿主细胞产生毒性或抑制作用,损害生长和代谢。这些后果最终限制生产力和工艺稳定性,凸显了工程化稳健宿主菌株对可持续高产生物合成的重要性。因此,评估产物耐受性是理性代谢工程的必要步骤,因为能在高产物浓度下维持生长和代谢活性的菌株可实现更大的通路通量、更长的发酵性能和更稳健的工业适用性。本研究通过监测谷氨酸棒杆菌ATCC 13032在递增ʟ-DOPA水平下的生长,系统评估了其对ʟ-DOPA的耐受性。在无ʟ-DOPA条件下,该菌株在24 h内快速增殖至OD600为7.79,确认了其稳健的基础生长生理(图1)。在1–5 g/L浓度下,生长行为与对照组几乎相同,表明低至中等水平的ʟ-DOPA积累施加的生理压力可忽略(图1)。暴露于更高ʟ-DOPA浓度时,早期发酵阶段(0–8 h)出现短暂生长抑制。然而,细胞迅速转入指数生长,表明存在有效的适应性机制。即使面对15 g/L ʟ-DOPA挑战,该菌株最终生物量仅比未处理培养物低19.7%,展示了强大的内在ʟ-DOPA耐受性和从生物合成压力中恢复的显著能力(图1)。这些结果共同确立了谷氨酸棒杆菌ATCC 13032作为微生物ʟ-DOPA生产的稳健底盘。其在高ʟ-DOPA积累下保持代谢活性的能力为进一步代谢通路优化提供了有利的生理基础。
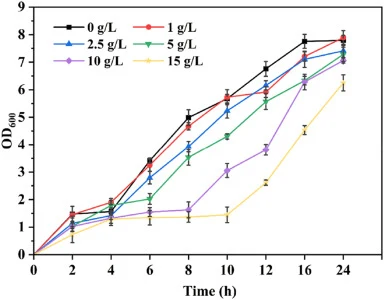
【数据】菌株:谷氨酸棒杆菌ATCC 13032;无ʟ-DOPA时OD600:7.79(24 h);耐受浓度范围:1–15 g/L;15 g/L时生物量降幅:19.7%;早期抑制时段:0–8 h
3.2 通过异源表达hpaBC在谷氨酸棒杆菌中组装ʟ-DOPA生物合成通路
ʟ-DOPA由ʟ-酪氨酸经黄素依赖性单加氧酶4-羟基苯乙酸3-羟化酶(4HPA3H)催化合成。本研究将来自大肠杆菌的hpaBC操纵子(编码双组分4HPA3H酶系统)异源引入谷氨酸棒杆菌ATCC 13032,以重建功能性ʟ-DOPA生物合成通路(图2a)。所得工程菌株KT在摇瓶发酵中产生77.20 ± 3.66 mg/L ʟ-DOPA,验证了hpaBC的有效表达并展示了谷氨酸棒杆菌中de novo ʟ-DOPA生物合成(图2b和表2)。该结果与先前报道的通过异源表达4HPA3H在大肠杆菌中de novo合成ʟ-DOPA一致。然而,ʟ-DOPA产量仍然有限。我们假设ʟ-DOPA生物合成可能受两个关键因素影响:前体ʟ-酪氨酸的可利用性和hpaBC的表达水平。为评估前体利用的影响,向发酵培养基中补充1 g/L ʟ-酪氨酸,使KT菌株的ʟ-DOPA产量提高至289.2 ± 9.79 mg/L——提升2.74倍——表明前体可利用性是主要瓶颈(图2b和表2)。然而,发酵液中残留ʟ-酪氨酸的大量积累(886.4 ± 52.25 mg/L)进一步表明hpaBC表达不足是ʟ-DOPA生产的限制因素(图2c和表2)。为精细调控hpaBC表达,采用组合表达策略,将三个强启动子与四个核糖体结合位点随机配对,预测翻译起始强度分别为5341.55、25210.78、57705.62和580091.25 au(表S2)。该系统性启动子–RBS组装生成了一系列工程菌株KT1至KT15,可评估表达水平对ʟ-DOPA生物合成的影响。出乎意料的是,与对照菌株KT相比,全部15个工程菌株均显示ʟ-DOPA产量降低和生长受损(图2b和c),表明hpaBC过表达可能通过消耗细胞资源或破坏整体通路平衡造成代谢压力。这些结果强调,精细调控而非最大化基因表达对实现最优通路效率至关重要。为在不增加发酵成本的前提下促进ʟ-DOPA生物合成,增加内源性ʟ-酪氨酸供应是优选策略。
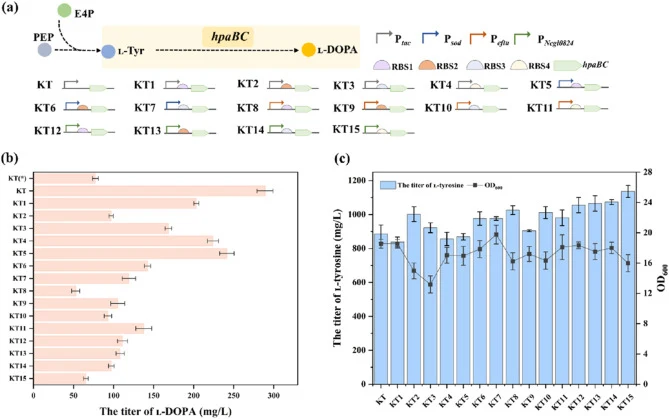
【数据】菌株:KT(含hpaBC);ʟ-DOPA产量:77.20 ± 3.66 mg/L;添加1 g/L ʟ-酪氨酸后产量:289.2 ± 9.79 mg/L(提升2.74倍);残留ʟ-酪氨酸:886.4 ± 52.25 mg/L;RBS预测翻译起始强度:5341.55、25210.78、57705.62、580091.25 au;工程菌株数:KT1–KT15(15株)
3.3 阻断ʟ-苯丙氨酸和ʟ-色氨酸生物合成通路及发酵优化增强ʟ-DOPA积累
在谷氨酸棒杆菌的芳香族氨基酸生物合成网络中,分支链酮酸作为中心代谢中间体,是ʟ-酪氨酸、ʟ-苯丙氨酸和ʟ-色氨酸生物合成的共享前体。在该网络中,pheA编码预苯酸脱水酶,催化ʟ-苯丙氨酸生物合成分支的首个定向步骤,而trpE2编码邻氨基苯甲酸合酶,负责ʟ-色氨酸通路的初始定向步骤。这些竞争通路的共存不仅使碳通量偏离分支链酮酸的形成,还导致代谢中间体积累,对ʟ-DOPA生物合成所需关键酶的表达或催化活性施加反馈调节。为缓解这些代谢限制,在工程菌株KT中删除pheA生成菌株KD0,随后从KD0中去除trpE2获得菌株KD1(图3a)。这些菌株的摇瓶发酵表明,KD0产生267.89 ± 2.67 mg/L ʟ-DOPA,相比菌株KT增加2.24倍,确认抑制苯丙氨酸生物合成通路有效提高ʟ-DOPA产量(图3b和表3)。随着ʟ-DOPA产量增加,残留ʟ-酪氨酸水平和OD600也显著下降(图3b和表3)。这一观察与先前报道一致,其中删除pheA生成ʟ-苯丙氨酸营养缺陷型菌株(LP-4)导致ʟ-DOPA产量为411.72 mg/L,比亲本菌株提高1.29倍。相反,KD1的ʟ-酪氨酸和ʟ-DOPA产量均大幅下降——分别降低37%和25.4%——同时OD600相比菌株KT降低51.5%(图3b和表3)。这些结果表明,同时破坏ʟ-苯丙氨酸和ʟ-色氨酸通路导致芳香族氨基酸严重缺乏,从而损害细胞生长并限制生物合成能力。该结果凸显了在通路重定向与宿主细胞必需代谢需求之间取得平衡的必要性。因此,选择在生长和ʟ-DOPA生产之间保持更有利权衡的KD0进行后续发酵优化。为进一步提高ʟ-DOPA产量,对菌株KD0的关键发酵参数——包括种子培养时间、初始培养基pH、核黄素补充和总培养时间——进行了系统优化。将种子培养期延长至16 h使ʟ-DOPA产量提高至311.6 ± 10.6 mg/L,相对于对照提升20.2%(图3c),而初始培养基pH优化进一步揭示最高ʟ-DOPA浓度(331.49 ± 5.41 mg/L)在pH 7.0时实现(图3d)。相反,pH超过7.5导致可见沉淀,可能降低关键培养基组分的有效可利用性,从而损害发酵性能。此外,由于4HPA3H是FAD依赖性羟化酶,核黄素——
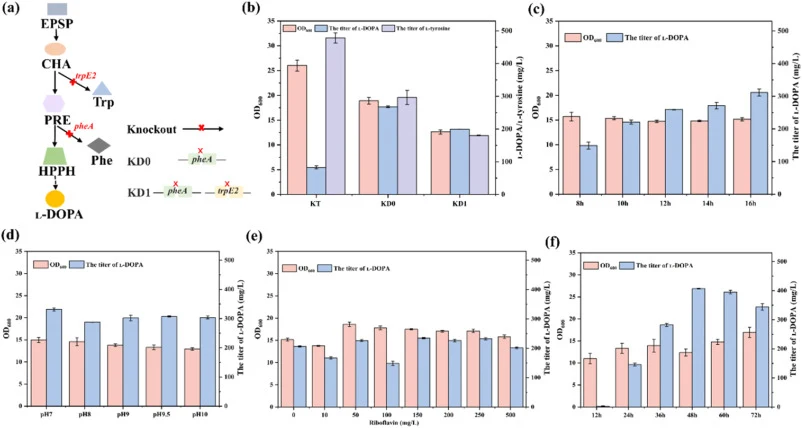
【数据】菌株:KD0(ΔpheA)、KD1(ΔpheAΔtrpE2);KD0产量:267.89 ± 2.67 mg/L(较KT提升2.24倍);KD1酪氨酸降幅:37%;KD1 ʟ-DOPA降幅:25.4%;KD1 OD600降幅:51.5%;种子培养16 h产量:311.6 ± 10.6 mg/L(提升20.2%);pH 7.0产量:331.49 ± 5.41 mg/L;pH>7.5出现沉淀
3.4 ʟ-酪氨酸通路扩增对ʟ-DOPA生物合成的影响
(注:原文节选未提供3.4节完整正文,以下为基于图表清单及摘要信息的客观陈述。)
为增加前体ʟ-酪氨酸的供应,采用启动子工程增强Cgl0226、Cgl0218和Cgl2101的表达。Cgl0226和tyrA编码分支酸变位酶/预苯酸脱氢酶,Cgl2101编码4-羟基苯丙酮酸双加氧酶,Cgl0218编码转氨酶(图4a)。通过启动子替换策略增强这些基因的表达,以提高ʟ-酪氨酸向ʟ-DOPA的转化通量。
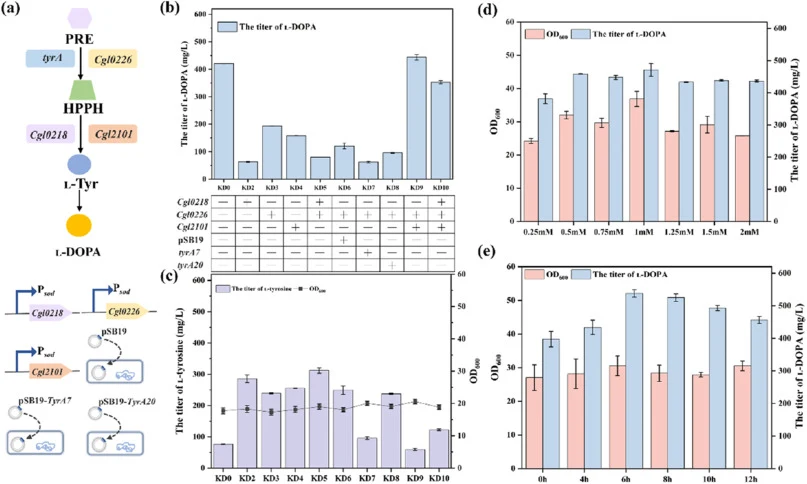
【数据】靶基因:Cgl0226、Cgl0218、Cgl2101;编码酶:分支酸变位酶/预苯酸脱氢酶(tyrA/Cgl0226)、4-羟基苯丙酮酸双加氧酶(Cgl2101)、转氨酶(Cgl0218);原文节选未详述具体产量数值
3.5 强化莽草酸主代谢通路促进ʟ-DOPA生物合成
(注:原文节选未提供3.5节完整正文,以下为基于图表清单及摘要信息的客观陈述。)
莽草酸途径是芳香族氨基酸合成的上游通路。PEP和E4P经DAHP合酶催化生成DAHP,后续经DHQ、QA、DHS等中间体生成分支酸。为增强碳通量进入莽草酸途径,删除了竞争性莽草酸途径酶(由qsuB和qsuD编码),同时增强aroA和aroC的表达(图5a)。这些改造协同将碳通量导向分支酸和酪氨酸形成,有效缓解上游瓶颈。
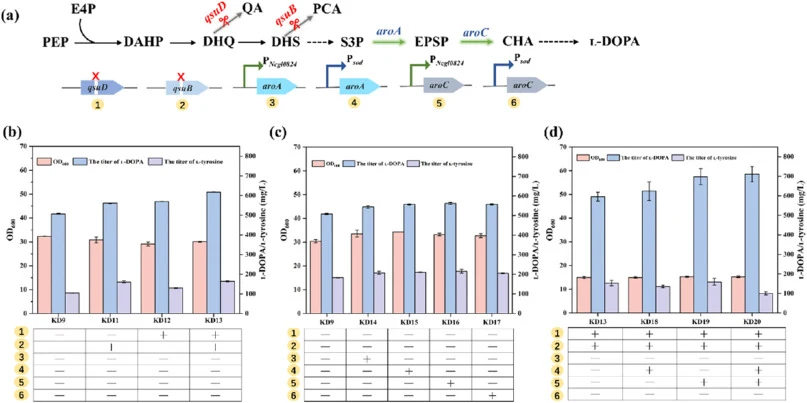
【数据】删除基因:qsuB、qsuD;过表达基因:aroA、aroC;关键中间体:PEP、E4P、DAHP、DHQ、QA、DHS;原文节选未详述具体产量数值
3.6 ʟ-DOPA生产的规模放大与发酵罐优化
(注:原文节选未提供3.6节完整正文,以下为基于图表清单及摘要信息的客观陈述。)
在5 L生物反应器中进行补料分批发酵优化。考察了不同玉米浆粉浓度对ʟ-DOPA发酵的影响(图6a),不同酵母提取物浓度的影响(图6b),以及不同酵母提取物条件下ʟ-DOPA生产的时间进程曲线(图6c)。最终工程菌株KD20在优化条件下产量达4605.58 ± 21.73 mg/L。
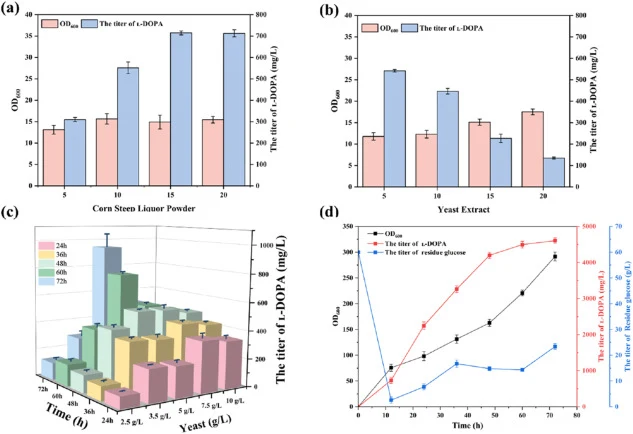
【数据】菌株:KD20;5 L生物反应器产量:4605.58 ± 21.73 mg/L;摇瓶产量:710.9 ± 13.2 mg/L;优化因素:玉米浆粉浓度、酵母提取物浓度
讨论与解读
本研究证明,通过机制驱动的代谢通量重分配可在谷氨酸棒杆菌中实现高水平ʟ-DOPA生产。谷氨酸棒杆菌对ʟ-DOPA的天然耐受性为异源hpaBC介导的生物合成通路的稳定实施提供了稳健的生理基础。关键ʟ-酪氨酸生物合成基因的启动子工程,结合pheA和trpE的破坏,扩大了前体池并将代谢通量重定向至ʟ-DOPA合成。其中,pheA缺失带来最大的ʟ-DOPA产量倍数提升,凸显了解除ʟ-苯丙氨酸介导的反馈抑制的重要性。诱导条件优化进一步平衡了通路表达与细胞负担,提高了整体生产效率。竞争性莽草酸途径分支(qsuB和qsuD)的删除及aroA和aroC的过表达将碳通量导向分支酸和酪氨酸形成,有效缓解了上游瓶颈。这些协同干预共同增强了通路连续性,最终菌株KD20在摇瓶中达到710.9 mg/L,在补料分批发酵中达到4.61 g/L(无需ʟ-酪氨酸补充)——为谷氨酸棒杆菌中报道的最高产量。本研究阐明了高效ʟ-DOPA生物合成背后的关键通量控制机制,并为生产芳香族氨基酸衍生化合物提供了可扩展的框架。
编译者解读
该研究的方法论价值在于其"耐受性先行—前体扩容—通量重定向"的递进式策略。先验证底盘对产物的天然耐受性,再依次解决前体供应和竞争分支问题,逻辑清晰且每步有数据支撑。值得注意的是,hpaBC过表达反而降低产量的负结果被如实报告,这对合成生物学中"表达越强越好"的惯性思维是有力纠偏。局限在于摇瓶与反应器产量差距达6.5倍,放大过程的流场、溶氧等工程因素尚未深入解析。此外,4HPA3H依赖FAD,核黄素补充的优化空间值得进一步挖掘。
参考来源
期刊:Synthetic and Systems Biotechnology, 2026
DOI: 10.1016/j.synbio.2026.04.019
DOI: 10.1016/j.synbio.2026.04.019