来源:Plant-Derived Growth Substrates Modulate Biosynthetic Gene Cluster Expression and Extracellular Anti-Salmonella Activity in Bacillus velezensis BX77(Food Bioscience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
新鲜农产品被沙门氏菌等食源性病原体污染是全球食品安全难题。前期研究发现,贝莱斯芽孢杆菌BX77可使苜蓿芽上的沙门氏菌完全消失,但分子机制不明。本研究以苜蓿芽提取物为植物源培养基,证明BX77的胞外抗菌活性由分泌型后生元化合物介导,且受生长环境化学组成强烈调控。研究进一步完成BX77全基因组测序,鉴定出13个生物合成基因簇,并通过转录组分析揭示植物源条件诱导的时序性基因表达重塑,其中difficidin和bacilysin合成基因的协同诱导与胞外抗沙门氏菌活性的出现时间吻合。
研究背景
新鲜农产品被食源性病原体污染——尤其是沙门氏菌和大肠杆菌——始终是全球食品安全领域的重大挑战。水果、蔬菜和芽苗菜相关的食源性疾病暴发屡见报道。由于许多新鲜农产品以生食为主,传统的采后去污手段往往难以在不影响产品品质和消费者接受度的前提下彻底清除这些病原体。因此,亟需可持续且有效的生物防治策略来抑制新鲜农产品上的食源性病原体。
微生物生防菌剂已成为替代传统化学干预手段的有前景方案。芽孢杆菌属、假单胞菌属、链霉菌属和木霉属等多个细菌和真菌属已展现出抑制植物病原体并促进植物健康与生产力的能力。其中,芽孢杆菌属因能形成环境耐受性强的芽孢、定殖植物相关生态位并产生多样化抗菌化合物而尤受关注。这些特性使基于芽孢杆菌的产品在防治细菌和真菌性植物病原体方面得到成功应用。
在此背景下,本研究聚焦于贝莱斯芽孢杆菌BX77。前期研究表明,将BX77加入苜蓿种子可使苜蓿芽上可检测的沙门氏菌完全消除,但其作用的分子机制尚未阐明。本研究旨在探究BX77介导的拮抗活性是否由分泌型后生元化合物驱动,以及植物源生长底物是否调控相应的生物合成途径。
研究方法
2.1 菌株、生长条件及芽提取物和条件培养基的制备
贝莱斯芽孢杆菌BX77在以下生长培养基中培养:Lysogeny broth(LB)、添加1%(v/v)甘油和0.1 mM硫酸锰的LB(LBGM;Shemesh & Chai, 2013)、营养肉汤(NB)或紫花苜蓿(Medicago sativa)芽提取物(SE),具体使用哪种培养基视各实验要求而定。SE被用作植物源生长培养基,以部分模拟BX77在定殖发芽芽苗过程中所遇到的植物源条件。尽管SE不能完全重现芽苗表面的完整物理和生物环境,但它提供了常规实验室培养基中所缺乏的复杂植物源营养物质和代谢物混合物。贝莱斯芽孢杆菌BX77和肠道沙门氏菌肠道亚种鼠伤寒血清型SL1344(链霉素抗性;Gruzdev et al., 2012)用于功能实验和转录组实验。除非另有说明,培养物在37 °C、150 rpm振荡条件下好氧培养。新鲜培养物从−80 °C保存的甘油菌种中制备,通过划线接种于LB琼脂并在37 °C培养20 h。随后挑取单菌落接种至10 mL LB肉汤中培养18–20 h。SL1344培养物中添加100 μg/mL链霉素。LBGM作为生物膜诱导条件被纳入实验。在枯草芽孢杆菌中,LB中添加甘油和锰通过涉及Spo0A磷酸接力系统的KinD依赖性信号通路促进生物膜形成(Shemesh & Chai, 2013)。因此,LBGM被用作介于标准LB和植物源芽提取物(SE)之间的生物膜促进条件,以检验促进生物膜形成的条件是否也调控BX77的胞外抗沙门氏菌活性。苜蓿芽提取物按Gollop等(2024)所述方法制备。条件培养基(CM)的制备方法为:将BX77接种至SE中,在25 °C静置培养18–72 h。培养结束后,通过4,800 × g离心10 min去除细菌细胞。所得上清液经0.22-μm膜过滤器过滤除菌,保存于−20 °C直至使用。为评估培养基依赖的抗菌活性是否反映了BX77生物量的差异,通过在各采样时间点(0、6、18、24、36、48和72 h)于LB琼脂上测定活菌计数(log CFU/mL),平行监测BX77在SE、LB和LBGM中的生长情况。
【数据】菌株:贝莱斯芽孢杆菌BX77、鼠伤寒沙门氏菌SL1344;培养基:LB、LBGM(LB+1%甘油+0.1 mM硫酸锰)、NB、SE;温度:37 °C(培养)、25 °C(CM制备);转速:150 rpm;时间:18–20 h(种子培养)、18–72 h(CM制备)、0/6/18/24/36/48/72 h(生长监测);链霉素浓度:100 μg/mL;离心条件:4,800 × g、10 min;滤膜孔径:0.22 μm;保存温度:−20 °C
2.2 抗菌活性测定
鼠伤寒沙门氏菌SL1344在37 °C过夜培养,用无菌双蒸水洗涤,调整至约10⁵ CFU/mL。取100 μL细菌悬液加入900 μL CM中,最终浓度约为10⁴ CFU/mL。以接种相同浓度SL1344的无菌SE作为生长对照。样品在25 °C静置培养24 h。存活的细菌采用涂布平板法在添加100 μg/mL链霉素的木糖赖氨酸脱氧胆酸盐(XLD)琼脂上计数。平板在37 °C培养24 h后进行菌落计数。结果以三次独立生物学实验的均值±标准差表示,每次实验包含三个技术重复。为确认在直接涂布未回收到菌落的时间点细菌确实失活,进行了基于修改版ISO 6579-1:2017方案的增菌步骤。简要流程为:取1 mL样品接种至9 mL缓冲蛋白胨水中(1:10,v/v),在37 °C培养约18 h。由于样品为纯培养物、无竞争性背景微生物群,省略了二次选择性增菌步骤。增菌培养物随后划线接种于添加100 μg/mL链霉素的XLD琼脂上,37 °C培养24 h。增菌后无沙门氏菌菌落出现即判定为无存活细胞回收。
【数据】菌株:鼠伤寒沙门氏菌SL1344;初始浓度:约10⁵ CFU/mL(悬液)、约10⁴ CFU/mL(最终);CM体积:900 μL;菌液体积:100 μL;温度:37 °C(培养)、25 °C(孵育);时间:24 h(孵育)、18 h(增菌)、24 h(平板培养);链霉素浓度:100 μg/mL;缓冲蛋白胨水比例:1:10(v/v);生物学重复:3次;技术重复:3次
2.3 基因组DNA提取
BX77细胞在LB肉汤中37 °C培养20 h。通过离心收集细胞并洗涤,随后使用Wizard® Genomic DNA Purification Kit(Promega,美国)按制造商说明提取基因组DNA。DNA浓度和纯度分别使用NanoDrop 2000分光光度计(Thermo Scientific,美国)和Qubit dsDNA High-Sensitivity Assay Kit(Thermo Fisher Scientific,美国)进行评估。基因组DNA完整性通过琼脂糖凝胶电泳评估。
【数据】菌株:贝莱斯芽孢杆菌BX77;培养基:LB肉汤;温度:37 °C;时间:20 h;试剂盒:Wizard® Genomic DNA Purification Kit;检测仪器:NanoDrop 2000、Qubit dsDNA High-Sensitivity Assay Kit
2.4 Illumina和Oxford Nanopore文库制备及基因组测序
采用Illumina短读长和Oxford Nanopore长读长测序技术进行混合全基因组测序。对于Illumina测序,约50 ng基因组DNA使用Bioruptor片段化至平均350 bp。测序文库使用QIAseq FX DNA Library Kit for Illumina(QIAGEN,美国)按制造商说明制备。文库在Illumina HiSeq X Ten平台(Illumina,San Diego,CA,美国)上采用150-bp双端测序。测序数据使用bcl2fastq v2.20进行拆分,生成FASTQ文件。读长质量使用FastQC v0.11.8(Andrews, 2010)评估。对于Oxford Nanopore测序,约600 ng纯化基因组DNA使用Oxford Nanopore Rapid Barcoding Kit处理。测序在GridION X5平台(Oxford Nanopore Technologies,Oxford,英国)上使用R9.4 SpotON流动池(FLO-MIN106)进行48 h测序运行。使用Guppy v2.3.4处理fastq5格式读长。
【数据】DNA用量:约50 ng(Illumina)、约600 ng(Nanopore);片段化平均大小:350 bp;测序平台:Illumina HiSeq X Ten、GridION X5;测序读长:150-bp双端;流动池:R9.4 SpotON(FLO-MIN106);测序时间:48 h;软件版本:bcl2fastq v2.20、FastQC v0.11.8、Guppy v2.3.4
2.5 从头混合基因组组装
共产生约270万条Illumina读长和58万条Oxford Nanopore读长。Illumina读长使用Trim Galore v0.4.0(Krueger, 2015)处理,以去除接头序列、质量分数低于Q30的读长以及短于20个核苷酸的读长。原始Oxford Nanopore读长使用Porechop v0.2.3处理以去除测序接头。处理后的Illumina和Oxford Nanopore读长使用Unicycler v0.4.8进行从头混合组装,方法如Wick等(2017)所述。组装基因组中的蛋白编码基因最初使用Prokka v1.14(Seemann, 2014)进行鉴定和注释。
【数据】Illumina读长数:约270万条;Nanopore读长数:约58万条;质量阈值:Q30;最短读长:20个核苷酸;软件版本:Trim Galore v0.4.0、Porechop v0.2.3、Unicycler v0.4.8、Prokka v1.14
2.6 分类学与系统发育基因组分析
BX77与近缘物种和菌株以及一个外群之间的平均核苷酸一致性(ANI)值使用直系同源平均核苷酸一致性(OrthoANI)算法(Lee et al., 2016)计算。BX77的分类学位置还使用Type Strain Genome Server(TYGS;Meier-Kolthoff et al., 2019)进行评估。系统发育基因组树使用OrthoFinder v2.5.5(Emms & Kelly, 2019)构建,并使用Interactive Tree of Life(iTOL)在线平台(Letunic & Bork, 2024)可视化。数字DNA–DNA杂交(dDDH)值通过自动化TYGS平台使用Genome-to-Genome Distance Calculator(GGDC)v2.1(Meier-Kolthoff et al., 2013)计算。系统发育基因组分析纳入了截至2024年9月26日NCBI RefSeq数据库(Pruitt et al., 2005)中可用的166个贝莱斯芽孢杆菌菌株的基因组组装。
【数据】分析菌株数:166个贝莱斯芽孢杆菌基因组;数据库:NCBI RefSeq;数据库日期:2024年9月26日;软件版本:OrthoANI、TYGS、OrthoFinder v2.5.5、iTOL、GGDC v2.1
2.7 基因组注释与比较基因组分析
蛋白编码序列使用HMMER hmmscan(Eddy, 2011)和DIAMOND(Buchfink et al., 2015)进行功能注释,以Pfam和NCBI非冗余蛋白数据库作为参考数据库。基因使用COGclassifier v1.0.5(Shimoyama, 2022)分配至直系同源基因簇(COG)功能类别。核糖体RNA和转运RNA基因分别使用RNAmmer(Lagesen et al., 2007)和tRNAscan-SE(Lowe & Eddy, 1997)鉴定。其他非编码RNA通过与Rfam数据库(Camacho et al., 2009)进行序列比对预测。BX77基因组内的前噬菌体序列通过……(原文此处截断)
【数据】软件版本:HMMER hmmscan、DIAMOND、COGclassifier v1.0.5、RNAmmer、tRNAscan-SE;参考数据库:Pfam、NCBI非冗余蛋白数据库、Rfam
研究结果
3.1 植物源生长底物诱导BX77的胞外抗沙门氏菌活性
为探究植物源化学物质是否增强胞外抗菌活性,BX77细胞在四种不同培养基中培养,包括苜蓿芽提取物(SE),用于部分模拟该细菌在芽苗定殖过程中遇到的化学环境。随后评估每种培养物制备的条件培养基(CM)抑制鼠伤寒沙门氏菌SL1344的能力。来自LB培养的BX77的CM仅表现出极小的抑制活性,而营养肉汤(NB)和添加甘油和锰的LB(LBGM)制备的CM显示出逐渐增强的抑制作用(图1A)。值得注意的是,来自SE培养物的CM将沙门氏菌降至不可检测水平,表明抗沙门氏菌表型由胞外因子介导,其产生受生长环境化学组成的强烈影响。
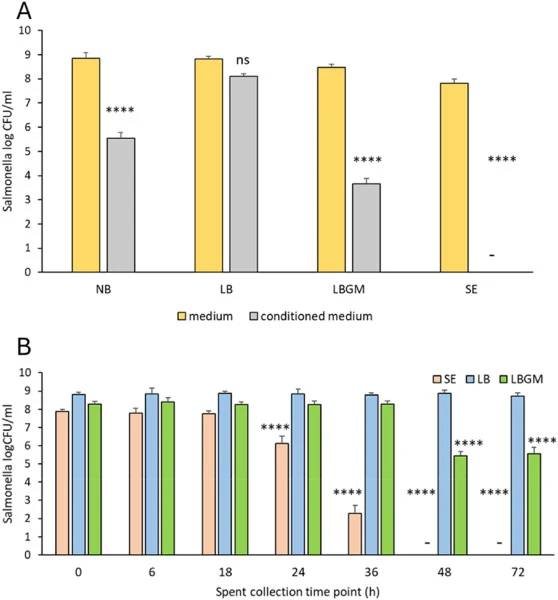
为确定胞外抗菌活性的动力学,在72 h培养期间的多个时间点收集CM并针对沙门氏菌进行测试(图1B)。在SE来源的CM中,前18 h未观察到可检测的抗菌活性。然而,24 h后出现显著抑制,36 h时进一步增强,48 h后将沙门氏菌降至不可检测水平,增菌后无存活细胞回收,并维持至72 h。相比之下,来自LBGM培养物的CM表现出延迟且仅部分活性,48 h后才首次检测到显著抑制,而来自LB培养物的CM在任何时间点均未显著降低沙门氏菌计数。与此同时,BX77在SE、LB和LBGM中各采样时间点达到相当的细胞密度(补充图S2),表明培养基依赖的抗沙门氏菌活性差异并非源于BX77生物量的差异,而是源于生长环境的组成。总之,这些结果表明BX77增强胞外抗沙门氏菌活性既受时间调控,又高度依赖植物源生长条件。尽管细菌活跃生长,抗菌活性延迟出现,这提示胞外抑制因子在SE培养过程中逐步积累,为研究这一环境调控抗菌反应的分子机制提供了框架。
【数据】培养基:LB、NB、LBGM、SE;抗菌活性时间点:0–72 h;活性首次检测:24 h(SE)、48 h(LBGM);完全抑制:48 h(SE);无活性:LB(所有时间点);生物量:SE、LB、LBGM相当(补充图S2);统计学:**P < 0.0001
3.2 全基因组测序鉴定BX77为贝莱斯芽孢杆菌
为确定BX77的分类学身份和基因组特征,对其完整基因组进行测序并进行比较基因组分析。基因组由单个环状染色体组成,大小为4,150,193 bp,G+C含量为46.30%,包含4,176个预测基因,其中包括3,971个蛋白编码序列(CDS)、27个rRNA基因、86个tRNA基因和34个非编码RNA(表1)。未检测到质粒。完整基因组序列已提交至GenBank,登录号为CP166773,使用Proksee生成的环状基因组图谱见补充图S1(Grant et al., 2023)。
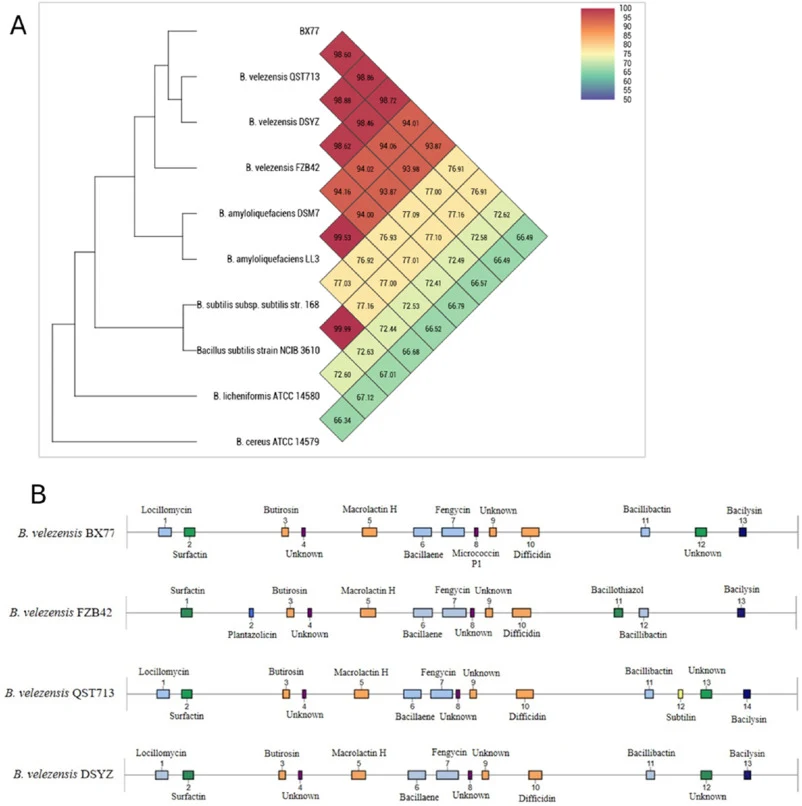
菌株BX77此前被鉴定为枯草芽孢杆菌群成员,但其确切分类学身份未知(Gollop et al., 2024)。本研究通过比较基因组分析解决了这一不确定性,确认BX77属于贝莱斯芽孢杆菌物种。与三个参考菌株FZB42(Chen et al., 2007)、QST713(Pandin et al., 2018)和DSYZ(Zhao et al., 2019)的两两比较产生的OrthoANI值分别为98.86%、98.72%和98.60%,数字DNA-DNA杂交(dDDH)值分别为93.4%、91.1%和92.2%(图2A;补充表S1)。这些值超过了OrthoANI和dDDH的公认物种阈值,确认BX77代表贝莱斯芽孢杆菌的一个独特菌株。
为进一步确定BX77的进化位置,基于OrthoFinder鉴定的单拷贝核心基因,使用166个公开可用的贝莱斯芽孢杆菌基因组进行系统发育基因组分析。所得系统发育树解析出四个主要分支,BX77聚类在较大的Clade D中(补充图S3)。在分析的基因组中,此前报道具有抗菌和抗真菌活性的菌株OSY-S3(Gerst et al., 2018)被鉴定为BX77最近的系统发育近缘种。BX77与参考菌株FZB42、QST713和DSYZ之间的直系同源基因簇比较分析揭示了高度保守的基因组背景。四个菌株共享3,371个直系同源簇,而BX77含有9个菌株特异性簇,包含27个基因。BX77还分别与FZB42、QST713和DSYZ独享13、49和95个额外簇(补充图S4)。这些结果表明BX77具有大体保守的贝莱斯芽孢杆菌基因组框架以及有限的一组菌株特异性附属基因。总之,这些分析确立BX77为贝莱斯芽孢杆菌的一个独特菌株,并为研究其胞外抗沙门氏菌活性背后的生物合成途径提供了比较基因组背景。
【数据】基因组大小:4,150,193 bp;G+C含量:46.30%;预测基因数:4,176;CDS:3,971;rRNA基因:27;tRNA基因:86;非编码RNA:34;质粒:未检测到;GenBank登录号:CP166773;OrthoANI值:98.86%(FZB42)、98.72%(QST713)、98.60%(DSYZ);dDDH值:93.4%(FZB42)、91.1%(QST713)、92.2%(DSYZ);分析基因组数:166;共享直系同源簇:3,371;BX77特异性簇:9个(27个基因);与FZB42独享:13个;与QST713独享:49个;与DSYZ独享:95个
3.3 BX77拥有广泛的抗菌生物合成基因簇
为探究在植物源生长条件下观察到的胞外抗沙门氏菌活性的遗传基础,使用antiSMASH分析BX77基因组的生物合成基因簇(BGC)。共鉴定出13个BGC,代表多种类型的次级代谢产物,包括非核糖体肽(NRPS)、聚酮化合物(PKS)、萜烯、核糖体合成和翻译后修饰肽(RiPP)以及NRPS-PKS杂合途径(表2)。7个BGC与antiSMASH数据库中实验表征的簇具有高相似性(91–100%)。这些包括已确立的抗菌代谢物surfactin(91%)、macrolactin H(100%)、bacillaene(100%)、fengycin/plipastatin(100%)、difficidin(100%)、bacillibactin(100%)和bacilysin(100%)。这些充分表征的簇包括此前与贝莱斯芽孢杆菌抗菌和抗真菌活性相关的多个抗菌途径,为BX77中观察到的胞外抗菌表型提供了基因组基础。其余6个BGC与先前表征的簇显示出低相似性(7–28%)或无显著相似性,提示BX77可能还编码此前未表征的次级代谢产物。这些包括两个萜烯簇、一个RiPP样簇、一个III型PKS簇以及两个与antiSMASH数据库中条目无可检测相似性的簇(表2)。
为将BX77的生物合成能力置于近缘贝莱斯芽孢杆菌菌株的背景中,将鉴定出的BGC与FZB42、QST713和DSYZ的BGC进行比较(图2B)。四个菌株的总体BGC repertoire高度保守,尤其是主要抗菌代谢物。然而,在几个低相似性簇中观察到差异,提示次级代谢潜力的菌株特异性变异。这些保守的抗菌途径以及几个潜在的新BGC表明,BX77既具有贝莱斯芽孢杆菌生防菌株的典型生物合成机制,又具有可能扩展其代谢 repertoire 的额外遗传特征。
【数据】BGC总数:13;高相似性BGC(91–100%):7个;surfactin相似性:91%;macrolactin H:100%;bacillaene:100%;fengycin/plipastatin:100%;difficidin:100%;bacillibactin:100%;bacilysin:100%;低相似性BGC(7–28%):6个;低相似性BGC类型:2个萜烯、1个RiPP样、1个III型PKS、2个无相似性
3.4 植物源生长条件诱导生物合成基因簇区域的广泛且时序性转录重塑
为研究贝莱斯芽孢杆菌BX77在芽提取物(SE)中产生的胞外抗沙门氏菌活性的分子基础,比较了在SE和LB中培养的转录组谱,时间点为18、36和……(原文此处截断)
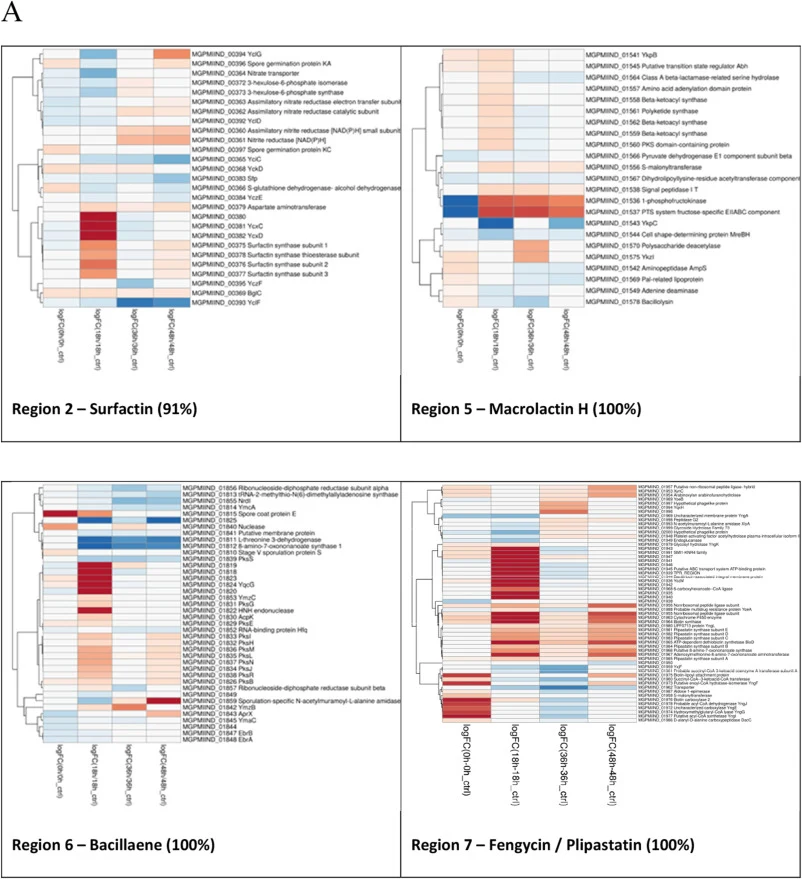
【数据】比较条件:SE vs LB;时间点:18、36、48 h;原文此处截断,后续数据未详述
讨论与解读
比较基因组分析确认BX77属于贝莱斯芽孢杆菌——一个以广泛生防潜力和定殖植物相关环境能力著称的物种。系统发育基因组重建将BX77置于Clade D中,与展现多样化抗菌活性的菌株归为一类。比较基因组分析进一步揭示了该物种典型抗菌生物合成 repertoire 的广泛保守性。然而,BX77还拥有菌株特异性附属基因和基因组岛,可能有助于生态适应和代谢多样化。因此,BX77结合了已确立贝莱斯芽孢杆菌生防菌株的保守基因组框架与可能增强其生态适应度和次级代谢能力的独特基因组特征。
本研究的另一个关键发现表明,BX77的抗沙门氏菌表型受培养基组成的强烈影响。BX77在常规实验室培养基中培养后表现出有限的胞外抗沙门氏菌活性,而在苜蓿芽提取物(SE)中生长则诱导了胞外代谢物的分泌,完全灭活了病原体。SE提供了生物学相关的植物源条件,含有碳水化合物、有机酸、矿物质、酚类化合物以及许多常规培养基中不存在的植物代谢物。
编译者解读: 该研究将"培养基即信号"的理念落到实处——同一菌株在LB中几乎无活性,换用植物源提取物后却完全灭活沙门氏菌,说明合成生物学中常用的富营养实验室条件可能系统性地低估了生防菌的真实潜力。13个BGC中7个高相似性簇的时序诱导与表型出现时间吻合,为后续定向激活沉默簇提供了候选靶点。局限在于SE成分复杂且批次间可能波动,从SE到实际芽苗表面的外推仍需田间验证;此外6个低相似性簇的产物结构与功能完全未知,是后续挖掘新型抗菌分子的富矿。
参考来源
期刊:Food Bioscience, 2026
DOI: 10.1016/j.fbio.2026.110143
DOI: 10.1016/j.fbio.2026.110143