来源:Heterologous expression of hagfish thread proteins EsTKα and EsTKγ in Pichia pastoris and in vitro self-assembly into an ordered fibrous network(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
盲鳗黏液丝蛋白EsTKα与EsTKγ因独特的α-螺旋结构赋予其优异的力学性能,被视为可持续生物材料的候选。但大肠杆菌等原核系统难以实现其正确折叠与翻译后修饰。本研究以毕赤酵母为宿主,系统筛选不同表型菌株、优化信号肽与发酵条件,最终在5 L发酵罐中实现EsTKα产量350.0 mg/L、EsTKγ产量385.0 mg/L,并证实纯化蛋白可在体外自组装为有序纤维网络。
研究背景
盲鳗黏液丝蛋白属于中间丝蛋白家族,核心特征为中央α-螺旋结构域。这类蛋白构成黏液丝的骨架,赋予其突出的强度与韧性,因此具备作为可持续生物材料的潜力。通过调控蛋白二级结构转变,可精确设计材料的力学性能,使其在肌腱修复支架等医学场景以及环境友好型仿生材料领域均有应用前景。盲鳗黏液中的中间丝由两个亚基组成:丝角蛋白α(EsTKα)和丝角蛋白γ(EsTKγ)。二者在体外可自发组装——先形成异二聚体卷曲螺旋复合物,再组织为高阶纳米纤维,最终形成宏观连续纤维网络。Koch等首次报道并提交了EsTKα与EsTKγ的氨基酸序列,为后续异源表达研究提供了关键基础。2015年,Fu等首次在大肠杆菌中实现了EsTKα与EsTKγ的异源表达,但原核系统在折叠和翻译后修饰方面的局限促使研究者转向真核表达平台。
研究方法
2.1 菌株、试剂与培养基
质粒构建与扩增使用购自碧云天(中国上海)的大肠杆菌TOP10菌株。评估了多种毕赤酵母菌株作为EsTKα和EsTKγ的表达宿主,包括X33、GS115、SMD1168H和KM71(碧云天)。本实验室构建并保存的重组菌株TOP10-EsTKα和TOP10-EsTKγ用于构建EsTKα和EsTKγ表达质粒(UniProtKB:Q90501和Q90502)。限制性内切酶和DNA连接试剂盒购自诺唯赞生物科技(中国南京)。Zeocin(抗生素)购自Bioroyee(中国北京)。PrimeSTAR Max DNA聚合酶购自TaKaRa生物技术公司(中国大连)。大肠杆菌重组菌株在37 °C下于Luria–Bertani(LB)或含适当浓度zeocin的低盐LB培养基中培养。毕赤酵母重组菌株在30 °C下于含适当抗生素的酵母提取物蛋白胨葡萄糖(YPD)培养基中培养。种子培养在BMGY培养基(1%酵母提取物、2%蛋白胨、1.34% YNB、1%甘油、0.1 M磷酸缓冲液,pH 6.0)中进行。诱导时使用BMMY培养基(1%酵母提取物、2%蛋白胨、1.34% YNB、1%甲醇、0.1 M磷酸缓冲液,pH 6.0)作为发酵培养基。高细胞密度补料分批发酵在5 L生物反应器中进行,以BMGY作为批次培养基。
【数据】菌株:TOP10、X33、GS115、SMD1168H、KM71;培养基:LB、低盐LB、YPD、BMGY、BMMY;温度:大肠杆菌37 °C,毕赤酵母30 °C;YNB浓度:1.34%;甘油浓度:1%;甲醇浓度:1%;磷酸缓冲液浓度:0.1 M;pH:6.0;zeocin筛选浓度:100 μg/mL(见2.3节)
2.2 重组质粒的构建
本研究中使用的菌株及构建的质粒全面列于表S2,相应引物序列详见表S3。本实验室保存的EsTKα和EsTKγ基因被无缝克隆至pPICZαA质粒中。为提高EsTKα和EsTKγ的分泌效率,将pPICZαA载体中的天然α-交配因子(α-MF)信号肽系统性地替换为11种内源性酵母信号肽。本研究中评估的内源性酵母信号肽完整列表见表1。
【数据】质粒:pPICZαA;信号肽数量:11种内源性酵母信号肽;基因:EsTKα、EsTKγ;原始信号肽:α-MF;其余参数:原文未详述
2.3 重组菌株的构建
重组质粒经适当限制性内切酶线性化后,通过电穿孔法导入四种毕赤酵母菌株(X33、GS115、SMD1168H和KM71)。每个携带与特定信号肽融合的EsTKα或EsTKγ编码基因的质粒被整合到SMD1168H基因组中,以产生能够分泌目标蛋白的重组菌株。使用含100 μg/mL zeocin的YPDZ平板筛选具有最佳表达和潜在多拷贝整合的菌株。在30 °C下培养约3天后,使用引物EsTKP-F、EsTKαP-R和EsTKγP-R通过菌落PCR验证表达盒的成功基因组整合。
【数据】菌株:X33、GS115、SMD1168H、KM71;zeocin浓度:100 μg/mL;培养温度:30 °C;培养时间:约3天;电穿孔法:用于质粒导入;验证引物:EsTKP-F、EsTKαP-R、EsTKγP-R
2.4 摇瓶培养
成功构建并验证表达EsTKα和EsTKγ的重组菌株后,选取阳性转化子接种至50 mL BMGY培养基中,在30 °C、200 rpm条件下培养约24小时。随后通过离心收集细胞,重悬于50 mL BMMY培养基中。重悬细胞在BMMY培养基中于30 °C、200 rpm条件下培养5天。每天向培养物中补充1%甲醇,并收集1 mL样品测定培养密度和蛋白表达。通过以0.5%为增量补充甲醇至终浓度0%–3%(v/v)的范围,系统评估了诱导剂浓度对细胞分泌效率的影响。此外,为评估混合碳源补料策略对蛋白分泌的影响及潜在降低代谢负担的效果,以不同体积比(山梨醇与甲醇之比:1:1、1:2、1:3、1:4、1:5、1:6)补充无菌山梨醇溶液(1 M)和1.5%甲醇。
【数据】BMGY体积:50 mL;BMMY体积:50 mL;温度:30 °C;转速:200 rpm;培养时间:种子培养约24 h,诱导培养5天;甲醇补充:每天1%;甲醇浓度梯度:0%–3%(v/v),增量0.5%;山梨醇浓度:1 M;甲醇浓度(混合碳源):1.5%;山梨醇与甲醇体积比:1:1、1:2、1:3、1:4、1:5、1:6;样品体积:1 mL
2.5 补料分批发酵
补料分批发酵在5 L发酵罐中进行。首先,将单菌落接种至10 mL YPD培养基中,在30 °C、200 rpm条件下培养24小时。然后,将4%的种子培养物转接至200 mL YPD中,在30 °C、200 rpm条件下培养20小时。最后,将8%的二级种子培养物接种至5 L发酵罐中的BMGY(4%甘油)培养基中。初始温度维持在30 °C。甘油耗尽后,培养物经历2小时的碳饥饿期。随后进入诱导期,以甲醇补料,基于溶解氧稳态(DO-stat)策略控制在30%(25 °C、1.5 vvm、500 rpm,通过添加25%(v/v)氨水维持pH 6.0)。每24小时收集发酵液样品以测定细胞干重(DCW)和蛋白表达。简言之,将5 mL发酵液样品置于预称重的试管中,以12,000 rpm离心5分钟。试管在105 °C下干燥至水分完全蒸发后称重。DCW以g/L(g DCW/L培养液)计算并报告。
【数据】发酵罐体积:5 L;种子培养:10 mL YPD,30 °C,200 rpm,24 h;二级种子:200 mL YPD,30 °C,200 rpm,20 h;接种量:一级4%,二级8%;BMGY甘油浓度:4%;初始温度:30 °C;碳饥饿时间:2 h;诱导温度:25 °C;通气量:1.5 vvm;转速:500 rpm;pH:6.0(25% v/v氨水调节);DO-stat设定值:30%;取样间隔:每24 h;DCW测定:5 mL样品,12,000 rpm离心5 min,105 °C干燥
2.6 Western blot分析
收集培养上清液,使用30 kDa超滤装置在4,000 rpm、4 °C条件下浓缩20分钟,然后用1 M Tris-HCl缓冲液(pH 6.0)稀释至原体积的一半。上清液中的蛋白通过SDS-PAGE分离,然后转移至PVDF膜上。膜与小鼠抗多组氨酸抗体(天根,中国北京)孵育,随后与HRP偶联的山羊抗小鼠IgG(义翘神州,中国北京)孵育进行Western blot分析。使用Pro-light HRP化学发光试剂盒(天根,中国北京)可视化蛋白条带,并使用ChemiDoc XRS(Bio-Rad,美国)和Image Lab软件进行光密度分析。
【数据】超滤装置截留分子量:30 kDa;离心条件:4,000 rpm,4 °C,20 min;缓冲液:1 M Tris-HCl,pH 6.0;一抗:小鼠抗多组氨酸抗体;二抗:HRP偶联山羊抗小鼠IgG;检测试剂盒:Pro-light HRP化学发光试剂盒;成像设备:ChemiDoc XRS
2.7 目标蛋白的分离与体外组装
为从发酵上清液中分离和纯化目标蛋白以进行后续结构和自组装分析,采用等电点(pI)沉淀与硫酸铵相结合的序贯沉淀法。首先,诱导后120小时,收集20 mL发酵液,以8,000 rpm、4 °C离心20分钟,收集上清液。上清液使用30 kDa超滤装置在4,000 rpm、4 °C条件下浓缩20分钟,然后用1 M Tris-HCl缓冲液(pH 6.0)稀释至原体积。重复稀释和浓缩过程以去除残留培养基成分。然后使用稀HCl或NaOH将pH调节至其pI。在冰浴(0–4 °C)中持续搅拌下,向悬浮液中逐渐加入细磨硫酸铵至30%饱和度。通过高速离心(12,000 rpm,20 min,4 °C)收集沉淀,去除上清液。将絮状沉淀重悬于Tris-HCl缓冲液(pH 6.0)中重新溶解目标蛋白,并重复序贯沉淀操作。最终絮状沉淀重悬于最小体积的Tris-HCl缓冲液中,转移至试管中,冻干获得干粉用于后续分析。为启动体外自组装,将纯化的EsTKα和EsTKγ稀释溶液(1 mg/mL,溶于0.1 M Tris-HCl缓冲液,pH 9.0)以1:1比例混合。组装混合物使用30 kDa超滤装置浓缩,然后冻干获得组装蛋白粉末。
【数据】发酵液体积:20 mL;离心条件:8,000 rpm,4 °C,20 min(首次),12,000 rpm,20 min,4 °C(沉淀收集);超滤装置截留分子量:30 kDa;超滤离心条件:4,000 rpm,4 °C,20 min;缓冲液:1 M Tris-HCl,pH 6.0;硫酸铵饱和度:30%;冰浴温度:0–4 °C;自组装蛋白浓度:1 mg/mL;自组装缓冲液:0.1 M Tris-HCl,pH 9.0;EsTKα:EsTKγ混合比:1:1;诱导后时间:120 h
2.8 目标蛋白及组装蛋白的表征
使用扫描电子显微镜(SEM,Hitachi SU1510)分析冻干组装蛋白凝胶的微观结构。将一定量的冻干蛋白凝胶用导电胶固定在样品台上,进行金溅射镀膜。样品在5 kV加速电压下使用SEM观察。使用ONLAB EU-2600光谱仪记录蛋白的紫外-可见吸收光谱,扫描范围为——
【数据】SEM型号:Hitachi SU1510;加速电压:5 kV;镀膜方式:金溅射;紫外-可见光谱仪:ONLAB EU-2600;扫描范围:原文未详述(原文此处截断)
研究结果
3.1 EsTKα和EsTKγ基因在X33菌株中的异源表达
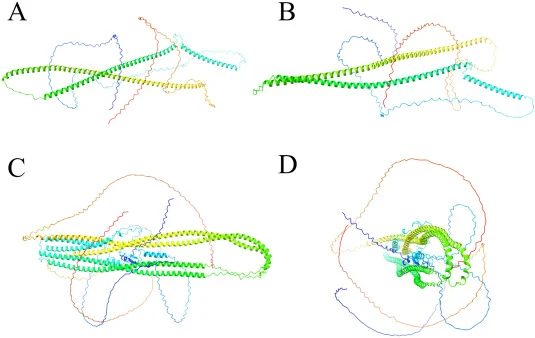
野生型菌株X33和GS115是蛋白表达中最常用的毕赤酵母菌株。AOX1启动子和酿酒酵母α-交配因子(α-MF)信号肽通常用于将重组蛋白高效分泌至培养上清液中。从UniProt数据库检索EsTKα和EsTKγ的氨基酸序列。使用一套计算工具预测和分析EsTKα和EsTKγ的结构特征和理化性质。使用AlphaFold 3预测EsTKα和EsTKγ的三维结构,如图1A和B所示。模型预测α-螺旋结构域和无规卷曲占主导地位,β-折叠元件含量显著较低(图1C和D)。这种富含α-螺旋的特征是中间丝家族蛋白的典型特征。单个蛋白亚基及其组装复合物的模型均揭示了大片预测为无序且溶剂暴露的区域,使其成为蛋白酶攻击的潜在靶点。这些区域可能对应于柔性结构域(如环区)或缺乏可靠同源模板或进化信息的区域。过度无序区域产生松散的蛋白结构,降低了对蛋白酶的抵抗力。此外,无序区域之间的相互作用也可能干扰蛋白折叠和组装,损害蛋白稳定性。无序区域的存在可能是EsTKα和EsTKγ在大肠杆菌中容易形成包涵体且在毕赤酵母中易于降解的原因之一。值得注意的是,EsTKα和EsTKγ的α-螺旋结构域被预测会相互缠绕并形成明显的超螺旋卷曲螺旋结构,这是中间丝机械完整性所必需的结构基序。
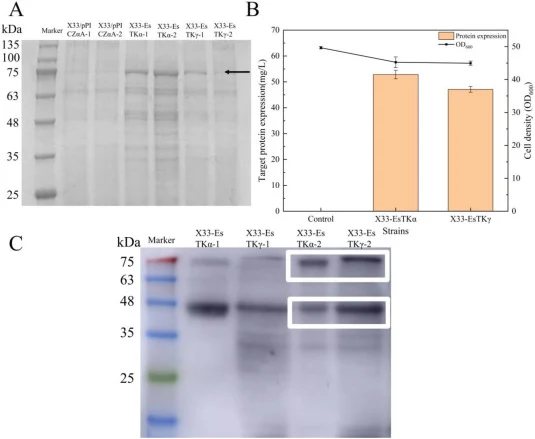
使用ProtParam、DeepTMHMM、NetPhos和NetPhosYeast对EsTKα和EsTKγ蛋白亚基进行了全面的计算机分析。结果总结于表S4。ProtParam分析显示,重组EsTKα和EsTKγ蛋白的计算分子量分别为67.52 kDa和63.68 kDa,理论pI分别为8.65和5.14。对菌株X33-EsTKα和X33-EsTKγ分泌的重组蛋白进行SDS-PAGE分析,显示表观分子量约为70.0 kDa(EsTKα)和70.5 kDa(EsTKγ)的条带(图2A),略高于预测值。表观分子量的轻微增加可能是由于翻译后修饰,特别是N-连接糖基化,这在毕赤酵母中蛋白折叠和分泌过程中发生。主条带下方存在若干低分子量条带,表明发酵过程中目标蛋白发生了部分蛋白水解降解。胞外产量为EsTKα 52.8 mg/L和EsTKγ 47.1 mg/L(图2B)。为确认重组蛋白的身份及成功分泌,将选定转化子的上清液浓缩并进行Western blot分析。如图2C所示,检测到对应于EsTKα和EsTKγ预期分子量的免疫反应条带,确认了两种目标蛋白的成功胞外表达。目标条带下方存在的低分子量免疫反应条带也表明发酵过程中发生了蛋白降解。
【数据】EsTKα计算分子量:67.52 kDa;EsTKγ计算分子量:63.68 kDa;EsTKα理论pI:8.65;EsTKγ理论pI:5.14;EsTKα表观分子量:约70.0 kDa;EsTKγ表观分子量:约70.5 kDa;EsTKα胞外产量:52.8 mg/L;EsTKγ胞外产量:47.1 mg/L;β-折叠含量:显著较低;主要二级结构:α-螺旋和无规卷曲
3.2 EsTKα和EsTKγ基因表达的优化
虽然X33菌株结合pPICZαA载体是广泛使用且通常有效的异源蛋白生产系统,但它可能并非对所有表达场景都是最优解,特别是对于具有特定挑战的蛋白,如易受蛋白水解降解的蛋白。高细胞密度发酵相关条件可能加剧重组蛋白对蛋白水解降解的固有敏感性,常导致目标蛋白在分泌后被胞外或液泡蛋白酶快速切割。SMD1168H(his4 pep4)菌株通过删除编码蛋白酶B的prb1基因进行改造,据报道可通过降低关键液泡蛋白酶的活性显著减轻胞外蛋白水解,从而提高易受蛋白水解降解的重组蛋白的稳定性和产量。信号肽的选择也是决定毕赤酵母中异源蛋白分泌效率和后续产量的关键因素。例如,Liang等使用SignalP 4.0预测信号肽(Scw、Dse和Exg)成功表达了EGFP和南极假丝酵母脂肪酶B(CALB)。为提高目标蛋白EsTKα和EsTKγ的分泌表达,采用序贯优化策略。首先优化表达宿主。然后使用优化后的宿主筛选一组异源信号肽,以鉴定异源蛋白分泌的最有效组合(图3)。
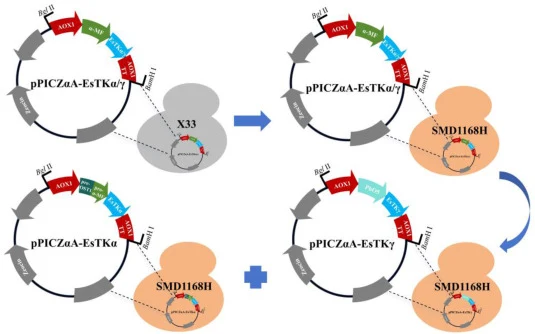
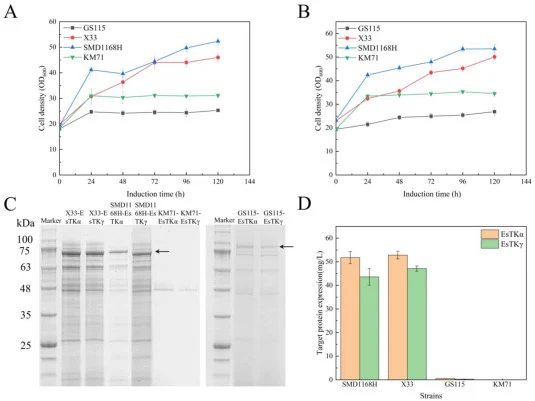
为鉴定异源蛋白表达的最佳宿主菌株,系统评估了四种不同的毕赤酵母菌株:X33、SMD1168H、GS115和KM71。将四种宿主菌株分别通过电穿孔转化先前构建的穿梭载体pPICZαA-EsTKα和pPICZαA-EsTKγ。生长曲线分析表明,不同宿主菌株对EsTKα和EsTKγ表现出相似的增殖趋势(图4A和B)。值得注意的是,X33和SMD1168H菌株积累的生物量显著多于GS115和KM71转化子,表明对诱导条件具有更强的适应性。培养上清液的SDS-PAGE分析确认目标蛋白由X33、SMD1168H和GS115菌株成功表达和分泌(图4C)。此外,SDS-PAGE检测到的42.0 kDa条带对应于Western blot分析中观察到的相同分子量条带。该条带可能代表蛋白水解片段。更准确地鉴定蛋白降解产物需要质谱和其他分析技术。X33和SMD1168H菌株产生的目标蛋白水平相当,但SMD1168H菌株产生的低分子量蛋白水解降解条带更少。相比之下,GS115菌株仅表现出极少的蛋白表达。KM71菌株(MutS表型)未能产生可检测水平的目标蛋白,这与其甲醇代谢受损限制了蛋白表达(特别是大分子或复杂蛋白的表达)相一致。野生型X33菌株产生52.8 mg/L的EsTKα和47.1 mg/L的EsTKγ;在相同发酵条件下,SMD1168H菌株产生51.75 mg/L的EsTKα和43.59 mg/L的EsTKγ(图4D)。由于分泌产量与X33大致相当但蛋白水解稳定性更优,选择SMD1168H菌株用于后续研究。
为进一步提高分泌效率,在SMD1168H背景下筛选了12种内源性和异源性信号肽,包括α-MF(图S1)。preOst1-pro-α-MF杂合信号肽被鉴定为对EsTKα分泌最有效,产量达到72.76 mg/L。PhO5信号肽对EsTKγ的产量最高,为69.63 mg/L(图5A)。与初始产量相比,优化条件使EsTKα产量提高40.6%,EsTKγ产量提高59.7%。
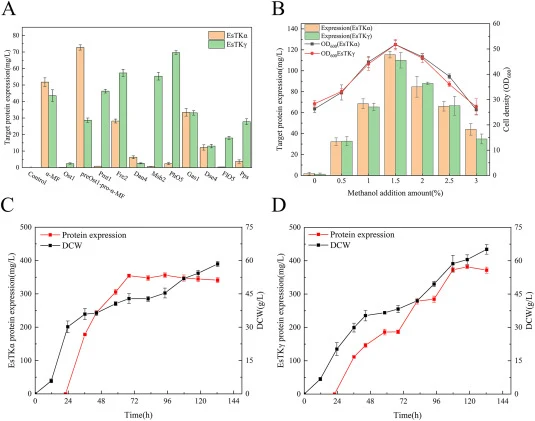
【数据】菌株:X33、SMD1168H、GS115、KM71;X33产量:EsTKα 52.8 mg/L,EsTKγ 47.1 mg/L;SMD1168H产量:EsTKα 51.75 mg/L,EsTKγ 43.59 mg/L;蛋白水解片段分子量:42.0 kDa;信号肽数量:12种;EsTKα最佳信号肽:preOst1-pro-α-MF,产量72.76 mg/L;EsTKγ最佳信号肽:PhO5,产量69.63 mg/L;EsTKα产量提升:40.6%;EsTKγ产量提升:59.7%;KM71表型:MutS;GS115表达水平:极低
3.3 发酵条件优化与发酵罐放大
在甲基营养型酵母毕赤酵母表达系统中,AOX1启动子的转录活性——
(原文此处截断)
【数据】原文未详述(原文此处截断)
讨论与解读
本研究以毕赤酵母为宿主,成功实现了盲鳗黏液丝蛋白EsTKα和EsTKγ的异源分泌表达。通过比较具有不同表型特征的毕赤酵母菌株(X33、GS115、KM71、SMD1168H)、合理的信号肽工程改造以及发酵参数优化,系统优化了蛋白生产过程。蛋白酶缺陷型菌株SMD1168H被鉴定为最佳生产宿主,提高了最终蛋白完整性和产量。该工艺在5 L生物反应器中放大至 high-cell-density fed-batch fermentation,实现了EsTKα胞外产量350.0 mg/L和EsTKγ胞外产量385.0 mg/L。与大肠杆菌系统相比,毕赤酵母生产的蛋白表现出天然构象和活性。这消除了繁琐且昂贵的蛋白提取和纯化步骤,特别是包涵体变性和复性,同时提高了蛋白表达。为进一步增强功能蛋白的分泌表达,后续优化方法可能包括增加基因拷贝数和共表达伴侣蛋白或参与高效蛋白表达途径的因子。本研究采用等电点和硫酸铵沉淀相结合的序贯纯化方案,从复杂发酵上清液中回收和分离重组蛋白。EsTKα和EsTKγ随后孵育——
(原文此处截断)
编译者解读:
该研究的方法选择体现了合成生物学中"宿主适配"的核心逻辑:面对易降解的中间丝蛋白,果断放弃大肠杆菌,转而利用蛋白酶缺陷型毕赤酵母SMD1168H,配合信号肽替换策略,将产量从52.8 mg/L提升至350.0 mg/L。体外自组装验证了真核表达系统对复杂结构蛋白的折叠优势。局限在于,蛋白仍存在部分降解,且自组装机制的结构表征尚不充分。未来若结合多拷贝整合与伴侣蛋白共表达,有望进一步突破产量瓶颈。
参考来源
期刊:Synthetic and Systems Biotechnology, 2026
DOI: 10.1016/j.synbio.2026.02.012
DOI: 10.1016/j.synbio.2026.02.012