来源:De novo biosynthesis of eriocitrin in Saccharomyces cerevisiae through deep learning-guided enzyme screening and systematic metabolic engineering(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
圣草次苷是一种具有抗氧化和抗炎活性的黄烷酮-7-O-二糖,在功能性食品和医药领域前景广阔。但传统植物提取受限于活性成分丰度低和季节性波动,难以规模化生产。本研究在工程化酿酒酵母中建立了从葡萄糖到圣草次苷的从头合成途径:先以生物信息学与深度学习相结合的策略鉴定出两个高效黄酮-7-O-葡萄糖基转移酶,再重建UDP-鼠李糖合成途径并强化UDP-葡萄糖供给,补加300 mg/L圣草酚后圣草次苷滴度达147.9 mg/L;进一步构建圣草酚生产菌株(滴度237.8 mg/L),与糖基化模块组合后实现圣草次苷从头合成,滴度30.5 mg/L。
研究背景
黄酮类化合物广泛存在于植物源性食品中,具有抗氧化、抗炎、降脂和抗癌等多种生物活性。然而其水溶性极低,严重限制了生物利用度和应用潜力。糖基化是提高黄酮水溶性、增强生物活性并降低毒性的常用策略——糖基化橙皮素可得到新橙皮苷,后者是新甜味剂新橙皮苷二氢查尔酮的前体;葛根素经葡萄糖基化后水溶性提高14倍。圣草次苷是一种主要存在于芸香科植物中的生物活性黄烷酮-7-O-二糖,在营养保健品和药物领域潜力显著。但传统生产方法瓶颈突出:植物提取受丰度低、加工复杂和农业依赖的限制,化学合成则受有毒试剂、苛刻条件和溶剂污染等工业约束。相比之下,利用工程化酿酒酵母细胞工厂进行微生物生物合成提供了可规模化的工业平台,已成功用于生产黄酮、萜类和酚类化合物等多种高价值天然产物。
研究方法
2.1 化学品与试剂
黄酮标准品购自上海源叶生物科技有限公司。酶与试剂盒(Phanta Max Master Mix、Green Taq Mix、One Step Cloning Kit、DNA Gel Extraction Kit和Plasmid Mini Kit)购自南京诺唯赞生物科技股份有限公司。氨苄青霉素购自北京索莱宝科技有限公司。胰蛋白胨和酵母提取物购自Oxoid(英国汉普郡)。所有经密码子优化的植物来源基因由生工生物工程(上海)股份有限公司化学合成,列于表S1(密码子优化的外源基因序列列于表S2)。所有引物由生工生物工程(上海)股份有限公司合成,详情见表S3。
【数据】试剂来源:黄酮标准品(源叶生物);酶与试剂盒(诺唯赞);氨苄青霉素(索莱宝);胰蛋白胨与酵母提取物(Oxoid);基因合成与引物合成(生工生物);具体用量:原文未详述
2.2 质粒与菌株构建
所有质粒均在大肠杆菌JM109中构建,编目于表S4。线性化的pY26、pRS423和pRS424载体作为骨架,通过重叠延伸PCR组装表达盒。靶向指定基因组位点的CRISPR引导RNA使用CHOPCHOP(http://chopchop.cbu.uib.no/;表S5)设计。所有质粒通过同源重组(ClonExpress MultiS One Step Cloning Kit)组装。重组质粒先通过大肠杆菌菌落PCR初筛,再经测序验证。酿酒酵母菌株及基因型汇总于表S6。所有遗传修饰均以CEN.PK2-1D衍生菌株C800(MATα; ura3-52; trp1-289; leu2-3112; his3Δ1; MAL2-8C; SUC2; gal80::G418)为亲本菌株。天然元件(启动子、终止子、基因)从C800基因组DNA扩增,密码子优化的异源基因则来自合成片段。染色体操作(包括过表达、缺失和整合)均使用CRISPR/Cas9进行。重组DNA(质粒、整合片段、敲除盒)采用LiAc/ssDNA/PEG法转化酵母。转化子在SD培养基上、30 °C下筛选3–5天,PCR确认的阳性克隆随后在YPD培养基中培养。
【数据】菌株:大肠杆菌JM109、酿酒酵母C800(CEN.PK2-1D衍生);载体:pY26、pRS423、pRS424;转化方法:LiAc/ssDNA/PEG;筛选温度:30°C;筛选时间:3–5天;培养基:SD、YPD;CRISPR设计工具:CHOPCHOP;组装方法:重叠延伸PCR、同源重组;具体用量:原文未详述
2.3 培养基与培养条件
大肠杆菌JM109在LB培养基(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl、100 μg/mL氨苄青霉素)中培养。酿酒酵母菌株在YPD(20 g/L胰蛋白胨、10 g/L酵母提取物、20 g/L葡萄糖)中维持。转化子在SD培养基(20 g/L葡萄糖、1.74 g/L无氨基酸酵母氮源、5 g/L硫酸铵)中筛选,根据需要补充相应氨基酸或尿嘧啶(50 mg/L)以弥补营养缺陷。阳性克隆随后转移至含1 g/L 5-氟乳清酸的YPD平板,以筛选gRNA质粒消除和URA3原养型恢复。摇瓶发酵时,将各酵母菌株单菌落接种至5 mL液体SD培养基,30 °C、200 rpm振荡培养20 h制备种子液。随后将1%(v/v)种子液接种至250 mL摇瓶中的25 mL YPD培养基,30 °C、220 rpm振荡培养。发酵12 h后添加300 mg/L圣草酚(从头合成菌株除外)。培养96 h后收集用于HPLC分析。
【数据】培养基:LB(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl、100 μg/mL氨苄青霉素)、YPD(20 g/L胰蛋白胨、10 g/L酵母提取物、20 g/L葡萄糖)、SD(20 g/L葡萄糖、1.74 g/L无氨基酸酵母氮源、5 g/L硫酸铵);尿嘧啶:50 mg/L;5-氟乳清酸:1 g/L;种子培养:30°C、200 rpm、20 h;发酵培养:30°C、220 rpm;接种量:1%(v/v);圣草酚添加:300 mg/L(发酵12 h后);收获时间:96 h
2.4 UF7GT生物信息学分析
生物信息学分析包括从NCBI数据库(https://www.ncbi.nlm.nih.gov/)检索30条黄酮葡萄糖基转移酶序列进行系统发育分析。使用MEGA11软件构建最大似然树(1000次自举重复),并通过交互式生命树(iTOL)在线工具可视化(https://itol.embl.de/)。30条植物来源UF7GT序列的开放阅读框(ORF)用ORFfinder预测(https://www.ncbi.nlm.nih.gov/orffinder/)。氨基酸序列的理化性质用ExPASy-ProtParam分析(https://web.expasy.org/protparam/)。多序列比对分别用DNAMAN和GENEDOC进行和可视化。UDP-糖基转移酶的酶功能用REME(反应酶挖掘与评估)数据库预测(https://reme.biodesign.ac.cn/)。
【数据】序列数量:30条UF7GT;数据库:NCBI、REME;软件:MEGA11(1000次自举)、iTOL、ORFfinder、ExPASy-ProtParam、DNAMAN、GENEDOC;具体参数:原文未详述
2.5 分析方法
黄酮及黄酮糖苷的定量分析采用HPLC进行。取细胞培养物0.5 mL与等体积甲醇混合,涡旋5 min,12,000 rpm离心2 min,上清液经0.22 μm膜过滤后于−20 °C保存待分析。色谱分离在Shimadzu Sustain C18柱(250 mm × 4.6 mm,5 μm)上进行,柱温30 °C,HPLC系统配二极管阵列检测器,检测波长284 nm。进样量10 μL,流速1 mL/min,流动相为含0.1%(v/v)甲酸的水(A)和乙腈(B),梯度程序:0–10 min B相从10%线性升至40%,10–20 min升至50%,20–25 min降至10%,25–30 min维持10%。
【数据】样品处理:0.5 mL培养物+等体积甲醇,涡旋5 min,12,000 rpm离心2 min,0.22 μm过滤,−20°C保存;色谱柱:Shimadzu Sustain C18(250 mm × 4.6 mm,5 μm);柱温:30°C;检测波长:284 nm;进样量:10 μL;流速:1 mL/min;流动相:0.1%甲酸水(A)、乙腈(B);梯度:0–10 min 10%→40% B,10–20 min→50% B,20–25 min→10% B,25–30 min维持10% B
2.6 统计分析
数据以三次独立重复的均值±标准差表示。统计显著性采用单因素方差分析和Student's t检验确定,显著性水平表示为∗p < 0.05和∗∗p < 0.01。
【数据】重复次数:3次独立重复;统计方法:单因素方差分析、Student's t检验;显著性水平:∗p < 0.05、∗∗p < 0.01
研究结果
3.1 深度学习驱动的UF7GT发现与表征
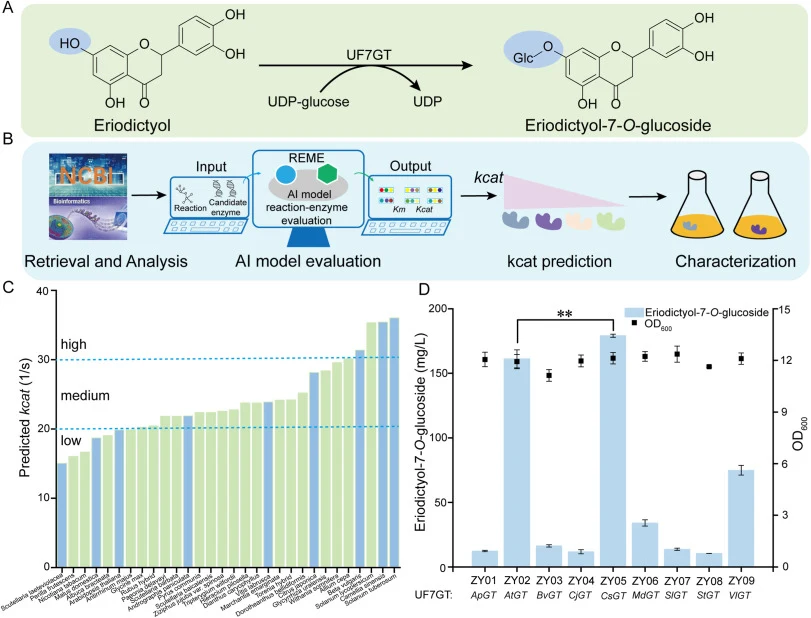
圣草次苷由圣草酚经两步糖基化途径生物合成。第一步糖基化由UF7GT催化,将圣草酚转化为圣草酚-7-O-葡萄糖苷(图2A)。然而,大多数UF7GT对圣草酚特异性有限,常催化结构类似物(如柚皮素和橙皮素)的脱靶糖基化。这种酶混杂性降低了最终产物纯度和整体途径效率。为改进催化性能优良的酶发现,生物信息学与人工智能(机器学习和深度学习)的整合已成为酶挖掘的主要方向。为此,我们建立了用于酶挖掘的集成计算-实验框架(图2B)。工作流程始于从NCBI数据库检索30条跨物种UF7GT基因,随后进行生物信息学分析。开放阅读框预测表明这些UF7GT基因长度为1344–1786 bp。对推导蛋白理化性质的分析显示,它们编码450–505个氨基酸,理论等电点(pI)低于7(表S7)。30条UF7GT序列的系统发育分析揭示,拟南芥、乌拉尔甘草、滇牡丹和蓝眼菊相对于其他植物物种存在进化上较远的关系。主要进化枝包含谱系特异性序列组(图S1)。多序列比对确认所有UF7GT异构体均含特征性GT-B折叠和植物保守的PSPG基序(图S2)。如前报道,UDP-糖结合区在这些UGT中高度保守。为评估UF7GT活性,我们采用了REME平台。该平台整合六种基于深度学习技术的前沿方法(ESP、DLKcat、TurNuP、DeepET、KM_prediction和EpHod),构建多维评估模型以识别圣草酚-7-O-葡萄糖苷合成反应。其中,TurNuP模型利用图神经网络(GNN)和卷积神经网络(CNN),通过在数百万酶学数据点上进行迁移学习实现精确kcat预测(图2C)。基于预测的kcat值,选取高(CsGT、StGT、BvGT)、中(CjGT、VlGT、ApGT)、低(AtGT、MdGT、SlGT)活性等级的候选酶进行实验验证。相应基因克隆至pY26载体并转化至糖苷水解酶缺陷菌株E033,生成菌株ZY01–ZY09。发酵过程中向培养基添加300 mg/L圣草酚作为底物。所有九种酶均表现出UF7GT催化活性(图2D和图S3)。其中,茶树的CsGT(菌株ZY05)和拟南芥的AtGT(菌株ZY02)催化效率最高,分别产生179.2和161.2 mg/L圣草酚-7-O-葡萄糖苷。总体而言,理性计算、分析和筛选的集成方法使我们从一系列候选酶中鉴定出两种活性最高的酶——CsGT和AtGT。
【数据】基因长度:1344–1786 bp;氨基酸数:450–505;pI:<7;候选酶数量:30条序列、9种酶验证;菌株:E033、ZY01–ZY09;底物添加:300 mg/L圣草酚;最高产量:CsGT(ZY05)179.2 mg/L、AtGT(ZY02)161.2 mg/L圣草酚-7-O-葡萄糖苷;深度学习模型:ESP、DLKcat、TurNuP、DeepET、KM_prediction、EpHod
3.2 UDP-鼠李糖的代谢重建用于圣草次苷生物合成
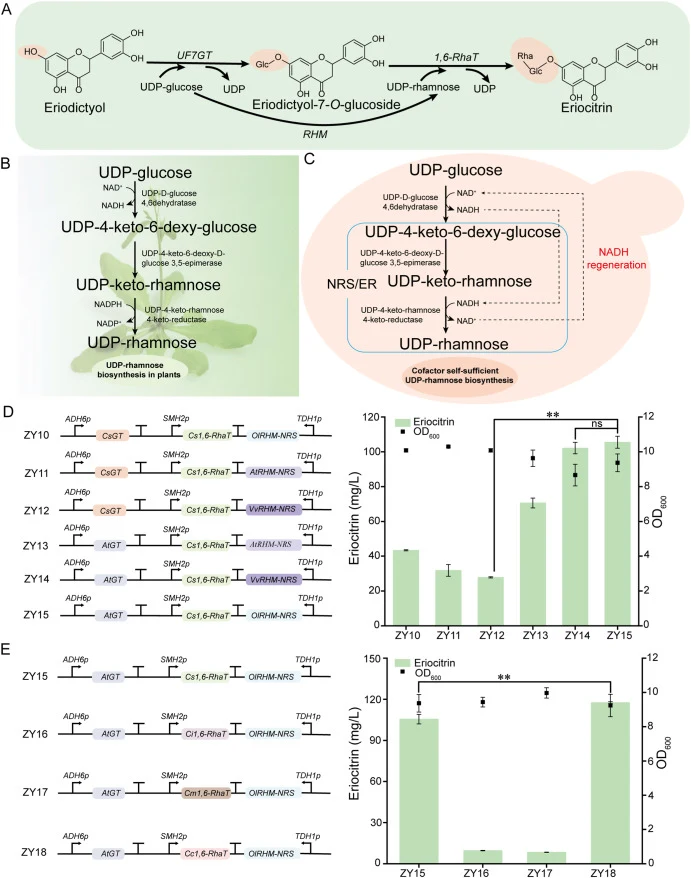
圣草次苷生物合成的第二步糖基化由1,6-RhaT催化。该酶以圣草酚-7-O-葡萄糖苷为糖基受体、UDP-鼠李糖为糖基供体。UDP-鼠李糖由UDP-葡萄糖经RHM合成(图3A)。然而,酿酒酵母缺乏内源性UDP-鼠李糖生物合成途径。当前依赖外源UDP-鼠李糖补充或化学合成供体的策略因成本高、跨膜运输效率低和代谢失衡而经济上不可行。为解决此限制,我们通过引入异源植物来源的UDP-鼠李糖生物合成途径来工程化酵母代谢网络。在植物中,UDP-鼠李糖由UDP-葡萄糖经多功能酶RHM催化的三步连续反应生物合成(图3B),该酶整合以下活性:UDP-d-葡萄糖4,6-脱氢酶、UDP-4-酮-6-脱氧-d-葡萄糖3,5-差向异构酶和UDP-4-酮-鼠李糖4-酮还原酶。RHM的N端结构域将UDP-葡萄糖转化为UDP-4-酮-6-脱氧葡萄糖,C端结构域通过差向异构化和还原将该中间体转化为UDP-鼠李糖。该过程需要两种辅因子(NAD+和NADPH),复杂的辅因子再生系统阻碍了工业应用。为此,通过将RHM截短的UDP-d-葡萄糖4,6-脱水酶催化结构域与拟南芥的UDP-4-酮-6-脱氧-d-葡萄糖3,5-差向异构酶/UDP-4-酮-鼠李糖4-酮还原酶(NRS/ER)结构域直接融合,构建了RHM-NRS融合酶。该嵌合酶利用NADH作为辅因子,并在催化过程中建立NADH再生系统(图3C)。将来自虎眼万年青(OlRHM)、拟南芥(AtRHM)和葡萄(VvRHM)的三种截短RHM分别与拟南芥NRS/ER融合。这些融合构建体随后与两种7-O-葡萄糖基转移酶(CsGT、AtGT)和一种柑橘1,6-鼠李糖基转移酶(Cs1,6-RhaT)在工程菌株E033中组合表达,生成菌株ZY10–ZY15(图3D)。所有工程菌株均表现出合成圣草次苷的能力(图S4),其中菌株ZY15(AtGT-Cs1,6-RhaT-OlRHM-NRS)产量最高,达105.5 mg/L。含AtGT的组合(ZY13–ZY15)优于基于CsGT的组合(ZY10–ZY12),表明多酶模块间存在非线性协同效应。为进一步优化圣草次苷生产,我们筛选了三种植物来源的1,6-RhaT:Ci1,6-RhaT(野菊)、Cm1,6-RhaT(柚)和Cc1,6-RhaT(克莱门柚)。每种1,6-RhaT与AtGT和OlRHM-NRS组装并在工程酿酒酵母中表达,生成菌株ZY16–ZY18。比较分析显示Cc1,6-RhaT催化效率最高。优化菌株ZY18(AtGT-OlRHM-NRS-Cc1,6-RhaT)产生117.5 mg/L圣草次苷,较ZY15提高11.37%(图3E)。
【数据】菌株:E033、ZY10–ZY18;融合酶:OlRHM-NRS、AtRHM-NRS、VvRHM-NRS;最高产量:ZY15(AtGT-Cs1,6-RhaT-OlRHM-NRS)105.5 mg/L;优化菌株:ZY18(AtGT-OlRHM-NRS-Cc1,6-RhaT)117.5 mg/L;提升幅度:11.37%;辅因子:NAD+、NADPH(天然RHM)、NADH(融合酶)
3.3 工程化UDP-葡萄糖供给以优化圣草次苷生物合成
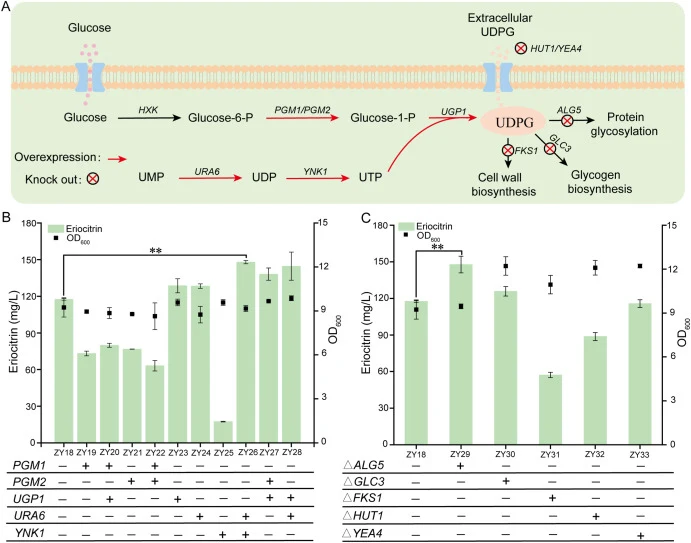
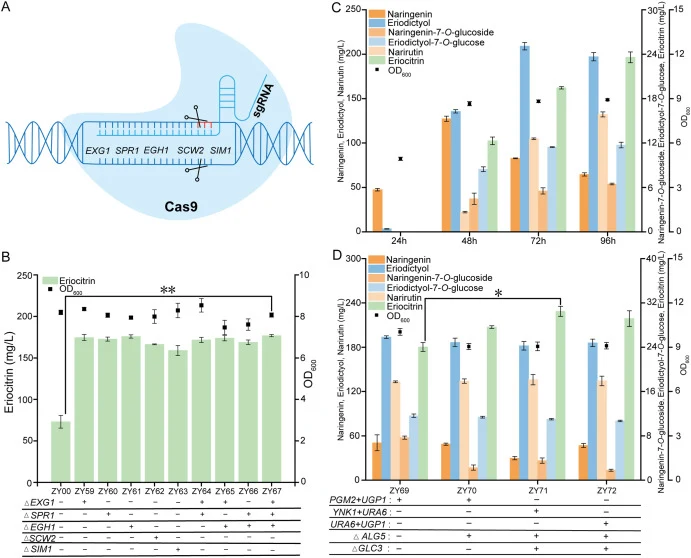
UDP-葡萄糖是圣草次苷生物合成的核心糖基供体,受三个相互关联模块调控:合成、消耗和运输(图4A)。其生物合成整合两个代谢前体:来自核苷酸糖途径的葡萄糖-1-磷酸(G1P)和来自嘧啶代谢的三磷酸尿苷(UTP)。G1P由磷酸葡萄糖变位酶(PGM1和PGM2)从葡萄糖-6-磷酸生成,UTP通过尿苷酸激酶(URA6)和核苷二磷酸激酶(YNK1)催化的连续磷酸化产生。UDP-葡萄糖焦磷酸化酶(UGP1)随后催化G1P和UTP缩合形成UDP-葡萄糖。为增强前体供给,将编码PGM1、PGM2、URA6、YNK1和UGP1的基因在菌株ZY18中过表达,生成工程菌株ZY19–ZY28(图4B)。在单基因过表达菌株中,仅ZY23(过表达UGP1;128.6 mg/L)和ZY24(过表达URA6;128.3 mg/L)产生的圣草次苷多于菌株ZY18(117.5 mg/L)。这些结果表明,UGP1(将G1P转化为UDP-葡萄糖)和URA6(参与UMP向UDP转化)催化的酶步在UDP-葡萄糖生物合成途径中至关重要。这进一步表明UGP1和URA6可能协同或互补作用以增强胞内UDP-葡萄糖池,从而增加流向圣草次苷合成的代谢通量。我们提出以下机制解释——
【数据】菌株:ZY18–ZY28;过表达基因:PGM1、PGM2、URA6、YNK1、UGP1;单基因过表达产量:ZY23(UGP1)128.6 mg/L、ZY24(URA6)128.3 mg/L;对照:ZY18 117.5 mg/L;关键酶:UGP1、URA6
3.4 圣草酚从头生物合成的工程化
(原文节选至此结束,后续结果内容原文未提供。)
讨论与解读
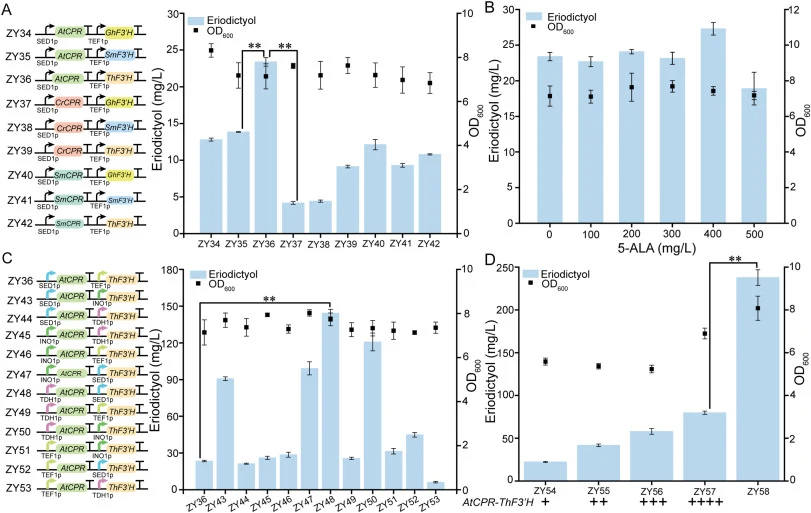
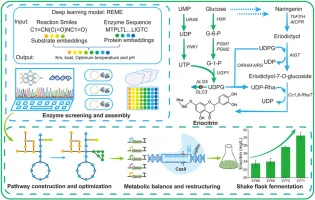
本研究展示了在酿酒酵母中从头生物合成圣草次苷的概念验证。核心策略分三层推进:以深度学习模型(TurNuP等)预测kcat指导UF7GT筛选,从30条候选序列中快速锁定CsGT和AtGT两个高效酶;用RHM-NRS融合酶绕开天然RHM对NAD+/NADPH双辅因子的依赖,建立NADH再生系统,使圣草次苷滴度从105.5 mg/L提升至117.5 mg/L;再通过过表达UGP1和URA6强化UDP-葡萄糖供给,将滴度推至128.6 mg/L。最终将圣草酚生产菌株(237.8 mg/L)与糖基化模块组合,实现从葡萄糖到圣草次苷的从头合成,滴度30.5 mg/L。
编译者解读:该研究的亮点在于把深度学习预测嵌入酶挖掘流程,降低了传统同源筛选的盲目性——但预测kcat与实测活性之间仍存在分层偏差(高预测组未必全部最优),说明模型目前更适合做候选排序而非绝对判据。RHM-NRS融合策略巧妙规避了辅因子再生难题,但NADH再生效率是否在放大后维持稳定,原文未给出数据。从头合成滴度30.5 mg/L与补料条件下的147.9 mg/L差距明显,瓶颈很可能在圣草酚模块与糖基化模块的代谢通量匹配上,这也是后续工程化的重点方向。
参考来源
期刊:Synthetic and Systems Biotechnology, 2026
DOI: 10.1016/j.synbio.2026.01.019
DOI: 10.1016/j.synbio.2026.01.019