来源:Chromosome editing Escherichia coli for efficient production of colanic acid(Food Bioscience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
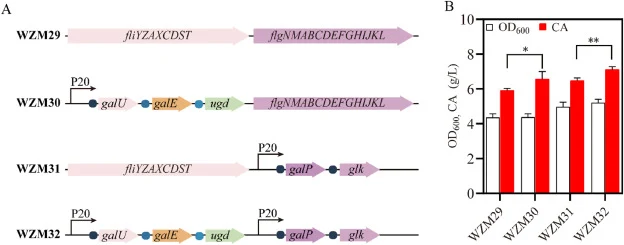
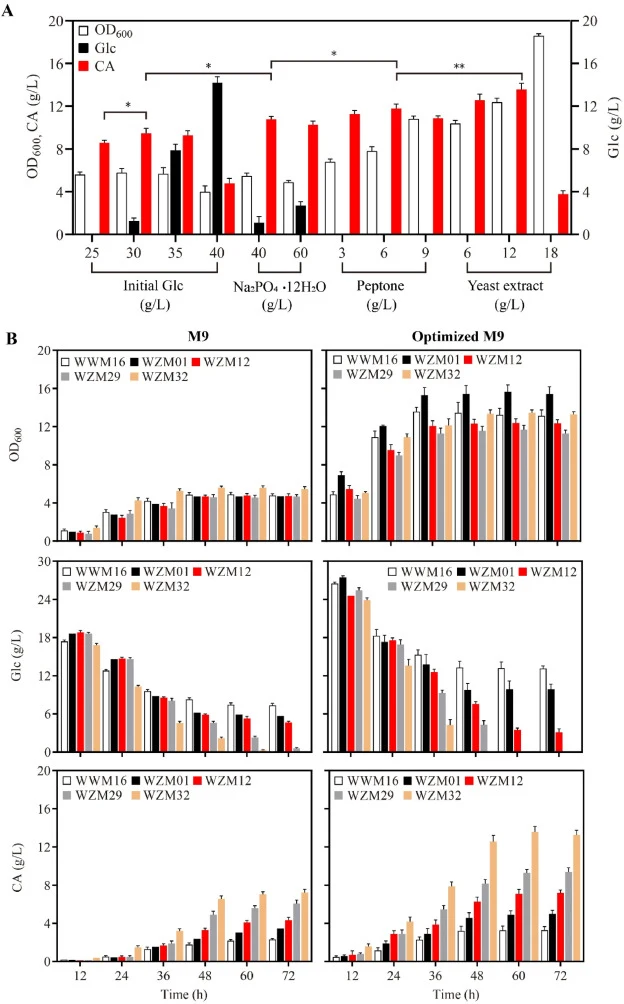
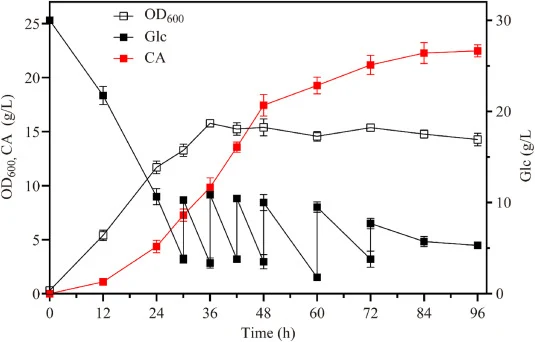
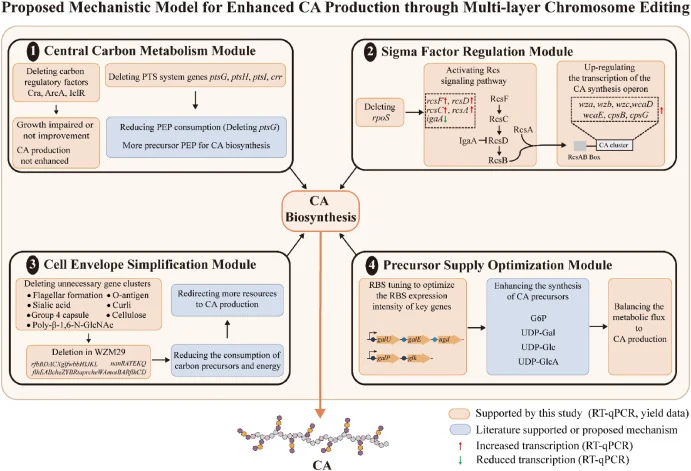
可拉酸(colanic acid, CA)是一种由大肠杆菌等合成的胞外多糖,因其独特的理化性质和生物活性,在生物医药、食品及化妆品领域展现出广阔的应用前景。本研究通过染色体编辑策略,系统评估了中心碳代谢、sigma因子调控以及多种细胞被膜组分生物合成对CA产量的影响,构建了无质粒生产菌株WZM32,在5 L生物反应器中CA产量达22.27 g/L,葡萄糖得率为0.34 g/g。该策略无需添加诱导剂或抗生素,为CA的大规模稳定发酵生产提供了可行方案。
研究背景
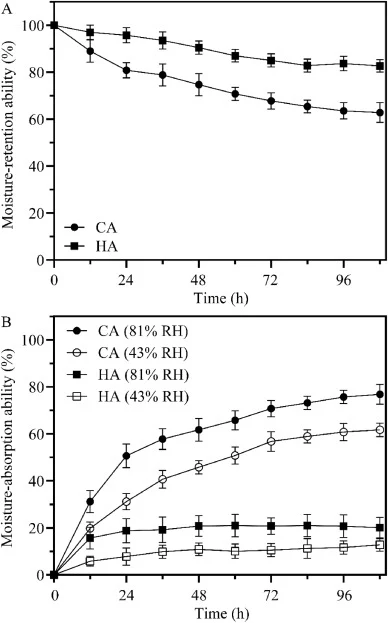
可拉酸是一种由大肠杆菌、肠道沙门氏菌、克雷伯氏菌和肠杆菌属合成的胞外多糖,作为保护性大分子抵御环境胁迫。1963年,Goebel从大肠杆菌K235菌株中分离出一种高分子量胞外多糖,将其命名为可拉酸。通过酸水解和薄层色谱分析,CA的结构得以阐明——它由重复的六糖单元组成,含岩藻糖、半乳糖、葡萄糖醛酸和葡萄糖,摩尔比为2:2:1:1。CA因多孔结构和丰富的表面亲水基团,展现出与透明质酸相当的保湿功效,有望成为高端化妆品的仿生替代品。CA富含L-岩藻糖,具有潜在的抗癌、抗肿瘤和抗炎生物活性。饲喂CA可使秀丽隐杆线虫寿命延长40%。这些发现凸显了CA在生物医药、化妆品等高附加值应用中的巨大潜力。前期研究表明,通过碳通量代谢工程、细胞被膜结构的理性重塑以及Rcs调控系统的操控,可有效提高CA产量。
研究方法
2.1 细菌培养条件
大肠杆菌及突变菌株的染色体编辑、质粒转化和细菌增殖均在Luria Bertani(LB)培养基中进行,培养基含:10 g/L蛋白胨、5 g/L酵母提取物和10.0 g/L NaCl,并根据质粒增殖需要添加50 mg/L卡那霉素、10 mM L-阿拉伯糖、0.5 mM IPTG或50 mg/L壮观霉素。初始发酵过程使用标准发酵培养基,含:20 g/L葡萄糖、17.1 g/L Na₂HPO₄·12H₂O、3 g/L NH₄Cl、4 g/L KH₂PO₄、0.5 g/L NaCl、0.011 g/L CaCl₂和0.24 g/L MgSO₄。培养基优化时对各组分进行单因素变化,包括:(20、25、30、35、40) g/L葡萄糖、(20、40、60) g/L Na₂HPO₄·12H₂O、(3、6、9) g/L蛋白胨、(6、12、18) g/L酵母提取物。补料分批发酵使用优化培养基,含:30 g/L葡萄糖、6 g/L蛋白胨、12 g/L酵母提取物、40 g/L Na₂HPO₄·12H₂O、3 g/L NH₄Cl、4 g/L KH₂PO₄、0.5 g/L NaCl、0.011 g/L CaCl₂和0.24 g/L MgSO₄。
【数据】LB培养基:10 g/L蛋白胨、5 g/L酵母提取物、10.0 g/L NaCl;抗生素:50 mg/L卡那霉素或50 mg/L壮观霉素;诱导剂:10 mM L-阿拉伯糖或0.5 mM IPTG;初始发酵培养基:20 g/L葡萄糖、17.1 g/L Na₂HPO₄·12H₂O、3 g/L NH₄Cl、4 g/L KH₂PO₄、0.5 g/L NaCl、0.011 g/L CaCl₂、0.24 g/L MgSO₄;优化培养基:30 g/L葡萄糖、6 g/L蛋白胨、12 g/L酵母提取物、40 g/L Na₂HPO₄·12H₂O
2.2 大肠杆菌突变体与载体的构建
本研究所用的大肠杆菌和突变菌株、质粒及引物分别列于表S1、表S2和表S3中。所有大肠杆菌菌株的基因缺失或基因敲入均采用CRISPR-Cas9基因组编辑系统。以WWM16中基因ptsG的缺失为例,使用引物对pF-F1-ptsG/pF-R1-ptsG从原始pTargetF扩增线性敲除质粒pF1。线性pF-ptsG在大肠杆菌JM109中环化形成环状pF-ptsG,使用特异性引物F-N20-ptsG和通用验证引物F-text通过菌落PCR确认正确环化的pF-ptsG。随后,使用引物对F1-ptsG/R1-ptsG和F2-ptsG/R2-ptsG分别从WWM16基因组DNA扩增上下游同源臂。使用引物F1-ptsG和R2-ptsG通过重叠延伸PCR融合这些片段以构建同源臂。将同源臂和pF-ptsG通过电穿孔导入WWM16/pCas9电感受态细胞。通过DNA测序确认大肠杆菌突变株WZM01/pCas9/pF-ptsG的成功基因编辑。最后,去除pF-ptsG和pCas9以获得WZM01。基因簇敲除按照上述基因缺失方案进行。例如,在WZM12中缺失poly-β-1,6-N-GlcNAc基因簇时,使用引物对F1-PGA/R1-PGA和F2-PGA/R2-PGA扩增敲除构建所需的同源臂,同时使用引物对pF-F1-PGA/pF-R1-PGA组装pF-PGA敲除质粒。类似地,对于基因galP和glk的敲入,分别使用引物对F1-F II/R3-F II、F1-RBS1-galP/R2-galP、F2-RBS1-glk/R1-glk和F3-F II/R1-F II扩增同源臂片段。使用重叠PCR引物F1-F II和R1-F II将这些片段融合,构建基因galP-glk敲入的供体DNA片段。最后,将融合的DNA片段和pF-F II通过电穿孔导入WZM29/pCas9电感受态细胞。
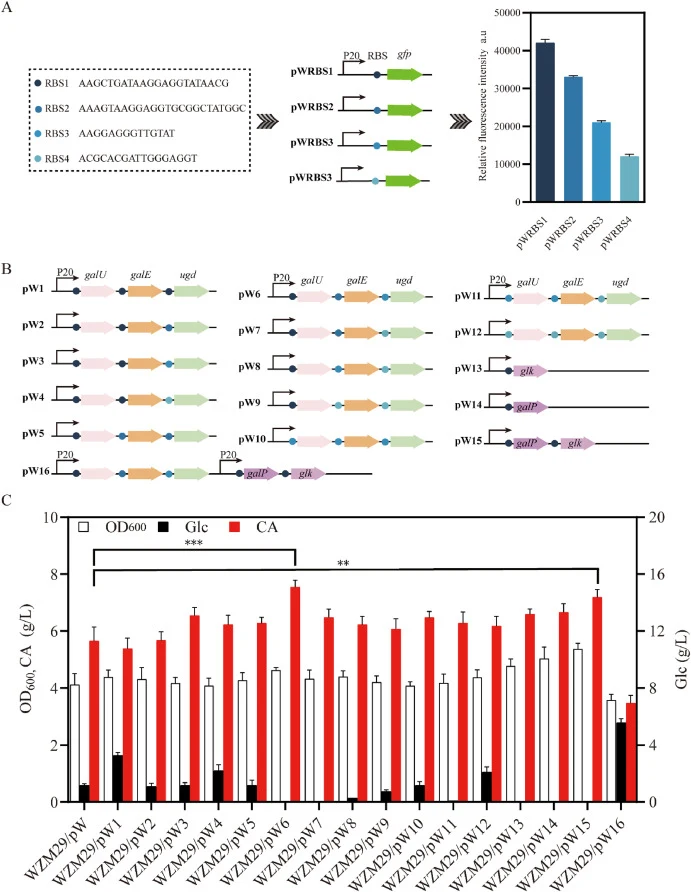
过表达质粒的构建按以下方法进行,以质粒pWRBS1为例。首先,使用引物对F1-RBS1-gfp/R1-gfp扩增基因gfp过表达盒。随后,使用引物F1-pW-gfp和R1-pW-gfp通过质粒pW将亲本质粒线性化。将扩增的gfp片段克隆到线性化载体中,生成最终表达构建体。使用ClonExpress II One Step克隆试剂盒V3(C117, Vazyme, 南京, 中国)将扩增的gfp片段组装到线性化载体中,获得pWRBS1。过表达质粒pW1通过以下步骤构建:使用引物对F1-RBS1-galU/R1-galU、F1-RBS1-galE/R1-galE和F1-RBS1-ugd/R1-ugd分别从WWM16基因组DNA中PCR扩增galU、galE和ugd基因片段。同时,使用pW引物对F-RBS1-galU/R1-ugd从pW中扩增质粒骨架。这些扩增的基因片段随后通过One Step克隆插入线性化载体中,得到最终构建体pW1。将pW1转化到WZM29突变体中过表达目标基因。类似地,文中构建的表达质粒和菌株均按照上述步骤构建。
【数据】培养基:LB;抗生素:50 mg/L卡那霉素、50 mg/L壮观霉素;诱导剂:10 mM L-阿拉伯糖、0.5 mM IPTG;编辑系统:CRISPR-Cas9;克隆试剂盒:ClonExpress II One Step cloning kit V3(C117, Vazyme);电穿孔法导入
2.3 发酵条件与补料分批发酵
从LB琼脂平板上挑取三个重组菌落,分别接种于5 mL LB液体培养基中,在37 °C、200 rpm条件下培养12 h。随后,将1%的预培养物转接到装有30 mL LB液体培养基的250 mL摇瓶中用于种子培养。培养8 h后,将种子培养物以6%的接种量转接到装有50 mL发酵培养基的250 mL摇瓶中。摇瓶在30 °C、250 rpm条件下培养72 h,所有实验样品在72 h时收集。误差棒表示三次独立实验的平均值标准差。CA的补料分批发酵在装有2.5 L发酵培养基的5 L发酵罐中进行。种子培养的活化过程与摇瓶发酵方案完全相同。将150 mL种子培养物接种到发酵培养基中。通过控制系统调节15%(v/v)氨水的添加,将发酵液pH自动维持在6.8 ± 0.2。从发酵过程开始,通过自动控制系统将发酵温度维持在30 °C。通过以0.5 vvm的速率调节搅拌速度,将溶解氧维持在溶解氧饱和度的30%。补料溶液(600 g/L葡萄糖)用于维持葡萄糖水平在10 g/L以上。平行进行两组实验。
【数据】种子培养:37°C、200 rpm、12 h;摇瓶发酵:30°C、250 rpm、72 h、接种量6%;5 L发酵罐:装液量2.5 L、种子接种量150 mL、pH 6.8 ± 0.2(15% v/v氨水调控)、温度30°C、溶解氧30%(0.5 vvm)、补料600 g/L葡萄糖、维持葡萄糖>10 g/L
2.4 CA的定量测定
将1 mL发酵液在沸水浴中热处理20 min,以确保CA完全溶解。冷却至25 °C后,样品在13 400g离心90 min收集上清液。取500 μL上清液与5 mL无水乙醇混合,在4 °C孵育8 h,通过乙醇沉淀法沉淀CA。随后在13,400g离心10 min收集沉淀,干燥。将干燥样品重悬于500 μL蒸馏水中,与500 μL三氟乙酸(4 M)混合,在100 °C酸水解4 h,将CA完全水解为单糖。水解液真空干燥后用500 μL蒸馏水复溶,用于岩藻糖检测。岩藻糖测定在Aminex HPX-87H色谱柱(300 mm × 7.8 mm; Bio-Rad Laboratories, Hercules, CA)上进行,柱温40 °C。以50 mM H₂SO₄为流动相,流速0.5 mL/min。使用不同浓度的岩藻糖溶液建立标准曲线,根据测得的岩藻糖浓度计算CA产量。统计显著性通过Student's t检验确定,P < 0.05视为显著。统计分析使用Origin 2019进行。差异在P < 0.05()、P < 0.01()和P < 0.001()水平上显著。
【数据】热处理:沸水浴20 min;离心:13 400g、90 min(首次)、13,400g、10 min(二次);乙醇沉淀:500 μL上清+5 mL无水乙醇、4°C、8 h;酸水解:500 μL三氟乙酸(4 M)、100°C、4 h;色谱柱:Aminex HPX-87H(300 mm × 7.8 mm);柱温:40°C;流动相:50 mM H₂SO₄;流速:0.5 mL/min;统计方法:Student's t-test,P < 0.05显著
2.5 CA的吸湿与保湿能力
CA的纯化和分子量分析按照先前报道的方法进行。采用改良方案评估样品的保湿和吸湿性能。样品首先在冻干机中预干燥72 h以确保均匀干燥。保湿性:将0.5 g CA用水10%水合后置于含有……(原文此处截断)
【数据】预干燥:冻干机、72 h;保湿性样品:0.5 g CA、10%水合;原文未详述后续条件
研究结果
3.1 中心碳代谢对大肠杆菌WWM16中CA产量的影响
在大肠杆菌中,PTS是主要的葡萄糖摄取途径,葡萄糖转运过程中需要消耗大量PEP(图1A)。为研究PTS对CA生物合成的影响,在WWM16中分别缺失了ptsG、ptsH、ptsI、crr基因,获得突变株WZM01、WZM02、WZM03和WZM04。此外,还构建了双缺失突变株WZM05(缺失ptsG和ptsI)。如图1B所示,与亲本菌株WWM16相比,WZM01、WZM02和WZM04的生长没有显著受损,而WZM03表现出生长抑制。WZM01的CA产量(3.27 g/L)相对于WWM16(2.26 g/L)提高了45.45%,表明缺失ptsG基因可有效提高CA产量。WZM02和WZM04的CA产量分别为2.27 g/L和2.02 g/L,表明缺失ptsH或crr基因并未显著增强CA生物合成。缺失ptsI基因表现出适度的产量提升(2.71 g/L)。有趣的是,在WZM01背景中连续缺失ptsI基因未能实现CA产量的协同增强(2.98 g/L)。为进一步增强PEP积累,尝试靶向敲除草酰乙酸生物合成途径中的ppc基因。然而,WZM06菌株表现出严重的生长受损和CA生物合成的显著抑制。这一现象可能是由于草酰乙酸回补途径被破坏,进而影响了氨基酸生物合成。碳调控因子Cra、ArcA和IclR在大肠杆菌糖代谢相关基因的转录调控中起关键作用。先前研究表明,减少乙酸积累可促进CA生物合成,而缺失iclR基因可减少乙酸形成且不影响细胞生长。因此,在WWM16中缺失iclR基因生成WZM07菌株,其生长与亲本菌株相当,但CA产量未显著增加,为2.57 g/L。为进一步评估iclR基因缺失的效果,在WZM01和WZM03菌株中缺失了该基因。WZM10和WZM11的CA产量分别为2.98 g/L和2.69 g/L,表明在这些条件下缺失iclR基因对CA生物合成的进一步改善贡献甚微。相反,缺失全局调控因子ArcA(WZM08)或Cra(WZM09)严重损害了细胞生长,几乎完全消除了CA生产。尽管有报道称缺失arcA基因可减少乙酸形成、增加生物量产量并增强呼吸通量,缺失cra基因可增加葡萄糖消耗,但这些全局调控因子在协调碳代谢中起核心作用,其缺失可能引起广泛的扰动,限制了CA生物合成所需前体和能量的可用性。这些结果证实,选择性缺失ptsG基因能特异性增强CA产量。
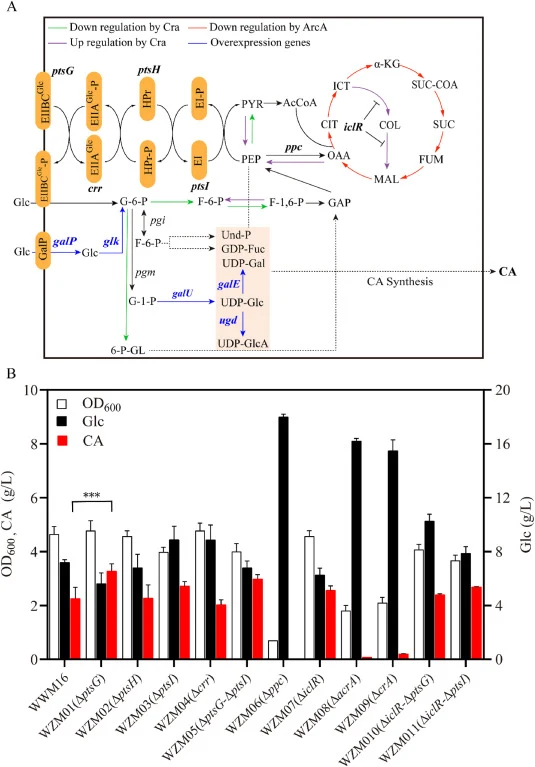
【数据】菌株:WWM16、WZM01、WZM02、WZM03、WZM04、WZM05、WZM06、WZM07、WZM08、WZM09、WZM10、WZM11;CA产量:WWM16 2.26 g/L、WZM01 3.27 g/L(提高45.45%)、WZM02 2.27 g/L、WZM04 2.02 g/L、WZM03生长抑制、WZM05 2.98 g/L、WZM07 2.57 g/L、WZM10 2.98 g/L、WZM11 2.69 g/L;WZM06严重生长受损;WZM08/WZM09几乎消除CA生产
3.2 Sigma因子对大肠杆菌WZM01中CA产量的影响
本研究中考察的四种sigma因子的功能总结于图2A。为评估它们对CA生物合成的贡献,在WZM01背景中分别缺失了每种sigma因子。在所得突变株中,WZM12的生长没有显著变化(图2B),而CA产量4.2 g/L表现出显著增加,比WZM01提高了31%。WZM12中残余葡萄糖浓度降低至4.8 g/L。这一改善可能归因于rpoS基因的缺失,据报道该基因缺失可解除对Rcs磷酸 relay系统的抑制,从而促进CA生物合成操纵子的转录。对Rcs磷酸 relay系统基因(rcsA、rcsB、rcsC、rcsD、rcsF和igaA)的RT-qPCR分析显示,与WZM01相比,WZM12中rcsA和rcsD基因的转录水平显著升高,而rcsC和rcsF基因适度增加,rcsB基因保持不变(图2C)。值得注意的是,Rcs磷酸 relay系统的负调控因子igaA的转录显著降低。同时,参与CA生物合成的多个关键基因,包括wza、wzb、wzc、wcaD、wcaE、cpsB和cpsG,在WZM12中显著上调。这些转录变化可能部分解释了WZM12增强的CA生产能力。在WZM01中缺失rpoN基因生成WZM13,其表现出生长受损,可能是由于氮吸收和同化减少,因为培养基中以无机氮为氮源。然而,CA产量基本未受影响,为3.48 g/L。在WZM02中进一步缺失rpoN基因生成WZM16,其表现出类似的生长缺陷,CA产量为3.85 g/L,表明破坏rpoN不是增强CA生物合成的有效策略。值得注意的是,WZM14表现出葡萄糖消耗增加,但CA产量没有相应改善。此外,WZM15在CA产量或生长方面与WZM01相比均无显著变化。在WZM12背景中进一步缺失rpoN或fliA基因未增加CA产量,表明这些sigma因子不限制CA生物合成。总体而言,这些发现表明缺失rpoS基因促进CA合成,而缺失其他sigma因子不显著影响CA生产效率。
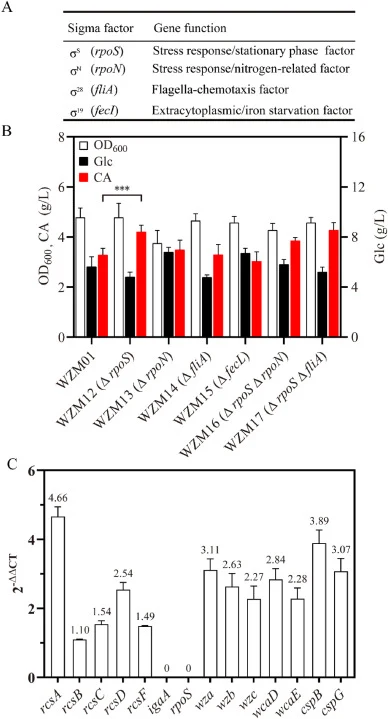
【数据】菌株:WZM01、WZM12、WZM13、WZM14、WZM15、WZM16;CA产量:WZM12 4.2 g/L(比WZM01提高31%)、WZM13 3.48 g/L、WZM16 3.85 g/L;WZM12残余葡萄糖:4.8 g/L;RT-qPCR:rcsA和rcsD显著升高,rcsB不变,igaA显著降低,wza/wzb/wzc/wcaD/wcaE/cpsB/cpsG显著上调
3.3 不同大分子生物合成对大肠杆菌WZM12中CA产量的影响
大肠杆菌具有多种非必需外膜结构,其生物合成基因簇如图3A所示。靶向缺失这些基因簇可节省细胞资源,并可能将碳通量重新导向产物形成。为研究外膜结构对CA生物合成的影响,通过靶向缺失单个结构组分对WZM12进行了系统改造。初步缺失poly-β-1,6-N-GlcNAc合成途径的WZM18中CA产量无显著变化(图3B)。值得注意的是,WZM19维持了正常生长,但CA产量下降了18.7%。缺失nanRATEKQ基因簇的WZM20中CA产量适度增加至4.71 g/L,与WZM12相比差异无统计学显著性,表明唾液酸生物合成对CA积累的贡献有限。在WZM12中缺失纤维素基因簇导致生长抑制,CA产量降低至2.82 g/L。缺失OA生物合成基因簇使WZM23的CA产量提高至4.94 g/L(p < 0.05),与先前报道一致。随后,依次缺失了四个鞭毛基因簇和curli生物合成基因簇。该策略生成了缺失csgCABDEFG基因簇的WZM22、缺失flgNMABCDEFGHIJKL基因簇的WZM24、缺失fliYZAXCDST基因簇的WZM25、缺失flhEABcheZYBRtaprcheWAmotBARflhCD基因簇的WZM26以及缺失fliEFGHIJKLMNOPQR基因簇的WZM27。WZM22、WZM24、WZM25和WZM27的CA产量与相应对照菌株相比保持不变,而WZM26表现出CA产量增加的趋势,为4.63 g/L。WZM26中观察到的CA产量增加可能部分归因于cheY的缺失。由于据报道CheY负调控Ugd活性,其去除可解除这种抑制,增强UDP-葡萄糖醛酸用于CA生物合成的可用性。随后,鞭毛基因簇flhEABcheZYBR-taprcheWAmotBARflhCD和rfbBDACX……(原文此处截断)
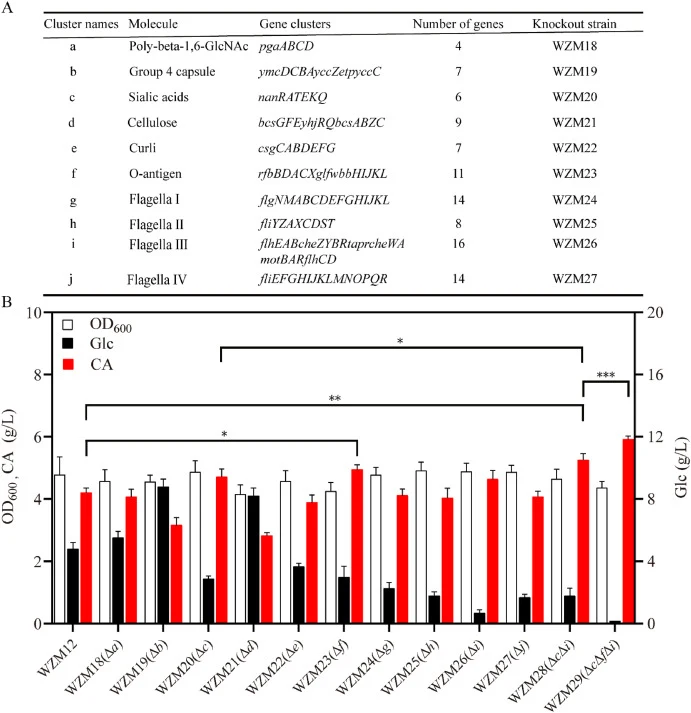
【数据】菌株:WZM12、WZM18、WZM19、WZM20、WZM22、WZM23、WZM24、WZM25、WZM26、WZM27;CA产量:WZM19下降18.7%、WZM20 4.71 g/L(不显著)、WZM23 4.94 g/L(p < 0.05)、WZM26 4.63 g/L(增加趋势)、WZM22/WZM24/WZM25/WZM27无变化;纤维素基因簇缺失:CA降至2.82 g/L
3.4 通过积累关键前体UDP-GlcA、GDP-Fuc和UDP-Gal提高CA产量
(原文该节内容未提供,无法翻译)
3.5 染色体插入基因簇构建无质粒CA生产菌株
(原文该节内容未提供,无法翻译)
3.6 培养基优化及工程菌株发酵性能比较
(原文该节内容未提供,无法翻译)
3.7 5 L生物反应器补料分批发酵
(原文该节内容未提供,无法翻译)
3.8 CA的保湿与吸湿能力
(原文该节内容未提供,无法翻译)
讨论与解读
先前研究已证明,通过多种工程策略可增强CA产量,包括修饰脂多糖结构、激活Rcs调控系统、优化核苷酸糖前体供应和过程工程(表1)。早期工作主要集中在细胞被膜重塑。例如,缺失waaF基因或通过缺失waa(L–Q)基因簇截断LPS核心可改善CA积累,但大多数情况下产量仍然相对较低。后续研究揭示,通过过表达rcsA、rcsD或rcsF激活Rcs系统,以及去除lon和hns等负调控因子,可大幅增强CA生物合成。近年来,前体供应途径、胞外多糖分泌系统和CA聚合过程的组合工程进一步提高了CA产量,报道的CA滴度高达49.9 g/L。与先前报道的研究相比,本研究采用的策略探索了CA生物合成的多个额外方面。本研究不仅关注Rcs系统的激活或前体供应的增强,还系统评估了中心碳代谢、sigma因子调控和多种非必需细胞被膜结构对CA生物合成的影响。缺失ptsG基因通过减少PTS系统的PEP消耗来重定向碳通量,而缺失rpoS基因……(原文此处截断)
编译者解读
本研究的方法学价值在于将染色体编辑与多维度代谢调控整合——从碳代谢入口(ptsG)、全局调控(rpoS)到细胞被膜非必需结构的系统删除,最终实现无质粒、无诱导剂、无抗生素的稳定生产。22.27 g/L的产量和0.34 g/g的葡萄糖得率在同类研究中处于中上水平。局限在于:染色体整合的拷贝数和表达强度调控空间有限,未来若结合可诱导的染色体级联调控或动态通路控制,有望进一步突破产量瓶颈。
参考来源
期刊:Food Bioscience, 2026
DOI: 10.1016/j.fbio.2026.109879
DOI: 10.1016/j.fbio.2026.109879