来源:Directed evolution of heme biosynthetic enzymes enabled by a growth-coupled heme biosensor in Corynebacterium glutamicum(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
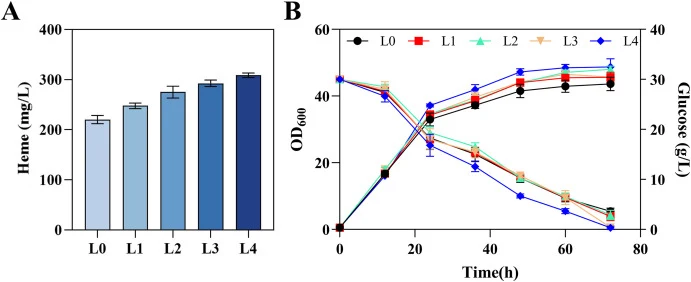
血红素是参与多种细胞过程的重要辅因子,也是微生物合成的重要目标产物。然而,多酶协同的路径调控和缺乏可规模化的酶级筛选手段,使微生物血红素高产工程仍面临瓶颈。本研究在谷氨酸棒杆菌中构建了基于天然ChrSA双组分系统的血红素响应生物传感器,将胞内血红素水平直接转化为四环素抗性生长表型,并以此对粪卟啉依赖(CPD)途径四个关键酶进行随机突变文库筛选。经染色体等位替换验证,血红素产量提升约38.9%,最终滴度达308.7 mg/L。
研究背景
血红素是一种铁-卟啉辅因子,广泛分布于古菌、细菌和真核生物中。它由四吡咯卟啉环与中心二价铁离子配位形成六配位复合物。作为四吡咯家族的关键成员,血红素参与信号转导、氧运输和电子传递等多种生物学过程。它是血红蛋白、肌红蛋白和细胞色素等蛋白质的必需辅基,支撑氧运输和细胞呼吸,同时也是多种代谢反应酶的催化中心。除生理功能外,血红素在制药和食品工业中也有应用,例如作为卟啉症的治疗药物、人造肉的组分以及精细化学品合成的前体。这些多样的生物学功能推动了微生物高效生产血红素的研究兴趣。
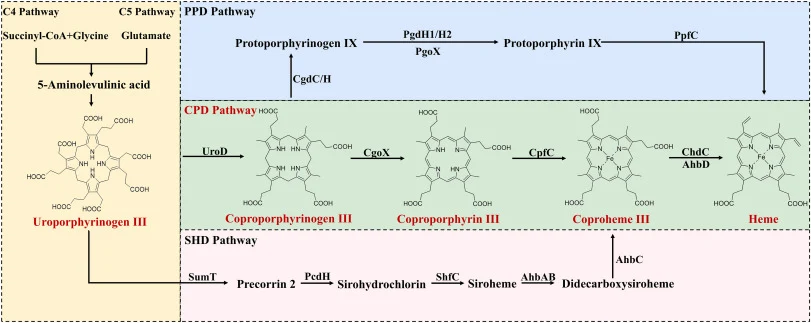
在微生物中,血红素生物合成是一条高度保守的多步代谢途径,以5-氨基乙酰丙酸(5-ALA)为通用前体。5-ALA通过两条途径合成:C4途径存在于真核生物和部分细菌中,以琥珀酰辅酶A和甘氨酸为前体;C5途径中谷氨酸在大多数细菌和古菌中转化为5-ALA。随后,5-ALA被转化为尿卟啉原III(UPG III),这是途径的中心分支点中间体。
研究方法
2.1 培养基与培养条件
大肠杆菌在Luria-Bertani(LB)培养基中培养用于分子克隆。液体LB培养基由10 g/L胰蛋白胨、5 g/L酵母提取物和10 g/L NaCl组成,固体LB培养基通过添加20 g/L琼脂制备。谷氨酸棒杆菌在脑心浸液(BHI)培养基中培养用于菌株构建和预培养。发酵在CGIII培养基中进行,该培养基含胰蛋白胨(10 g/L)、酵母提取物(10 g/L)、MOPS缓冲液(21 g/L)和NaCl(2.5 g/L),pH调节至7.0。葡萄糖以50%(w/v)储备液在接种时供应,甘氨酸和七水硫酸亚铁分别在接种后8 h和12 h添加。培养基中卡那霉素添加量为大肠杆菌40 mg/L、谷氨酸棒杆菌25 mg/L,氯霉素添加量为大肠杆菌10 mg/L、谷氨酸棒杆菌5 mg/L。
血红素生产的摇瓶发酵按以下步骤进行。菌株保存于−80 °C,使用前划线接种于BHI琼脂平板,随后在30 °C培养。挑取单菌落接种至试管中5 mL BHI液体培养基,在30 °C、220 rpm条件下培养24 h。随后,将1 mL种子培养液转入含50 mL CGIII培养基(补充10 g/L葡萄糖作为初始碳源)的500 mL摇瓶中,在相同温度和振荡条件下培养。12 h后,将培养物转入含50 mL CGIII培养基(含20 g/L葡萄糖)的新鲜500 mL摇瓶中,初始细胞密度调整为OD600 0.5。整个培养过程中,卡那霉素维持25 mg/L以确保质粒稳定性。
【数据】培养基:LB(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl)、BHI、CGIII(10 g/L胰蛋白胨、10 g/L酵母提取物、21 g/L MOPS、2.5 g/L NaCl);pH:7.0;葡萄糖:50%(w/v)储备液,初始10 g/L,转接后20 g/L;甘氨酸和七水硫酸亚铁:接种后8 h和12 h添加;卡那霉素:大肠杆菌40 mg/L、谷氨酸棒杆菌25 mg/L;氯霉素:大肠杆菌10 mg/L、谷氨酸棒杆菌5 mg/L;培养温度:30 °C;摇床转速:220 rpm;种子培养时间:24 h;转接后OD600:0.5
2.2 质粒与菌株构建
本研究所用菌株和质粒列于表S1和S2,所用引物列于表S3。所有引物由GENEWIZ合成。质粒pEC-XK99E用作生物传感器构建的骨架,基因表达由组成型启动子Ptuf驱动。质粒pCDF-hrtR-tcR和谷氨酸棒杆菌基因组用作PCR扩增模板。Ptuf、Cgl2010-Cgl2009、PhrtBA和tcR对应的DNA片段使用特异性引物扩增,并通过重叠PCR组装。所得融合片段通过环状聚合酶延伸克隆(CPEC)或无缝克隆(ABclonal)组装入pEC载体,得到质粒pEC-ΔlacIq-Ptuf-ChrS-ChrA。
为精细调控ChrS和ChrA的表达水平,采用了组合核糖体结合位点(RBS)工程策略。从先前表征的RBS文库中选取三个具有确定翻译起始强度(高、中、低)的合成RBS,组合放置于chrS和chrA上游,产生九种不同的RBS组合。所有基因对均由强组成型启动子Ptuf驱动。RBS和启动子序列列于表S4,RBS元件在引物设计时引入引物中。目标基因片段通过PCR扩增并通过重叠PCR组装。组装片段以pEC-ΔlacIq-Ptuf-ChrS-ChrA为模板,通过环状聚合酶延伸克隆(CPEC)或无缝克隆试剂盒插入PCR扩增并纯化的质粒骨架中,得到质粒pEC-ΔlacIq-Ptuf-H-H、pEC-ΔlacIq-Ptuf-H-M、pEC-ΔlacIq-Ptuf-H-L、pEC-ΔlacIq-Ptuf-M-H、pEC-ΔlacIq-Ptuf-M-M、pEC-ΔlacIq-Ptuf-M-L、pEC-ΔlacIq-Ptuf-L-H、pEC-ΔlacIq-Ptuf-L-M和pEC-ΔlacIq-Ptuf-L-L。
随后进行启动子工程以进一步优化生物传感器性能。以pEC-ΔlacIq-Ptuf-H-H为模板,通过PCR扩增和2 × MultiF Seamless Assembly Mix无缝组装引入替代启动子变体,得到质粒pEC-ΔlacIq-P69-H-H、pEC-ΔlacIq-P69-H-M、pEC-ΔlacIq-Ptrc-H-H和pEC-ΔlacIq-Ptrc-H-M。质粒构建所用引物序列列于表S3。
【数据】质粒骨架:pEC-XK99E;启动子:Ptuf(组成型强启动子)、P69、Ptrc;RBS强度:高(H)、中(M)、低(L);RBS组合数:9种;模板质粒:pCDF-hrtR-tcR;组装方法:重叠PCR、CPEC、无缝克隆(ABclonal)、2 × MultiF Seamless Assembly Mix;引物合成:GENEWIZ
2.3 CPD血红素生物合成途径关键酶突变体文库构建
使用QuickMutation™基因随机突变试剂盒进行随机突变PCR。质粒pEC-ΔlacIq-Ptuf-HChrS-HChrA和pX-CPD用作PCR扩增模板。基因hemE、hemY、hemH和hemQ在突变条件下使用QuickMutation™试剂盒扩增,而pEC载体骨架使用Phanta SE DNA聚合酶扩增。突变基因片段经纯化后通过环状聚合酶延伸克隆(CPEC)或无缝克隆(ABclonal)与pEC载体组装,得到质粒pEC-ΔlacIq-Ptuf-HChrS-HChrA-hemE、pEC-ΔlacIq-Ptuf-HChrS-HChrA-hemY、pEC-ΔlacIq-Ptuf-HChrS-HChrA-hemH和pEC-ΔlacIq-Ptuf-HChrS-HChrA-hemQ。针对四个目标基因共构建了四个独立的突变体文库。重组质粒经测序验证(GENEWIZ)后转化入谷氨酸棒杆菌A23。
【数据】突变试剂盒:QuickMutation™ Gene Random Mutagenesis Kit;扩增酶:Phanta SE DNA聚合酶(载体骨架);目标基因:hemE、hemY、hemH、hemQ;突变体文库数:4个;组装方法:CPEC、无缝克隆(ABclonal);验证方法:测序(GENEWIZ);受体菌株:谷氨酸棒杆菌A23
2.4 基于生长偶联选择的CPD途径酶突变体文库筛选
hemE、hemY、hemH和hemQ突变体文库使用基于四环素抗性的生长偶联选择策略进行筛选。转化子涂布于补充30 μg/mL四环素的固体琼脂培养基上,在30 °C培养48-72 h。在此条件下,突变体的差异生长反映了胞内血红素水平的差异。培养后,在菌落出现的早期阶段,从每个突变体文库中选取96个形态正常的隔离菌落用于后续筛选。
【数据】四环素浓度:30 μg/mL;培养基:固体琼脂;温度:30 °C;时间:48-72 h;每个文库选取菌落数:96个
2.5 分析方法
细胞生物量通过紫外-可见分光光度计(Shimadzu,京都,日本)测量600 nm光密度(OD600)确定。血红素生物传感器激活所需的四环素浓度及相应的血红素响应范围通过平板计数确定。细胞培养物用无菌ddH2O稀释,调整至OD600 1.0,进行十倍系列稀释(10−1至10−6)用于菌落计数。胞内血红素提取时,取1 mL发酵液在4 °C、12,000 rpm离心5 min,弃上清。细胞沉淀重悬于1 mL酸性丙酮缓冲液(99%丙酮与1.6 M HCl按95:5,v/v混合)中,涡旋约30 s,在相同条件下再次离心。所得提取物中的含铁卟啉衍生物使用先前描述的荧光法进行定量[28]。血红素含量进一步通过HPLC分析按照先前建立的方法[29]验证,使用反相C18柱,紫外检测波长400 nm。
【数据】OD测量波长:600 nm;离心条件:12,000 rpm、5 min、4 °C;提取液:酸性丙酮缓冲液(99%丙酮与1.6 M HCl按95:5,v/v);涡旋时间:约30 s;稀释梯度:10−1至10−6;HPLC柱:反相C18;UV检测波长:400 nm
2.6 结构建模、分子对接与分子动力学模拟
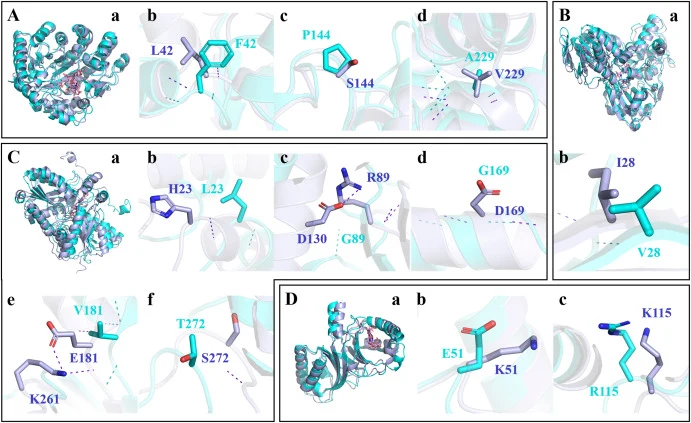
HemE、HemY、HemH和HemQ的三维结构使用AlphaFold3[30]以默认参数预测。随后使用CDOCKER模块进行各酶与其对应底物之间的分子对接。对接构象基于以下标准选择:满足酶与底物之间的空间距离约束、相对较高的CDOCKER[31]评分以及无显著空间冲突。使用PyMOL可视化并分析野生型酶-底物复合物的结合构象,包括底物定位和突变位点在整体结构中的空间分布。为评估突变对酶结构和酶-底物相互作用模式的潜在影响,以野生型酶-底物复合物为模板进行同源建模构建突变体结构模型,底物从模板转移至相应突变体模型。对八个对接衍生的复合物进行了分子动力学模拟。
【数据】结构预测工具:AlphaFold3(默认参数);对接工具:CDOCKER模块;可视化工具:PyMOL;同源建模模板:野生型酶-底物复合物;分子动力学模拟复合物数:8个
研究结果
3.1 基于ChrSA的血红素响应生物传感器的开发与功能表征
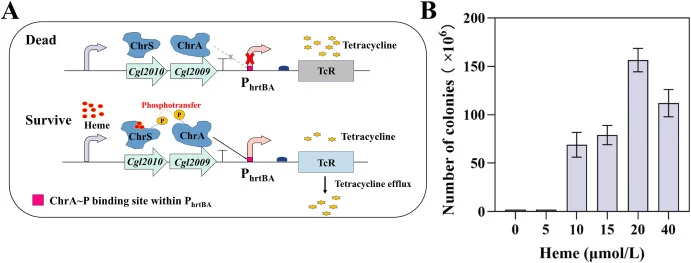
为实现血红素生物合成的表型筛选,在谷氨酸棒杆菌中基于ChrSA双组分系统构建了生长偶联型血红素生物传感器。由于卟啉的强光吸收限制了基于荧光的读数,因此采用四环素依赖的生长表型作为选择输出。在该设计中,胞内血红素水平被转化为在含四环素培养基上的差异生长(图2A)。该生物传感器表现出血红素依赖的生长响应,能够区分不同血红素生产能力的菌株。将传感器质粒pEC-ΔlacIq-Ptuf-ChrS-ChrA引入谷氨酸棒杆菌A23,获得菌株C1。该菌株随后用于通过评估不同四环素浓度下的生长行为来确定严格的筛选条件。在四环素浓度为10 μg/mL时,无血红素存在下未观察到生长,而在较低抗生素浓度下出现残余生长。该浓度被选为筛选阈值。在此条件下,生物传感器表现出清晰的血红素依赖生长响应(图2B)。血红素浓度低于10 μM时未检测到菌落,而菌落数在10至20 μM之间显著增加。血红素浓度进一步增加导致菌落形成显著下降,这可能反映了当传感器激活阈值达到后,额外的血红素不再增强四环素外排蛋白表达,而过量血红素对细胞生长产生抑制作用。与基于转录因子的血红素传感器通过转录或荧光输出间接反映胞内血红素水平[18,19]不同,ChrSA系统在血红素感知与细胞存活之间建立了直接的表型偶联。在该设计中,胞内血红素水平被转化为四环素依赖的生长,使基于平板的直接选择成为可能。因此,ChrSA-tcR系统作为生长偶联型血红素响应生物传感器发挥作用。然而,相对较低的激活阈值(约10 μM)限制了传感器在高血红素浓度范围内分辨差异的能力,表明需要进一步提高激活阈值以实现更宽的动态分辨。
【数据】筛选阈值四环素浓度:10 μg/mL;血红素检测下限:<10 μM无 colony;菌落数增加范围:10-20 μM;传感器激活阈值:约10 μM;菌株:C1(谷氨酸棒杆菌A23 + pEC-ΔlacIq-Ptuf-ChrS-ChrA)
3.2 通过RBS和启动子工程优化血红素生物传感器响应范围
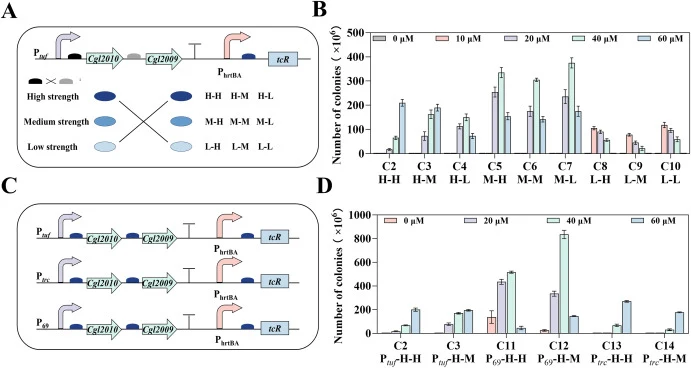
为调整血红素生物传感器的响应范围,应用RBS和启动子工程调控传感组件ChrS和ChrA的表达。通过在Ptuf启动子控制下组合配对具有高(H)、中(M)、低(L)翻译强度的RBS[32],构建了九种ChrS-ChrA表达配置(图3A),并引入谷氨酸棒杆菌A23,获得传感器菌株C2–C10。不同的RBS组合导致显著不同的血红素依赖生长谱。传感器菌株C2(H-H)和C3(H-M)在20-60 μM血红素浓度范围内表现出持续的剂量依赖性菌落形成增加,在此范围内未观察到明显饱和,最大菌落数在60 μM时达到约1.9 × 10⁸。相比之下,传感器菌株C4(H-L)和C5–C7(M-H、M-M和M-L)显示钟形响应,菌落数在约40 μM血红素时达到峰值,随后在更高浓度下下降。传感器菌株C8–C10(L-H、L-M和L-L)在10 μM血红素时达到最大生长,在升高血红素浓度下被强烈抑制,峰值菌落数约为1.0 × 10⁸,比高强度RBS变体低近两倍(图3B)。这些结果表明,RBS介导的ChrS和ChrA表达调控将生物传感器激活阈值从10 μM移至≥20 μM血红素,并将有效响应窗口扩展至高达60 μM的浓度,从而选择HChrS-HChrA和HChrS-MChrA RBS组合用于后续实验。
考察替代启动子对生物传感器性能的影响。以Ptuf驱动的传感器菌株C2(Ptuf-H-H)和C3(Ptuf-H-M)为参照,将Ptuf替换为P69或Ptrc,生成传感器菌株C11–C14(图3C)。传感器菌株C11(P69-H-H)和C12(P69-H-M)表现出强背景激活,即使在无血红素存在下,含四环素平板上也出现大量菌落形成。菌落数在40 μM血红素时达到峰值约8 × 10⁸,并在更高浓度下下降,表明血红素依赖生长控制丧失。相比之下,Ptrc驱动的菌株C13(Ptrc-H-H)和C14(Ptrc-H-M)仅在高血红素浓度(40-60 μM)下显示生长激活,反映激活阈值过度升高(图3D)。相比之下,Ptuf驱动的菌株C2(Ptuf-H-H)在20-60 μM范围内表现出明确的血红素依赖生长响应,具有有效的背景抑制和兼容的激活阈值,因此被选为最终生物传感器菌株用于后续平板筛选。优化后的ChrSA生物传感器表现出扩展的有效响应范围20-60 μM血红素,使在相对高胞内血红素水平下基于生长的分辨成为可能。这一观察表明,除了其天然调控作用外,先前表征的ChrSA模块可通过优化信号架构适应生长偶联筛选应用。在本研究中,调节ChrS和ChrA的表达水平改善了系统的响应特性并拓宽了其有效传感范围,从而提高了其对筛选增强血红素生物合成菌株的适用性。
为定量评估生物传感器性能,对对照生物传感器C1和优化生物传感器C2在血红素浓度梯度下进行了剂量-响应分析。剂量-响应曲线使用四参数逻辑模型拟合,确定关键参数包括EC50、Hill系数和动态范围(图S1)。与初始传感器配置相比,优化生物传感器动态范围从6.59倍增至12.27倍,EC50从13.36 μM移至38.28 μM,Hill系数从5.635降至3.887。这些变化表明优化生物传感器在血红素浓度间产生更大的信号差异,响应向更高血红素水平移动,并显示更渐进的响应过渡,从而改善了在高血红素条件下对胞内血红素水平的分辨。相比之下,Hanna等[33]报道了一种基因编码比率型血红素传感器,血红素结合常数约为3-10 nM,能够检测约20-40 nM的胞质游离血红素水平。而本研究开发的优化ChrSA生物传感器支持在20-60 μM血红素范围内进行稳定的基于生长的选择。本研究实现的扩展响应范围使在高血红素条件下进行稳定的生长偶联选择成为可能,使该系统特别适用于筛选增强血红素生产的菌株。
【数据】RBS组合数:9种;C2/C3最大菌落数:约1.9 × 108(60 μM);C4-C7峰值:约40 μM;C8-C10最大生长:10 μM,峰值菌落数约1.0 × 10⁸;C11/C12峰值菌落数:约8 × 108(40 μM);C13/C14激活范围:40-60 μM;优化传感器动态范围:6.59倍→12.27倍;EC50:13.36 μM→38.28 μM;Hill系数:5.635→3.887;有效响应范围:20-60 μM
3.3 使用基于ChrSA的生长偶联血红素生物传感器鉴定功能改善的血红素生物合成酶变体
CPD途径包含紧密偶联的酶促步骤,因此单个酶的改善可能仅转移瓶颈而非增加整体通量。为解决这一限制,对四个关键CPD途径酶(HemE、HemY、HemH和HemQ)应用定向进化,以基于ChrSA的生长偶联血红素生物传感器作为选择平台。对每个酶,独立质粒……
讨论与解读
本研究在谷氨酸棒杆菌中基于天然ChrSA血红素响应系统开发了生长偶联筛选策略。该策略使胞内血红素积累转化为可选择生长表型,从而允许对CPD途径酶变体进行基于选择的筛选。利用该方法,鉴定了多个CPD途径酶的改善变体,并在染色体等位替换后验证,确认其改善的途径性能在天然单拷贝调控下得以保留。该工作还揭示了CPD途径酶中先前未被充分认识的功能性有益非催化突变,表明酶稳定性和构象调节可能有助于血红素生物合成。通过将胞内血红素水平与四环素依赖生长偶联并调节ChrS和ChrA表达水平,本研究进一步提高了ChrSA模块在高血红素条件下用于生长偶联途径筛选的适用性。总体而言,这些发现扩展了基于ChrSA的血红素传感应用,并为发现和验证酶变体以改善微生物血红素生产提供了实用的系统级框架。
编译者解读:该研究的核心亮点在于将天然双组分系统改造成生长偶联选择开关,用四环素抗性替代荧光报告,巧妙规避了卟啉自发荧光的干扰。通过RBS和启动子组合调参,把传感器有效量程从10 μM推至20-60 μM,匹配了高产菌株的胞内血红素水平。不过,筛选仍依赖平板菌落形态,通量有限;且38.9%的产量提升来自四个酶变体叠加,单酶贡献度未拆解。若后续将传感器与液滴微流控或自动化挑菌结合,有望进一步释放定向进化的通量潜力。
参考来源
期刊:Synthetic and Systems Biotechnology, 2026
DOI: 10.1016/j.synbio.2026.04.040
DOI: 10.1016/j.synbio.2026.04.040