来源:Enhancing myrcene biosynthesis in yeast through nuclear compartmentalization(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
月桂烯是一种高价值单萜,广泛应用于香料、风味和农业领域,但微生物高效生产仍受限于途径竞争和代谢通量不足。本研究将酿酒酵母细胞核改造为合成代谢区室,通过筛选高活性月桂烯合酶、将完整甲羟戊酸(MVA)途径定位于细胞核,并优化限速步骤,最终在摇瓶发酵中实现23.4 mg L⁻¹的月桂烯产量。该工作验证了利用酵母细胞核作为代谢工程平台的可行性。
研究背景
单萜是一类结构多样的天然产物。其中月桂烯作为高价值单萜,广泛用于香料香精工业,并可作为生物燃料和精细化学品的前体。传统月桂烯生产依赖植物提取或化学合成,面临效率低、成本高和可持续性问题。微生物细胞工厂已成为有价值产物可持续生物合成的有前景的替代方案。虽然月桂烯生物合成途径已在酿酒酵母和大肠杆菌中成功建立,但产量尚未满足工业应用需求。在大肠杆菌中,月桂烯产量已提升至510.38 mg L⁻¹,但大肠杆菌存在生物安全问题且缺乏真核区室。相比之下,酿酒酵母是公认安全(GRAS)的生物,具有清晰的遗传背景、成熟的代谢工程工具箱和有组织的区室结构,更适合植物来源月桂烯的生产。在酿酒酵母中,月桂烯由月桂烯合酶以香叶基二磷酸(GPP)为直接前体合成,GPP经甲羟戊酸(MVA)途径由乙酰辅酶A衍生而来。
研究方法
4.1 菌株、质粒和试剂
本研究中所有密码子优化基因、定位序列、质粒和菌株列于补充表1、补充表2、补充表3和补充表4。Phanta® Max超保真DNA聚合酶、Rapid Taq Master Mix和DNA凝胶纯化试剂盒购自南京诺唯赞生物科技股份有限公司。RNA分离试剂盒和质粒提取试剂盒由北京擎科生物科技股份有限公司支持。月桂烯和十二烷购自Sigma-Aldrich贸易有限公司(美国)。DAPI染色液购自MedChemExpress有限公司(美国)。Gibson组装反应混合物按先前描述的方法自行配制。
【数据】试剂来源:诺唯赞、擎科、Sigma-Aldrich、MedChemExpress;Gibson组装:按文献[33]自行配制;原文未详述具体用量
4.2 遗传操作
以酿酒酵母菌株CEN.PK2–1C为起始菌株。本研究所用全部引物列于补充表5。启动子、终止子和同源侧翼区域以CEN.PK2–1C基因组DNA为模板。向导RNA(gRNA)质粒按先前报道的方法构建。2 μm衍生质粒pJFE3用于高水平基因表达。DNA片段和线性化质粒骨架通过Gibson组装方法连接。基因片段组装通过融合PCR进行。密码子优化基因由生工生物工程(上海)股份有限公司提供。
【数据】起始菌株:CEN.PK2–1C;表达质粒:pJFE3(2 μm衍生);组装方法:Gibson组装、融合PCR;基因来源:生工生物;原文未详述具体用量
4.3 酵母转化
酵母转化采用高效Liac/SS载体DNA/PEG方法。简言之,将1-2 μg修复片段和gRNA质粒共转化入酵母细胞,随后涂布于不含尿嘧啶的合成完全培养基(SC-Ura)和/或不含色氨酸的合成完全培养基(SC-Trp)。经平板筛选和PCR验证后,正确阳性克隆随后涂布于5-氟乳清酸(5-FOA)培养基以去除gRNA质粒。携带目标基因或其区室化定位变体的表达质粒以相同方式构建和处理。
【数据】转化方法:Liac/SS载体DNA/PEG法;DNA用量:1-2 μg修复片段;筛选培养基:SC-Ura、SC-Trp;去除gRNA:5-FOA培养基
4.4 培养条件
DH5α在37 °C下使用Luria–Bertani培养基(5 g L⁻¹酵母提取物、10 g L⁻¹胰蛋白胨、10 g L⁻¹ NaCl、100 μg mL⁻¹氨苄青霉素)培养。酵母在30 °C下使用YPD培养基(10 g L⁻¹酵母提取物、20 g L⁻¹蛋白胨、20 g L⁻¹葡萄糖)培养。摇瓶培养转速常规设定为220 rpm。对于摇瓶发酵,将酵母单菌落接种至1 mL YPD培养基中过夜培养。随后将预培养物转接至含20 mL YPG培养基的100 mL摇瓶中,初始OD600为0.2,覆盖20%(v/v)十二烷,培养96 h。为评估月桂烯毒性,将浓度为0、0.01、0.1、1或10 g L⁻¹的月桂烯加入20 mL YPD培养基中。将过夜培养物接种至相应溶液体系中,初始OD600为0.2,培养72 h。在3天时间内于设定时间点通过测量OD600监测细胞生长。
【数据】DH5α培养:37°C,LB培养基(5 g L⁻¹酵母提取物、10 g L⁻¹胰蛋白胨、10 g L⁻¹ NaCl、100 μg mL⁻¹氨苄青霉素);酵母培养:30°C,YPD培养基(10 g L⁻¹酵母提取物、20 g L⁻¹蛋白胨、20 g L⁻¹葡萄糖);转速:220 rpm;摇瓶发酵:20 mL YPG,初始OD600 0.2,20%(v/v)十二烷,96 h;毒性实验:月桂烯0、0.01、0.1、1、10 g L⁻¹,初始OD600 0.2,72 h
4.5 荧光共聚焦和Western blot分析
将培养12–24 h的酵母细胞离心收集,用PBS洗涤三次,用4%多聚甲醛固定3 min。再用PBS洗涤三次后,用1 μg mL⁻¹ DAPI染色3 min,离心,用磷酸盐缓冲液(PBS)洗涤两次。随后将细胞重悬于PBS中,取4 μL悬液置于载玻片上,盖上盖玻片,使用共聚焦荧光显微镜(A1R,Nikon,日本)成像。eGFP激发波长为488 nm,mCherry为561 nm,DAPI和CFP为405 nm。图像采集和处理使用NIS-Elements软件。为评估目标蛋白表达水平,将带flag标签的质粒导入CEN.PK2–1C菌株,在SC-Ura中培养24–36 h。制备细胞裂解液,经10% SDS-PAGE凝胶分离后转移至硝酸纤维素印迹膜(货号10600002,Amersham)。使用Flag标签单克隆抗体(货号A8592,稀释比1:5000,Sigma-Aldrich或货号66008-4-Ig,稀释比1:5000,Proteintech)和GAPDH单克隆抗体(货号ab181602,稀释比1:5000,Abcam或货号60004-1-Ig,稀释比1:5000,Proteintech)进行检测。蛋白条带使用增强化学发光(ECL)试剂盒(货号34580;Thermo Fisher Scientific)显色,并用化学发光检测系统(Tanon 5200 Multi)捕获。
【数据】培养时间:12–24 h;固定:4%多聚甲醛,3 min;DAPI浓度:1 μg mL⁻¹,3 min;激发波长:eGFP 488 nm、mCherry 561 nm、DAPI/CFP 405 nm;Western blot:10% SDS-PAGE,抗体稀释比1:5000,培养24–36 h
4.6 分析方法
发酵液在4000 rpm离心10 min。取100 μL十二烷覆盖层与900 μL乙酸乙酯混合,分析前用乙酸乙酯进一步稀释10倍。气相色谱-质谱检测在HP-5MS毛细管柱(30 m × 0.25 mm × 0.25 μm;Agilent Technologies,美国)上进行,使用Agilent GC–MS系统(8890 GC与7000D MS联用,美国)。柱温初始在60 °C保持5 min,以10 °C min⁻¹升至80 °C,再以1 °C min⁻¹升至90 °C,最后以30 °C min⁻¹升至240 °C,随后在300 °C最终保持5 min。进样口温度设为250 °C,分流比2:1。氦气作为载气,恒定流速1.0 mL min⁻¹。质谱仪在电子轰击(EI)模式下运行,70 eV,数据以单离子监测(SIM)模式采集。数据分析使用MassHunter Workstation软件(Agilent Technologies,美国)处理。胞内GPP提取按先前描述的方法进行。酵母细胞中GPP的定量使用Waters ACQUITY UPLC I-Class Plus系统联用Triple Quad 6500+质谱仪(LC–MS/MS)进行。色谱分离在InfinityLab Poroshell 120 EC-C18柱(100 × 4.6 mm,2.7 μm;Agilent,美国)上实现,流速0.3 mL min⁻¹。流动相由含0.1%氢氧化铵(v/v)的10 mM碳酸铵作为溶剂A和含0.1%氢氧化铵的乙腈/甲醇(75:25,v/v)作为溶剂B组成。梯度洗脱条件按先前报道应用。质谱参数优化如下:帘气35 psi;碰撞气中等;离子喷雾电压−4500 V;源温度550 °C;离子源气1和2均为55 psi。定量在多反应监测(MRM)模式下使用离子对m/z 313 → 78.9进行,去簇电压−40 V,碰撞能量−40 V。数据采集和分析使用OS-Q软件(AB Sciex,美国)进行。
【数据】离心:4000 rpm,10 min;萃取:100 μL十二烷+900 μL乙酸乙酯,稀释10倍;GC柱:HP-5MS(30 m × 0.25 mm × 0.25 μm);柱温程序:60°C 5 min → 80°C(10°C min⁻¹)→ 90°C(1°C min⁻¹)→ 240°C(30°C min⁻¹)→ 300°C 5 min;进样口:250°C,分流比2:1;载气:氦气1.0 mL min⁻¹;EI:70 eV;LC流速:0.3 mL min⁻¹;MRM:m/z 313 → 78.9,去簇电压−40 V,碰撞能量−40 V;源温度:550°C;离子喷雾电压:−4500 V
研究结果
2.1 月桂烯合酶筛选及其在酵母中的异源表达
单萜通常对酿酒酵母具有毒性,两相萃取发酵常用于减轻其毒性。因此,我们首先在十二烷存在下评估了月桂烯的毒性,十二烷通常用于单萜生产中的原位萃取。当加入十二烷时,在测试的月桂烯浓度(0至10 g L⁻¹)下,未观察到野生型菌株CEN.PK2–1C的显著生长抑制(补充图2)。在酿酒酵母中重建适合大规模发酵的高价值化合物生物合成途径,需要鉴定具有最佳催化性能的酶。为构建高效的月桂烯生物合成途径,对来自不同来源的多种月桂烯合酶(MyrSs)进行了系统发育树分析,分为五个组(图2A和B)。基于在大肠杆菌中的成功异源表达、产物特异性(补充图3)和天然宿主生物中月桂烯丰度,选择来自冬青栎的QiMyrS、来自啤酒花的HlMyrS、来自金鱼草的SdMyrS和来自欧洲云杉的PaMyrS在酿酒酵母中表达。每种MyrS在去除预测的N端质体靶向肽(SignalP 4.1)后,使用来自酿酒酵母的高拷贝质粒在强半乳糖诱导型启动子SkGAL2p控制下,在野生型菌株CEN.PK2–1C中表达。然而,未观察到可检测的月桂烯产量(图2C),可能是由于胞内GPP可用性不足。
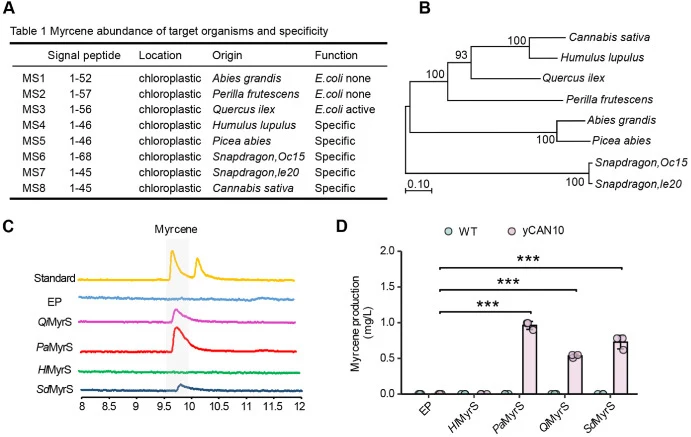
为解决这一限制,随后将MyrSs在yCAN10菌株中表达,该菌株通过天然双向GAL1/10启动子驱动MVA途径基因过表达而积累升高的GPP水平。这些基因包括ERG19p、ERG8p、ERG12p、IDI1p、mERG20p,以及来自粪肠球菌的EfMvaE和EfMvaS,后者异源表达以执行相应酶步骤的相同功能,高效催化乙酰辅酶A转化为甲羟戊酸并减少反馈抑制。除HlMyrS外,所有测试的MyrSs均表现出可检测活性,其中PaMyrS的月桂烯产量最高(图2C和D),在24 h达到1.0 mg L⁻¹。因此选择PaMyrS用于后续研究。延长发酵时间进一步将月桂烯滴度提高至96 h的3.8 mg L⁻¹(补充图4A),与先前报道水平相当,且细胞生长在72 h保持稳定(补充图4B)。然而,尽管yCAN10中胞质MVA途径过表达,月桂烯产量仍相对较低,表明存在额外的途径瓶颈。
【数据】月桂烯毒性:0–10 g L⁻¹无显著生长抑制;筛选菌株:CEN.PK2–1C、yCAN10;PaMyrS产量:24 h 1.0 mg L⁻¹,96 h 3.8 mg L⁻¹;细胞生长稳定:72 h
2.2 开发酵母细胞核作为月桂烯生物合成平台
细胞核区室为代谢工程提供了独特优势,包括通过酶和中间体的局部富集增加途径通量,以及减少内源途径对中间体的竞争。为高效生产月桂烯,我们采用亚细胞工程利用细胞核作为平台,并以过氧化物酶体作为阳性对照(图3A)。为将月桂烯合酶定位至细胞核,将SV40序列(一种核定位信号NLS)融合至PaMyrS的C端。相比之下,带有C端过氧化物酶体靶向信号(SKL)的PaMyrS用于过氧化物酶体定位(图3A)。为验证定位,将红色荧光蛋白(mCherry)融合至PaMyrS的N端。DAPI染色用作细胞核阳性对照。与天然过氧化物酶体蛋白(PEX8p)融合的青色荧光蛋白(CFP)用作过氧化物酶体定位的阳性对照。荧光显微镜分析显示,带mCherry的PaMyrS红色荧光与DAPI染色的蓝色荧光重叠,证明NLS标签酶高效靶向细胞核。类似地,红色荧光也与CFP的蓝色荧光重叠,显示正确的过氧化物酶体定位(图3B)。
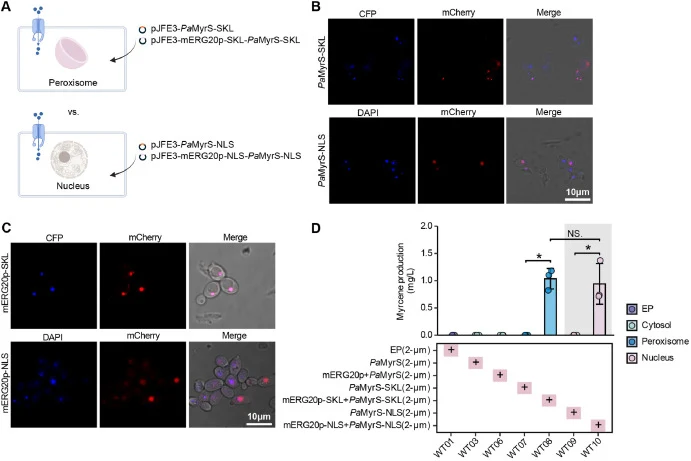
尽管定位正确,但通过高拷贝质粒单独表达PaMyrS的菌株中未观察到可检测的月桂烯产量,无论是定位至细胞核(WT09)还是过氧化物酶体(WT07),与胞质(WT03)相似(图3B)。该结果提示所有测试区室中直接前体香叶基二磷酸(GPP)的可用性不足。为增强GPP供应,在GAL1启动子下共表达mERG20p,荧光显微镜分析确认了正确的细胞核和过氧化物酶体定位(图3C)。核定位mERG20p和PaMyrS共表达(WT10)使月桂烯产量达到0.9 mg L⁻¹,与过氧化物酶体靶向所得相当(WT08,1.0 mg L⁻¹),而胞质共表达(WT06)未能产生可检测的月桂烯(图3D)。这些结果表明,带NLS或SKL融合的PaMyrS和mERG20p在细胞核和过氧化物酶体中活性表达,前体IPP和DMAPP可被转运至细胞核用于GPP形成和月桂烯生物合成。此外,与空质粒表达的对照菌株WT01相比,核内月桂烯生产不影响细胞生长,过氧化物酶体表达亦然(补充图5),证明利用酵母细胞核作为月桂烯生物合成有效区室的可行性。
【数据】菌株:WT03(胞质)、WT06(胞质共表达)、WT07(过氧化物酶体PaMyrS)、WT08(过氧化物酶体共表达)、WT09(核PaMyrS)、WT10(核共表达);月桂烯产量:WT10 0.9 mg L⁻¹,WT08 1.0 mg L⁻¹,WT06未检出;定位信号:NLS(SV40)、SKL;荧光标记:mCherry、CFP-PEX8p、DAPI
2.3 在细胞核中重建MVA途径提高月桂烯产量
为将核内乙酰辅酶A导向GPP合成,通过基因组整合在GAL1/10启动子控制下将全部途径酶整合至细胞核,重建完整的甲羟戊酸(MVA)途径。其中,EfMvaE和EfMvaS被过表达以增强乙酰辅酶A向甲羟戊酸的转化,因其与天然酶(ERG10p、ERG13p和Hmg1/2p)相比具有高效率和降低的反馈抑制。所有酶在细胞核中的定位通过荧光显微镜分析确认(图4A)。生长曲线表明,引入完整单萜生物合成途径的核工程不影响菌株适应性(补充图6)。只有携带完整重建核MVA途径的菌株表现出月桂烯产量的显著增加,菌株NLS0301产量为12.6 mg L⁻¹(图4B)。过氧化物酶体MVA途径菌株SKL0101获得了相当的滴度(11.8 mg L⁻¹),表明引入的MVA途径可将区室化乙酰辅酶A转化为单萜。
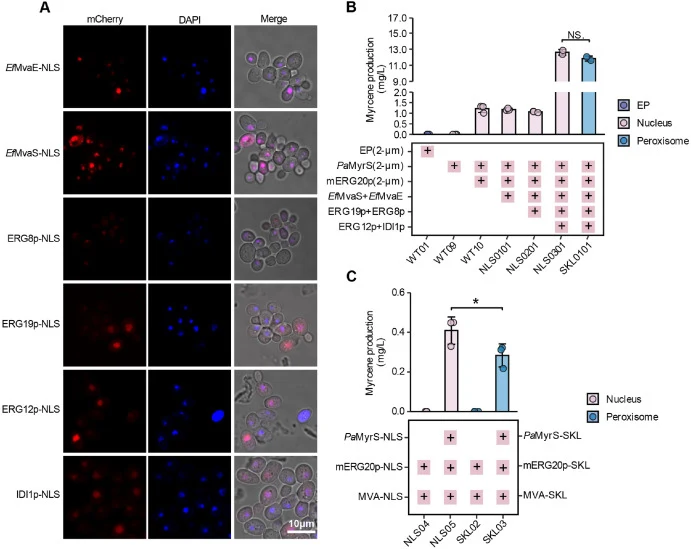
由于PaMyrS和mERG20p最初从质粒表达,途径稳健性可能因质粒不稳定性而受损。为克服该问题,随后将两个基因整合至酵母基因组。在携带完整核或过氧化物酶体MVA途径的菌株中,单独表达mERG20p未产生可检测的月桂烯,而PaMyrS和mERG20p共表达使月桂烯合成成为可能。核内月桂烯产量比过氧化物酶体产量高61%(图4C)。这些结果表明,月桂烯生物合成的限速步骤随途径表达水平动态变化。在低水平PaMyrS表达条件下,区室依赖性酶效率起主导作用;而在高表达条件下,前体可用性特别是GPP供应成为主要瓶颈。
【数据】菌株:NLS0301(核MVA途径)12.6 mg L⁻¹,SKL0101(过氧化物酶体MVA途径)11.8 mg L⁻¹;核vs过氧化物酶体:核产量提高61%;整合基因:PaMyrS、mERG20p;生长:不受影响
2.4 工程化细胞核中单萜合成途径的限速步骤
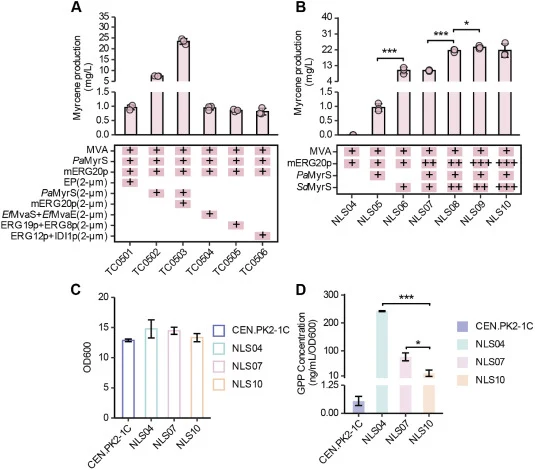
为鉴定核月桂烯合成途径中的限速步骤,我们使用高拷贝质粒补偿NLS05中染色体编码酶的表达。过表达PaMyrS导致月桂烯产量相比对照增加7.8倍。
【数据】菌株:NLS05;过表达PaMyrS:月桂烯产量增加7.8倍;原文未详述具体产量数值
讨论与解读
酿酒酵母细胞核与其他胞内细胞器类似,提供空间受限环境,有利于酶共定位、局部底物富集和与竞争性旁路途径的隔离。本研究通过重建完整MVA途径并引入异源月桂烯合酶,将酵母细胞核改造为月桂烯生物合成的合成区室。该策略实现了23.4 mg L⁻¹的月桂烯滴度,证明了核代谢工程的可行性,并建立了一个潜在可推广的MVA衍生化合物生产平台。细胞核还含有支持组蛋白和蛋白乙酰化的乙酰辅酶A池,进一步凸显其作为乙酰辅酶A衍生代谢物生物合成底盘的生产潜力。我们承认核内乙酰辅酶A可用性可能成为进一步提高代谢通量的限制因素。先前研究表明,通过过表达天然乙酰辅酶A合酶或引入异源乙酰辅酶A生物合成途径增加胞质乙酰辅酶A供应,可显著提高目标化合物产量。因此,我们提出类似策略可在细胞核中实施,如引入乙酰辅酶A合成途径,以进一步增强前体供应并支持更高通量。
编译者解读:该研究将细胞核作为代谢区室,巧妙利用其与胞质途径的物理隔离来减少中间体竞争。选择核而非过氧化物酶体,可能因核内乙酰辅酶A池更接近MVA途径起点。23.4 mg L⁻¹的产量虽较胞质表达显著提升,但距工业需求仍有差距。限速步骤的动态变化提示,区室化工程需与途径酶表达水平协同优化,而非简单定位即可。核内乙酰辅酶A供应瓶颈的解决将是下一步关键。
参考来源
期刊:Synthetic and Systems Biotechnology, 2027
DOI: 10.1016/j.synbio.2026.05.018
DOI: 10.1016/j.synbio.2026.05.018