来源:AdERF14 forms a self-activating loop to promote ethylene biosynthesis in kiwifruit(Postharvest Biology and Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
猕猴桃是重要的商业水果作物,成熟过程中释放大量乙烯,直接影响采后贮藏寿命和果实品质。本研究以‘海沃德’猕猴桃为材料,结合转录组测序、双荧光素酶报告实验和凝胶迁移实验,鉴定出一个在自然成熟过程中强烈上调的转录因子AdERF14。研究发现AdERF14作为转录激活因子,直接结合并激活乙烯合成关键基因AdACS1的启动子,同时还能激活自身启动子形成自调控反馈环路,从而促进乙烯生物合成。
研究背景
果实是维生素、矿物质和膳食纤维的重要来源。果实成熟涉及一系列复杂的生理生化变化,最终决定色泽、香气、质地、营养价值和风味等关键品质属性。然而,过熟会导致风味丧失和腐烂,造成商品价值下降和采后损失。因此,解析果实成熟的调控机制对于维持果实品质和减少采后损失至关重要。
果实成熟受多种植物激素的复杂互作调控,包括乙烯、脱落酸、生长素、赤霉素、水杨酸和油菜素甾醇。但在跃变型果实中,乙烯被广泛认为是成熟的主要激素调控因子。乙烯通过Yang循环生物合成,其中1-氨基环丙烷-1-羧酸合成酶(ACS)和ACC氧化酶(ACO)催化核心步骤。ERF转录因子作为乙烯信号通路的下游介导因子,参与调控果实成熟过程中淀粉代谢、果胶代谢、叶绿素代谢、萜类生物合成和花青素生物合成等多种生理过程。猕猴桃基因组中已鉴定出236个ERF家族成员,但其中多数成员在成熟过程中的功能和下游靶基因尚不清楚。
研究方法
2.1 植物材料
猕猴桃(Actinidia deliciosa cv. Hayward)于2017年采自中国陕西的商业果园,采收时总可溶性固形物(TSS)达到约6.3%,符合‘海沃德’猕猴桃6.2%的商业采收标准(Hopkirk et al., 1986; Burdon et al., 2016),表明果实处于商业成熟起始阶段。选取大小均匀、无明显机械损伤的果实,随机分为三组(每组约200个果实):未处理组(CK)用于自然采后成熟,乙烯处理组(ETH,100 μL L⁻¹),以及1-甲基环丙烯处理组(1-MCP,1 μL L⁻¹)。乙烯和1-MCP处理分别用于促进和抑制果实成熟。所有处理均在20 L密闭容器中、20 °C条件下进行24 h。随后,果实置于20 °C环境空气中贮藏。在每个采样点,从每个处理组收集三个生物学重复(每个重复4个果实)。乙烯产量、TSS和硬度按照Zhang et al.(2018)此前建立的方法测定。外果皮切成小块后用液氮快速冷冻,保存于−80 °C用于后续实验。
【数据】品种:Actinidia deliciosa cv. Hayward;采收年份:2017年;采收TSS:约6.3%;商业采收标准:6.2%;处理组:CK、ETH(100 μL L⁻¹)、1-MCP(1 μL L⁻¹);处理容器:20 L密闭容器;处理温度:20 °C;处理时间:24 h;贮藏温度:20 °C;每组果实数:约200个;生物学重复:3个(每重复4个果实);冻存温度:−80 °C
2.2 总RNA、基因组DNA提取与RNA测序
总RNA和基因组DNA采用CTAB法提取,方法如我们此前研究所述(Wu et al., 2020; Wang et al., 2022a)。果实RNA测序(RNA-seq)实验使用CK组采后0、10和14天(DAH)的样品,每个时间点三个独立生物学重复。愈伤组织RNA-seq实验分析野生型(WT)愈伤组织和两个独立的AdERF14过表达愈伤组织系(Line 1和Line 4),每组三个独立生物学重复。RNA-seq按照我们此前研究所述方法进行(Wang et al., 2022c; Fu et al., 2023)。测序后,原始双端读长使用Trim Galore v0.6.7进行接头去除和质量修剪。所得clean reads使用HISAT2 v2.0.4(Kim et al., 2019)比对到 A. chinensis ‘Red5’参考基因组(Pilkington et al., 2018)。转录本组装和基因表达定量使用StringTie v1.3.4d(Pertea et al., 2015),基因表达水平以FPKM(每百万比对读长的每千碱基转录本片段数)表示。差异表达分析使用DESeq2 v1.6.3(Love et al., 2014)。差异表达基因(DEGs)的鉴定阈值为错误发现率(FDR)< 0.05且绝对倍数变化≥ 2。
【数据】RNA提取方法:CTAB法;果实RNA-seq时间点:0、10、14 DAH;愈伤组织RNA-seq样品:WT、Line 1、Line 4;生物学重复:3个;接头去除工具:Trim Galore v0.6.7;比对工具:HISAT2 v2.0.4;参考基因组:A. chinensis ‘Red5’;表达定量工具:StringTie v1.3.4d;表达单位:FPKM;差异分析工具:DESeq2 v1.6.3;DEG阈值:FDR < 0.05,|fold change| ≥ 2
2.3 cDNA合成与RT-qPCR
猕猴桃cDNA使用HiScript III RT SuperMix for qPCR(Vazyme,南京,中国)从1 μg总RNA合成,按照制造商说明操作。合成的cDNA稀释10倍后作为模板。RT-qPCR在LightCycler 480仪器(Roche,巴塞尔,瑞士)上使用ChamQ SYBR qPCR Master Mix(Vazyme,南京,中国)进行。AdERF14和AdACS1的特异性引物(表S1)使用Primer3.0(https://bioinfo.ut.ee/primer3-0.4.0/primer3/)设计。猕猴桃Actin基因(GenBank号EF063572)作为内参基因(Ferradás et al., 2016)。进行熔解曲线分析和产物测序以确认所有引物对的特异性。每个数据点进行三个独立生物学重复,相对表达水平使用2‑ΔCT方法计算(Schmittgen and Livak, 2008; Zalewski and Bogucka-Kocka, 2025)。
【数据】总RNA用量:1 μg;cDNA合成试剂盒:HiScript III RT SuperMix for qPCR;cDNA稀释倍数:10倍;RT-qPCR仪器:LightCycler 480;qPCR试剂:ChamQ SYBR qPCR Master Mix;引物设计工具:Primer3.0;内参基因:Actin(EF063572);生物学重复:3个;计算方法:2‑ΔCT
2.4 基因与启动子克隆
AdERF14的编码序列(CDS)和AdACS1(Acc05955)、Acc17617、Acc28118和Acc08918的启动子序列从猕猴桃参考基因组(Pilkington et al., 2018)获取。AdERF14 CDS从cDNA扩增,启动子序列从‘Hayward’基因组DNA扩增。所有上述引物使用在线引物设计工具(https://crm.vazyme.com/cetool/en-us/simple.html)设计,引物序列列于表S2。
【数据】模板来源:AdERF14 CDS来自cDNA,启动子来自基因组DNA;引物设计工具:Vazyme在线引物设计工具;引物序列:表S2
2.5 系统发育树构建
AdERF14的编码序列从猕猴桃中克隆,使用TBtools-II(Chen et al., 2023)翻译为氨基酸序列。根据此前研究(Nakano et al., 2006; Pirrello et al., 2012; Liu et al., 2016),从TAIR数据库(https://www.arabidopsis.org/)和Sol Genomics Network(SGN)(https://solgenomics.net/)获取八个拟南芥ERF序列(AtERF109-AtERF116)和九个番茄ERF序列(SlERF.D1-SlERF.D9)。使用MUSCLE v5.1(Edgar, 2004)进行多序列比对,trimAl(Capella-Gutiérrez et al., 2009)使用默认参数去除比对不良区域。18个ERF蛋白的最大似然系统发育树使用IQ-TREE(Nguyen et al., 2015)构建,参数如下:-m MFP -bb 1000 -bnni -st AA。所得树使用MEGA11(Tamura et al., 2021)可视化。
【数据】序列来源:8个拟南芥ERF(AtERF109-AtERF116),9个番茄ERF(SlERF.D1-SlERF.D9);比对工具:MUSCLE v5.1;修剪工具:trimAl(默认参数);建树工具:IQ-TREE;参数:-m MFP -bb 1000 -bnni -st AA;可视化工具:MEGA11;蛋白总数:18个
2.6 亚细胞定位分析
为构建融合表达载体,将不含终止密码子的AdERF14 CDS克隆到pCAMBIA2300-eGFP载体中。相应引物列于表S2。含有融合构建体的载体转化到根癌农杆菌EHA105菌株中,细菌悬浮液(OD600 = 0.1)浸润到稳定表达核定位mCherry的转基因本氏烟草叶片中。浸润后48 h收集浸润的叶片组织,使用共聚焦激光扫描显微镜(Zeiss LSM 880,德国)观察GFP荧光。
【数据】载体:pCAMBIA2300-eGFP;农杆菌菌株:EHA105;菌液浓度:OD600 = 0.1;受体植物:稳定表达核定位mCherry的转基因N. benthamiana;取样时间:浸润后48 h;显微镜:Zeiss LSM 880
2.7 双荧光素酶报告实验
为研究AdERF14的转录活性,将AdERF14 CDS克隆到pGreen 62SK-BD载体作为效应物,重组质粒转化到农杆菌GV3101(pSoup)中。GAL4:LUC构建体作为报告基因,重组质粒转化到农杆菌EHA105中。为确定AdERF14的下游靶标,将AdERF14 CDS插入pSAK277载体,重组质粒(效应物)转化到农杆菌EHA105中。Acc05955、Acc17617、Acc28118和Acc08918的启动子克隆到pGreen II 0800-LUC载体中,重组质粒(报告基因)转化到农杆菌GV3101(pSoup)中。相应引物列于表S2。共浸润时,效应物和报告基因悬浮液(OD600 = 0.75)按10:1体积比混合后共浸润到本氏烟草叶片中。浸润三天后,使用双荧光素酶报告实验试剂盒(Promega,Madison,WI,USA)在GLOMAX 96微孔板发光仪(Promega,Madison,USA)上测定LUC和REN荧光强度。每个设计组合至少进行三个生物学重复。
【数据】效应物载体:pGreen 62SK-BD(转录活性)、pSAK277(靶标验证);报告基因载体:GAL4:LUC、pGreen II 0800-LUC;农杆菌菌株:GV3101(pSoup)、EHA105;共浸润浓度:OD600 = 0.75;体积比:10:1;浸润后检测时间:3天;检测试剂盒:Promega双荧光素酶报告试剂盒;检测仪器:GLOMAX 96;生物学重复:≥3个
2.8 猕猴桃转化
将融合FLAG标签的AdERF14 CDS插入pSAK277载体,生成C端FLAG标签融合蛋白。重组质粒转化到根癌农杆菌EHA105菌株中。随后,猕猴桃(Actinidia chinensis cv. Donghong)叶片作为外植体进行转化,方法参照我们此前的研究(Zhang et al., 2018; Wang et al., 2022c)。简要来说,共培养后,外植体在再生培养基上培养,培养基中添加卡那霉素(50 mg/L)用于筛选转化体。AdERF14过表达系通过DNA水平的PCR、mRNA水平的RT-qPCR和蛋白质水平的Western blot分析确认。用于确认DNA插入的引物列于表S3。
【数据】载体:pSAK277(C端FLAG标签);农杆菌菌株:EHA105;外植体:A. chinensis cv. Donghong叶片;筛选抗生素:卡那霉素50 mg/L;验证方法:PCR(DNA)、RT-qPCR(mRNA)、Western blot(蛋白);引物:表S3
2.9 Western blot
WT和AdERF14过表达系的总蛋白提取……(原文此处截断)
【数据】原文未详述
研究结果
3.1 自然和处埋猕猴桃贮藏期间的生理变化
Actinidia deliciosa cv. Hayward因其果实大小、风味、产量和优异的采后贮藏性能,长期以来一直是商业上最重要的猕猴桃品种之一(Burdon et al., 2017; Afonso et al., 2023; Wang et al., 2024)。在‘海沃德’猕猴桃采后成熟过程中,总可溶性固形物(TSS)从采后0天(DAH)的6.30%增加到18 DAH的14.53%(图1A),而果实硬度逐渐下降(图1B)。乙烯产量在12 DAH首次检测到,并在14 DAH达到峰值48.22 nL g⁻¹ h⁻¹(图1C)。ETH处理的果实表现出TSS快速增加(图1A)、硬度快速下降(图1B),以及乙烯产量峰值提前且更高(8 DAH时为64.52 nL g⁻¹ h⁻¹)(图1C)。相反,1-MCP处理显著抑制了果实成熟;即使在20 DAH,果实仍保持较低的TSS水平(图1A)和较高的硬度(图1B),且未检测到乙烯产量(图1C)。
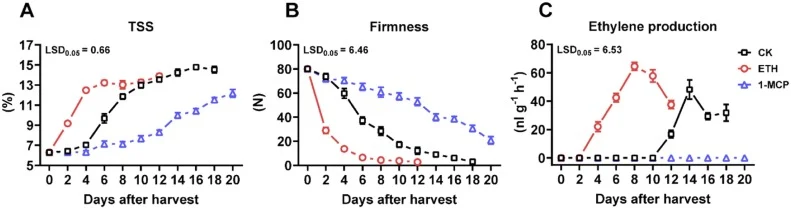
【数据】TSS:0 DAH为6.30%,18 DAH为14.53%;乙烯峰值:48.22 nL g⁻¹ h⁻¹(14 DAH);ETH处理乙烯峰值:64.52 nL g⁻¹ h⁻¹(8 DAH);1-MCP处理:20 DAH无 detectable 乙烯;品种:A. deliciosa cv. Hayward
3.2 RNA-seq揭示猕猴桃自然成熟过程中动态变化的关键转录因子
为鉴定猕猴桃自然成熟过程中的关键转录因子(TFs),对0、10和14 DAH的果实样品进行RNA-seq,分别对应采后初始阶段、跃变前阶段和乙烯跃变峰。RNA-seq分析在0 DAH vs 10 DAH中鉴定出1598个上调基因和2606个下调基因,在0 DAH vs 14 DAH中鉴定出2760个上调基因和3466个下调基因(图2A)。KEGG分析表明,鉴定出的DEGs主要与淀粉和蔗糖代谢、氨基酸代谢和次生代谢相关(图2B)。将这些DEGs与猕猴桃中鉴定的所有TFs(Brian et al., 2021)比较,发现542个TFs在自然成熟过程中差异表达(图2C)。大多数鉴定出的猕猴桃TFs在0至10 DAH期间上调倍数低于30倍(图2D)。相反,两个TFs(Acc08308和AdDof3)积累到极高水平(倍数变化 > 30,最大FPKM > 50)(图2D)。迄今为止,AdDof3已被报道为成熟相关TF,其激活AdBAM3L转录以促进猕猴桃淀粉降解。尽管Acc08308在我们此前研究中被命名为AdERF14,但其下游靶标尚未确定(Yin et al., 2010)。因此,选择AdERF14作为猕猴桃中关键成熟相关TF进行进一步研究。
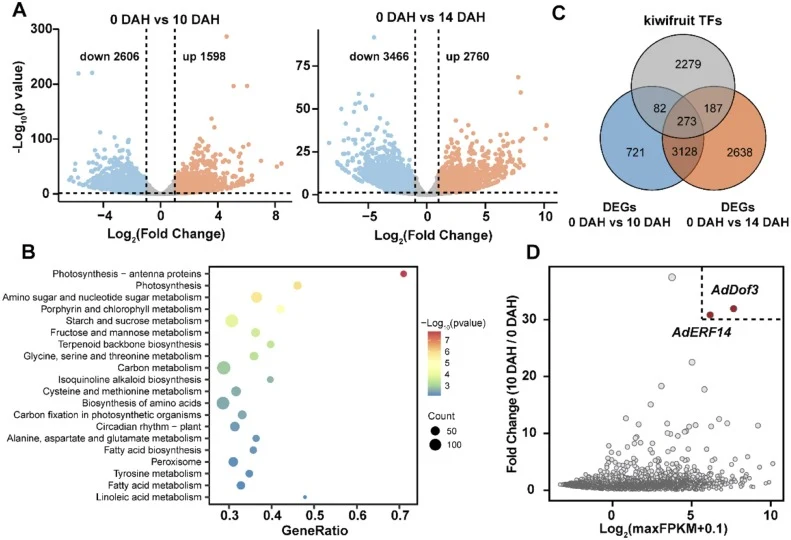
【数据】0 vs 10 DAH:1598个上调,2606个下调;0 vs 14 DAH:2760个上调,3466个下调;差异表达TFs:542个;高表达TFs:Acc08308和AdDof3(fold change > 30,max FPKM > 50);DEG阈值:FDR < 0.05,|fold change| ≥ 2
3.3 AdERF14转录功能表征
RT-qPCR结果显示,AdERF14转录水平在猕猴桃自然成熟过程中显著增加(图3A)。AdERF14的表达受乙烯激活、被1-MCP抑制(图3A)。本氏烟草叶片亚细胞定位分析表明,AdERF14-GFP信号主要定位于细胞核(图3B)。系统发育分析显示,AdERF14与AtERF113、SlERF.D7、SlERF.D8和SlERF.D9聚为一簇(图3C)。此外,AdERF14与其同源物氨基酸序列的多序列比对揭示,AdERF14包含一个保守的AP2/ERF结构域(图S1)。烟草叶片双荧光素酶报告实验显示,与空载体62SK-BD相比,62SK-BD-AdERF14构建体使TATA-box启动子活性增强1.9倍(图3D)。综上所述,这些结果表明AdERF14作为转录激活因子发挥作用,可能参与猕猴桃成熟。
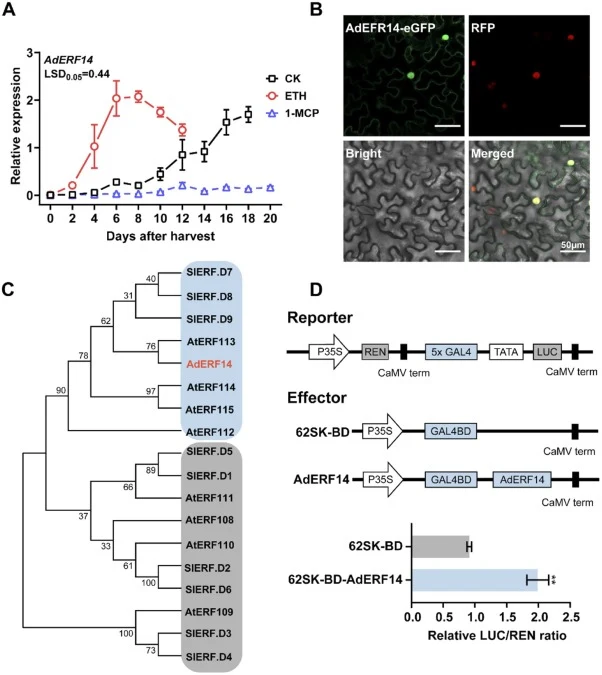
【数据】亚细胞定位:细胞核;系统发育聚类:AtERF113、SlERF.D7、SlERF.D8、SlERF.D9;转录激活倍数:1.9倍(vs 空载体);保守结构域:AP2/ERF
3.4 猕猴桃中AdERF14过表达
我们实验室已建立了稳定可重复的 A. chinensis cv. Donghong转化体系(Qi et al., 2025; Wu et al., 2025b)。为进一步研究AdERF14的功能,通过农杆菌介导转化从 A. chinensis cv. Donghong叶片中生成两个独立的AdERF14过表达愈伤组织系(Line 1和Line 4)。由CaMV 35S启动子驱动的AdERF14整合到猕猴桃基因组中(图4A),两个独立的AdERF14过表达系中AdERF14转录水平显著高于野生型(图4B)。更重要的是,成功检测到C端FLAG标签的AdERF14蛋白(图4C)。
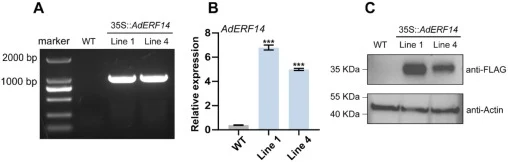
【数据】过表达系:Line 1和Line 4;启动子:CaMV 35S;标签:C端FLAG;验证方法:PCR(DNA)、RT-qPCR(mRNA)、Western blot(蛋白)
3.5 通过RNA-seq鉴定AdERF14靶基因
为鉴定AdERF14的候选靶基因,对WT和AdERF14过表达愈伤组织系(A. chinensis cv. Donghong)进行RNA-seq。转录组分析鉴定出相对于WT,Line 1中1904个上调基因和2079个下调基因,Line 4中4705个上调基因和3517个下调基因(图5A)。为后续候选基因筛选,丢弃最大FPKM < 10的基因以降低背景噪音。鉴于AdERF14作为转录激活因子发挥作用(图3D),我们聚焦于AdERF14过表达系中上调的基因。Venn图分析揭示92个在自然成熟过程中和两个AdERF14过表达系中均上调的共同DEGs(图5B)。15个DEGs在两个过表达系中相对于WT表达增加超过4倍(图5C)。在这15个DEGs(表S5)中,四个结构基因(Acc05955、Acc17617、Acc28118和Acc08918)被注释为成熟相关基因。Acc05955此前被鉴定为AdACS1(Wang et al., 2022a),编码1-氨基环丙烷-1-羧酸合成酶。Acc17617编码果胶酯酶,而Acc28118和Acc08918编码β-淀粉酶(NCBI注释)。这些基因在猕猴桃(A. deliciosa cv. Hayward)成熟过程中表现出显著上调(图5D)。这些结果表明AdERF14在猕猴桃成熟过程中发挥重要作用,选择这四个基因进行进一步研究。
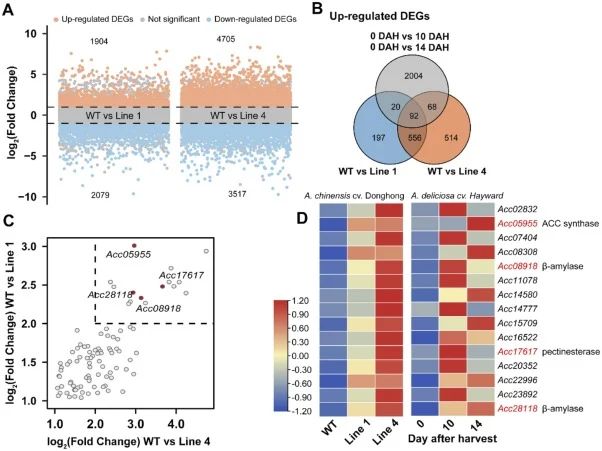
【数据】Line 1:1904个上调,2079个下调;Line 4:4705个上调,3517个下调;FPKM筛选阈值:< 10丢弃;共同上调DEGs:92个;表达增加 > 4倍的DEGs:15个;候选结构基因:Acc05955(AdACS1,ACS)、Acc17617(果胶酯酶)、Acc28118(β-淀粉酶)、Acc08918(β-淀粉酶)
3.6 AdERF14直接结合并激活AdACS1启动子
采用双荧光素酶报告实验鉴定AdERF14的下游靶基因。LUC/REN比值表明,AdERF14显著激活AdACS1启动子(> 2倍),而AdERF14不调控其他候选启动子的活性(图6A)。因此,选择AdACS1进行进一步研究。AdACS1启动子序列通过JASPAR(https://jaspar.elixir.no/)(Ovek Baydar et al., 2025)扫描,发现一个推定的ERF结合基序(GCGACGCCA)。凝胶迁移实验(EMSA)表明,纯化的重组GST-AdERF14蛋白物理结合到含有核心顺式元件序列的探针上。随着未标记探针浓度增加,迁移带逐渐减弱。相反,突变未标记探针失去与标记探针竞争的能力,支持了相互作用的特异性(图6B)。AdACS1在猕猴桃自然成熟过程中上调,而乙烯和1-MCP处理分别诱导和抑制其表达(图6C)。相关性分析显示,在采后猕猴桃成熟过程中,AdACS1的表达模式与AdERF14呈正相关(R² = 0.8690,p < 0.001)(图6D)。此外,与转录组数据一致(图5C),RT-qPCR结果证实,与WT愈伤组织相比,AdERF14过表达系中AcACS1(AdACS1在 A. chinensis中的同源物)的mRNA水平显著更高(图6E)。综上所述,这些结果表明AdERF14直接结合并激活AdACS1启动子。
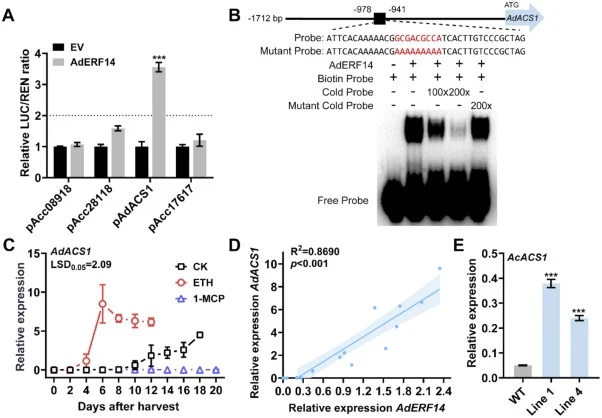
【数据】LUC/REN比值:AdACS1启动子激活 > 2倍;ERF结合基序:GCGACGCCA;EMSA:GST-AdERF14结合核心顺式元件;相关性:R² = 0.8690,p < 0.001;AcACS1在过表达系中显著上调
3.7 AdERF14增强猕猴桃乙烯产量
鉴于AdERF14过表达导致AcACS1转录本显著积累,我们测定了WT和AdERF14过表达系(A. chinensis cv. Donghong)的乙烯产量(图7A)。结果显示,与WT相比,转基因系中乙烯产量(图7B)增加。进一……(原文此处截断)
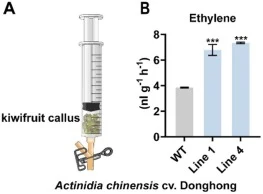
【数据】乙烯产量:转基因系高于WT;原文后续数据截断
3.8 AdERF14激活自身转录并调控猕猴桃乙烯生物合成
双荧光素酶报告实验表明AdERF14正向调控自身启动子活性。空载体的LUC/REN比值设为1。误差棒表示四个生物学重复的SE……(原文此处截断)
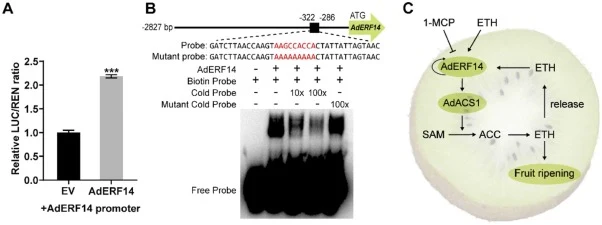
【数据】LUC/REN比值:空载体设为1;生物学重复:4个
讨论与解读
4.1 猕猴桃成熟过程中AdERF14的保守上调
乙烯在调控跃变型果实成熟中发挥关键作用(Ji and Wang, 2021)。根据经典乙烯信号通路,乙烯被乙烯受体感知,然后通过CTR1和EIN2转导(Zhao et al., 2021)。EIN2随后将信号转导至转录因子EIN3、EIL1和EIL2,激活乙烯响应基因(如ERFs)的转录,触发乙烯响应(Binder, 2020)。作为乙烯信号的下游介导因子,ERFs参与调控果实成熟过程中多种生理过程,如淀粉代谢(Xie et al., 2025)、果胶代谢(Fan et al., 2025)、叶绿素代谢(Song et al., 2025)、萜类生物合成(Wu et al., 2025a)和花青素生物合成(Ni et al., 2023)。ERF基因家族成员已在多种果树作物中鉴定,包括番茄77个成员(Pirrello et al., 2012)、苹果195个成员(Girardi et al., 2013)、桃102个成员(Zhou et al., 2020)、枇杷96个成员(Liu et al., 2024)和沙梨188个成员(Xu et al., 2023)。猕猴桃中已鉴定出236个ERF家族成员(Brian et al., 2021),根据我们的转录组分析,其中28个成员在自然成熟过程中差异表达(表S6)。在这些成员中……(原文此处截断)
编译者解读
该研究构建了"AdERF14→AdACS1→乙烯→AdERF14"的正反馈环路模型,为跃变型果实成熟的转录调控提供了新机制。方法上,作者巧妙结合了异源烟草瞬时表达与猕猴桃愈伤组织稳定转化,兼顾了快速筛选与生理相关性验证。不过,愈伤组织体系与完整果实的成熟生理存在差异,环路在整株水平的功能验证仍是后续关键。此外,自激活环路的动力学特征及其在采后调控中的可干预节点值得深入探索。
参考来源
期刊:Postharvest Biology and Technology, 2027
DOI: 10.1016/j.postharvbio.2026.114739
DOI: 10.1016/j.postharvbio.2026.114739