来源:Constraint geometry and reachability in natural product biosynthesis(Phytochemistry Letters)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
天然产物生物合成基因簇(BGC)为何在基因组中沉默?为何纯机制性干预往往失败?Simon Gibbons 在 Phytochemistry Letters 提出的"边界理论"(Boundary Theory, BT)给出了一种几何化的回答:将 BGC 视为受约束场 C 支配的有界子系统 S,其可达转化集合构成有限区域 Ω,边界 ∂Ω 分隔了平凡可达与需要外部论证的转化。该框架以边界曲率解释转变难度,以 Gödel 不完备性解释沉默的必然性,以 Le Chatelier 原理描述边界的局部形变,为预测 BGC 何时及如何重组提供了结构性基础。
研究背景
生物化学长期以机制为核心解释框架——鉴定组分、相互作用与因果序列。这一路径极为成功,但也导致解释图景的碎片化:机制往往是局部的、尺度特异的,难以跨组织层次整合。局部相互作用与系统级行为之间的张力早有认识,尤其在格局与尺度的语境中(Levin, 1992)。
这些局限在转变点上尤为明显。生物与化学系统可发生突然重组,条件的微小变化伴随表型、功能或体制的巨大位移。此类行为见于简单非线性模型的分岔(May, 1976)、生态系统的体制转换(Holling, 1973; Scheffer et al., 2001)以及发育中的空间格局形成(Turing, 1952)。在这些情形中,机制性解释常能描述某一体制内的行为,却难以说明系统为何、何时跃入新体制。这并非否定机制进路的价值,而是提示其角色或许更自然地限于描述既有体制内的动力学。
研究方法
附录 A 补充材料。补充材料。
【数据】原文未详述
研究结果
可达区域(Ω)及其边界(∂Ω)的定义
为形式化哪些转变是可能的(例如哪些反应发生、哪些 BGC 被激活),我在化学允许转化的全局空间 G 中定义一个有界子系统 S(如一个 BGC 或反应)。S 的行为由约束场 C 决定,C 代表作用于该子系统的组合约束。转化(T)的可达区域为:Ω = Ω(C),其中每个转化 T 可由 S 实现,当且仅当 T ∈ Ω。Ω 并非静态:其边界 ∂Ω 在代谢、能量与发育扰动下移动。当扰动将路径的吸引子移入 Ω 内时,这些路径变为可达。吸引子是系统即使从别处出发也自然趋向并停留其附近的状态、格局或行为集合。这一几何视角区分了可容许(组成型)、边界(条件可达)与新建(依赖论证)的生物合成区域(图1)。有界子系统 S(如一个 BGC)位于全局化学可能性空间 G 之内,G 包含所有化学允许的转化。约束场 C 作用于 S 并决定可达区域 Ω = Ω(C)。边界 ∂Ω 代表无需外部论证即可达的转化的最大集合。单个转化 T 是 G 的元素,仅当 T ∈ Ω 时才可实现。外部论证 J 使约束场形变(C → C′)并移动可达区域(Ω → Ω′)。Ω 是有限的、可形变的,且依赖于当前约束体制。边界(∂Ω)定义为在 C 的极限处、无外部论证时可达到的转化的最大集合。它分隔:• 可容许区域(Ω):在基线约束下平凡可达的转化所在。• 新区域(Ω′):无外部论证 J 则不可达的转化所在。J 表示诱导边界 ∂Ω 形变的外部论证。这一结构将可达性确立为几何性质而非分子性质。一条路径仅当其所有必需转化都位于 Ω 内时才完整;沉默或条件活跃的路径对应于与 ∂Ω 相交或超出 ∂Ω 的轨迹。这一形式化为将生物与化学行为解释为有界几何区域内的运动或形变提供了基础。边界的陡峭或平缓(其局部曲率)决定了轨迹跨越进入 Ω′ 的难易:陡曲率区域充当瓶颈,需要强论证才能穿越,而平缓或扁平区域允许在最小扰动下转变(图1)。在 BT 中,边界曲率指可达性对约束场 C 变化的局部敏感性。高曲率区域需要约束的大幅变化才能产生 Ω 的小幅扩张,而低曲率区域允许在相对微小的扰动下实现 Ω 的显著扩张。为清晰起见,Ω 与 Ω′ 应分别理解为 Ω(t₀) 与 Ω(t₁):Ω(t₁) 是扰动后约束场 C′ 下的可达区域。Ω(t₀) 与 Ω(t₁) 的重叠对应于持续可达的转化,而新暴露的区域代表由边界形变而变得可及的转化。这是一个有价值的概念,因为有界区域可通过测量其约束进行实证研究,且这与支配其内部动力学的机制无关。
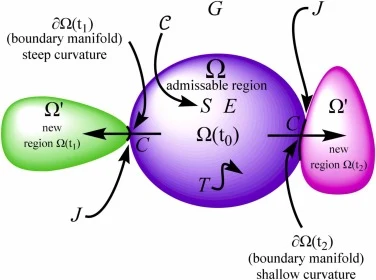
【数据】可达区域:Ω = Ω(C);边界:∂Ω;约束场形变:C → C′;区域移动:Ω → Ω′;时间点:Ω(t₀) 与 Ω(t₁)
Gödel 不完备性作为生物合成可达性的约束
作为一个例子——此处简要使用,将在下一篇论文中展开——生物合成基因簇(BGC)表现为有界形式系统,其编码的酶学规则定义但未穷尽其化学有效输出。这一结构造成固有的不完备性:一个簇可实现的转化集合总是小于化学上可能的转化集合。形式上,若 G 表示化学允许转化的全局空间,Ω 表示约束场 C 下的可达区域,则对所有有界系统有 Ω ⊂ G。Gödel 第一不完备定理(Gödel, 1931)为此局限提供了类比。在任何足够丰富的规则约束系统中,存在无法在内部推导的真陈述。映射到生物合成,这意味着存在化学有效的分子,无法由 BGC 内编码的酶学转化生成。酶集合 E 并不张成分子可能性空间 X 中的所有转化;因此,某些转化是"真但不可证"的——化学允许但不可达。在此意义上,可达性必然不完备:总存在化学有效的转化对给定系统保持不可及。Gödel 第二定理(Gödel, 1931)提供了互补约束:系统不能证明自身的一致性,也不能从内部扩展自身以消除自身的不完备性。用生物合成术语说,BGC 不能内部生成新的酶类,不能修补自身的可达性缺口,也不能在没有外部论证的情况下扩展 Ω。因此约束场 C 在内部操作下是封闭的。可达区域的任何扩展都需要源自子系统外部的扰动、生态信号或演化输入。这些类比共同表明,BGC 的沉默不是调控失败,而是不完备有界系统的预期行为。BGC 不能从内部推导其自身激活所需的条件,因为这些条件位于其编码边界之外。Gödel 不完备性因此为理解可达性为何有限、激活为何需要外部信息提供了形式基础。
【数据】全局空间:G;可达区域:Ω ⊂ G;酶集合:E;分子可能性空间:X;原文未详述具体数值
Le Chatelier 反应性作为局部边界形变
如果 Gödel 不完备性定义了内部生化推理的极限,Le Chatelier 原理(Le Chatelier, 1884)则描述有界系统在缺失信息从编码边界之外到达时如何响应。在经典化学中,Le Chatelier 预测扰动下系统移动的方向。在生物合成系统中,同样的逻辑适用,扰动改变约束场 C,移动可达区域 Ω 并使其边界 ∂Ω 形变。扰动——包括营养转移、氧化还原变化、群体感应信号、生态胁迫或共培养——修饰代谢通量、辅因子可用性、蛋白质-蛋白质相互作用与调控优先级。这些变化不改变酶学潜力 E 或全局化学空间 G;相反,它们重塑约束场,从而改变哪些转化变为可达。形式上,扰动引入外部论证 J,诱导转变:C → C′ 与 Ω → Ω′,其中 Ω′ 包含先前位于 ∂Ω 上或超出 ∂Ω 的转化。Le Chatelier 原理因此充当边界(∂Ω)的局部微分。它预测特定扰动下边界移动的方向,并识别哪些潜在轨迹变为新近可达。沉默路径并非"关闭";它们位于基线边界之外,仅在扰动使 ∂Ω 形变时才变得可及。这将激活重新框定为几何事件——边界形变——而非调控开关。
【数据】约束场变化:C → C′;区域变化:Ω → Ω′;原文未详述具体扰动参数
生物合成完备性的边界原理
本节引入一个基于边界的框架,用以描述生物合成可达性背后的结构。设 G 表示化学允许转化的全局空间,S 为约束场 C 下运作的有界生物合成子系统。可达区域为:Ω = Ω(C),边界定义为:∂Ω = {T : T 可达……}
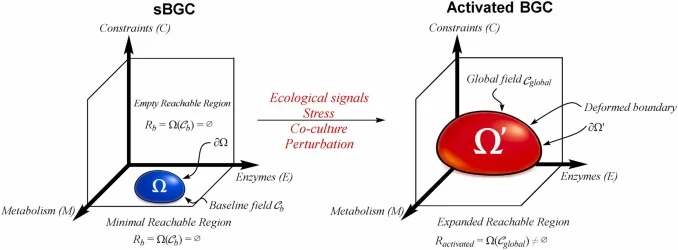
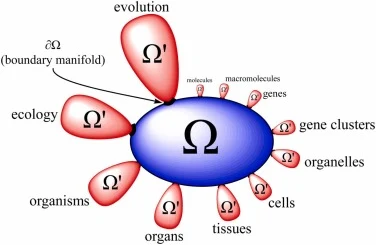
【数据】原文未详述
讨论与解读
本文结果与生物体制变化的边界描述一致:约束定义可容许行为的空间,边界结构影响重组何时发生。机制模型对描述稳定体制内的动力学仍然重要,但单凭自身无法充分解释系统为何保持于一种行为模式或跃入另一种。类似局限在各学科中已被认识,尤其是局部过程与大规模格局的关联问题(Levin, 1992)。在该框架中,可容许性与转变结构被显式处理:Ω 代表稳定的、约束兼容的体制,∂Ω 标记约束变得不相容的区域,Ω′ 代表与改变后约束相关的转变后体制。这一区分提供了简单方式来解释转变为何显得突然、为何出现滞后,以及为何机制性描述在体制内常保持准确但在转变处变为回溯性的(Holling, 1973; Scheffer et al., 2001)。边界理论(BT)还提供了一种关联现有理论进路的方式,而无需单一机制描述。例如,生态韧性框架描述吸引盆与临界点,强调变化条件下的持续与重组(Holling, 1973; Scheffer et al., 2001)。BT 与这些框架广泛一致。
编译者解读:该框架的吸引力在于把"沉默 BGC 为何沉默"从调控问题转化为几何问题——Ω 与 ∂Ω 可通过约束测量进行实证刻画,且与内部机制无关。这对合成生物学有直接启示:与其反复试错地敲除调控基因,不如先测绘约束场、定位边界曲率最平缓的切入点。局限在于,Ω 的有限性与可形变性目前仍是形式化陈述,论文未给出跨尺度实例的具体参数化方案;如何将代谢通量、辅因子池等可测变量映射为约束场的分量,是该理论走向预测工具的关键一步。
参考来源
Gibbons S. Constraint geometry and reachability in natural product biosynthesis. Phytochemistry Letters, 2026. DOI: 10.1016/j.phytoL.2026.104251
DOI: 10.1016/j.phytol.2026.104251