来源:Metabolic engineering of Saccharomyces cerevisiae for the biosynthesis of indole-derived compounds(Trends in Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
吲哚类化合物结构多样、生物活性广泛,在医药、农药和营养保健品领域应用前景广阔。本研究在酿酒酵母中构建了一个模块化微生物平台,以葡萄糖为底物从头合成多种吲哚类衍生物。核心产物吲哚-3-乙腈(IAN)产量达189.02 mg/L,并进一步实现了吲哚-3-甲醛(I3A,65.85 mg/L)、吲哚-3-羧酸(I3CA,13.95 mg/L)和3,3′-二吲哚甲烷(DIM,12.30 mg/L)的从头合成。该平台通过酶筛选、氧化还原伴侣优化、NADPH供应增强、内质网膜容量扩展、L-色氨酸可利用性提升及pH控制发酵等策略逐步优化,为复杂P450依赖型植物天然产物的微生物制造提供了概念验证。
研究背景
吲哚类衍生物在制药、农业和营养品行业中应用广泛。IAN带有腈基官能团,是合成抗癌药物——包括色氨酸2,3-双加氧酶(TDO)和组蛋白去乙酰化酶(HDAC)抑制剂——的重要中间体,同时可作为天然除草剂和环保型生物农药,用于防治杂草和松材线虫,还是有机发光二极管(OLED)等有机光电材料开发的关键前体。I3A具有高反应活性的醛基,是合成裸盖菇素及海洋来源抗癌生物碱isobatzelline C和batzelline C等高价值化合物的关键中间体,并通过激活芳香烃受体(AhR)表现出免疫调节、抗炎、抗菌和抗肿瘤活性。I3CA是合成托烷司琼等药物的重要前体。DIM是吲哚-3-甲醇(I3C)的天然二聚体,已临床用于复发性呼吸道乳头状瘤病和宫颈病变的辅助治疗。
尽管大肠杆菌已被广泛工程化用于高水平L-色氨酸生产,并作为吲哚衍生物生物合成的常用宿主,但酿酒酵母在重建含多个细胞色素P450酶的植物来源途径方面具有独特优势。作为真核宿主,酵母具备内质网膜系统、天然蛋白折叠机制和胞内氧化还原环境,与膜结合型植物P450酶及其还原酶天然兼容,有利于功能性表达和电子传递。本研究旨在建立酿酒酵母模块化平台,以葡萄糖为底物从头合成IAN及其下游吲哚类衍生物。
研究方法
培养基与化学试剂
LB培养基(5 g/L酵母提取物,10 g/L蛋白胨,10 g/L NaCl)用于质粒扩增。必要时添加终浓度为100 μg/mL氨苄青霉素或50 μg/mL卡那霉素的抗生素。携带URA3、LEU2或HIS3选择标记的工程化酿酒酵母菌株在SD缺陷型固体培养基(SD-Ura、SD-Leu、SD-His)上筛选。用于URA3标记去除的平板含0.8 g/L 5-氟乳清酸(5-FOA)、20 g/L葡萄糖、6.7 g/L无氨基酸酵母氮源(YNB)、50 mg/L尿嘧啶、200 mg/L组氨酸和100 mg/L亮氨酸。酵母培养和摇瓶发酵在YPD培养基(10 g/L酵母提取物,20 g/L蛋白胨,20 g/L葡萄糖)或SD-Ura培养基中进行,温度30°C,转速220 rpm。用于DIM生物合成时,SD-Ura培养基额外补充1 g/L CaCO₃、6.78 g/L Na₂HPO₄和3 g/L KH₂PO₄。SD缺陷型培养基(SD-Ura、SD-Leu和SD-His)购自FunGenome(北京,中国)。5-FOA、尿嘧啶、组氨酸、亮氨酸和YNB等化学试剂购自Macklin(上海,中国)。L-色氨酸、IAOx、色醇、IAN、I3A、I3CA和DIM的分析标准品购自Macklin(上海,中国),I3C购自Sigma-Aldrich(北京,中国)。
【数据】LB培养基:5 g/L酵母提取物、10 g/L蛋白胨、10 g/L NaCl;抗生素浓度:100 μg/mL氨苄青霉素或50 μg/mL卡那霉素;5-FOA浓度:0.8 g/L;YPD培养基:10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖;培养温度:30°C;转速:220 rpm;DIM发酵补充:1 g/L CaCO₃、6.78 g/L Na₂HPO₄、3 g/L KH₂PO₄
质粒与DNA操作
大肠杆菌DH5α感受态细胞(TransGen Biotech,北京,中国)用于质粒构建和扩增。酿酒酵母CEN.PK2-1D(MATα ura3-52 trp1-289 leu2-3112 his3Δ1 MAL2-8C SUC2)作为所有基因工程的亲本菌株。质粒pSP-GM2作为质粒构建的骨架载体。用于酵母基因组整合的多个已表征位点包括ADE2、X4、XII-2、XII-5、X2、X3、CAN1、GAL80、TES1、HO、LPP1、FAA1、FAA4和POX1。ARO8和ARO9的基因敲除采用CRISPR–Cas9技术。向导RNA(gRNA)序列使用在线工具(http://chopchop.cbu.uib.no)设计,列于表S1。gRNA表达质粒通过Golden Gate组装构建,方法如前所述[54]。本研究使用的所有菌株和质粒分别列于表S2和表S3。基因SCO7468从Streptomyces coelicolor A3(2)基因组DNA中扩增。表达盒PTEF1-SCO7468-TCYC1通过融合PCR使用TEF1启动子和CYC1终止子构建。CYP79B2、CYP79B3、CYP71A12、CYP71A13、ATR1、ATR2、CYP71B6、AtMSBP1和AtCYB5等基因从拟南芥cDNA中扩增。这些基因通过融合PCR与合适的启动子和终止子组装,生成表达盒如PTEF1-CYP79B2-TCYC1、PTEF1-CYP79B3-TCYC1、PPGK1-CYP71A13-TADH1、PTDH3-ATR1-TTDH3、PTDH3-ATR2-TTDH3、PTEF1-CYP71B6-TCYC1、PTEF1-AtMSBP1-TCYC1和PTDH3-AtCYB5-TTDH3。ZWF1、GND1、POS5、INO2、TRP1、TRP3、TRP4、TRP5和ARO1等基因从酿酒酵母基因组DNA中扩增。相应表达盒构建如下:PTDH3-ZWF1-TTDH3、PTEF2-GND1-TCYC1、PTEF1-POS5-TPGK1、PTEF1-INO2-TPGK1、PTDH3-TRP1-TTDH3、PADH1-TRP3-TADH1、PTDH3-TRP4-TTDH3、PPGK1-TRP5-TADH1和PTEF1-ARO1-TCYC1。aroL、aroG、trpE、yahK、yjgB、yqhD、dkgA和yeaE等基因从大肠杆菌基因组DNA中扩增。ADH2、ADH5和ADH6基因从酿酒酵母基因组DNA中扩增。用于还原酶筛选的质粒构建如下:pSP-GM2-ADH2、pSP-GM2-ADH5、pSP-GM2-ADH6、pSP-GM2-yahK、pSP-GM2-yjgB、pSP-GM2-yqhD、pSP-GM2-dkgA和pSP-GM2-yeaE。来自拟南芥的AtCYP71B6、来自毛果杨的CYP79D6V3、来自白芥的CYP79B1和来自Erythroxylum fischeri的CYP79D60经密码子优化以适应酿酒酵母表达。来自Isatis tinctoria的ItCYP71B6、来自花椰菜的BobCYP71B6、来自甘蓝的BocCYP71B6、来自甘蓝型油菜的BnCYP71B6和来自萝卜的RsCYP71B6从相应植物cDNA文库中扩增。每种酶与ATR1共表达,通过克隆至pSP-GM2载体生成用于体内活性筛选的质粒。
【数据】菌株:大肠杆菌DH5α、酿酒酵母CEN.PK2-1D;骨架质粒:pSP-GM2;整合位点:ADE2、X4、XII-2、XII-5、X2、X3、CAN1、GAL80、TES1、HO、LPP1、FAA1、FAA4、POX1;敲除基因:ARO8、ARO9;方法:CRISPR-Cas9、Golden Gate组装、融合PCR;其余:原文未详述
基因组修饰
酿酒酵母的基因组修饰采用CRISPR-Cas9和DNA组装方法进行。对于CRISPR-Cas9介导的基因敲入和敲除,供体DNA片段通过重叠延伸PCR构建。对于基因敲入,供体DNA由启动子、编码序列、终止子和靶向特定基因组位点的同源臂组成。对于基因敲除,供体DNA片段通过融合靶基因的上游和下游同源臂生成。供体DNA和相应的gRNA表达质粒通过电穿孔共转化至酵母感受态细胞。转化子通过菌落PCR和DNA测序筛选和验证。此外,采用DNA组装策略将多个基因表达盒同时整合至酵母基因组。每个表达盒包含启动子、目标基因和终止子,并与选择标记基因(LEU2或HIS3)及同源重组臂共组装。以菌株Y21的构建为例:制备六个DNA片段——PTEF1-CYP79B2-TCYC1、PTDH3-ATR1-TTDH3、PPGK1-CYP71A13-TADH1、LEU2选择标记、rDNA-up和rDNA-down。LEU2选择标记及rDNA位点的上下游同源区域从菌株CEN.PK2-1D基因组中扩增。这些片段通过电穿孔共转化至菌株Y17,使用先前报道的DNA组装方法[55]。转化子在SD-Leu平板上筛选,阳性克隆通过菌落PCR和DNA测序确认。所得菌株命名为Y21。
【数据】方法:CRISPR-Cas9、重叠延伸PCR、电穿孔、DNA组装;菌株:Y21(由Y17构建);DNA片段数:6个;筛选平板:SD-Leu;验证方法:菌落PCR、DNA测序
定量实时PCR(qPCR)测定拷贝数
工程菌株中外源基因(CYP79B2、CYP71A13和CYP71B6)的整合拷贝数通过qPCR使用2−ΔCt方法测定。基因组DNA从菌株CEN.PK2-1D(阴性对照)、Y21和Y82的过夜培养物中提取,使用TIANGEN酵母基因组DNA提取试剂盒(DP307,TIANGEN Biotech,北京,中国),按照制造商说明操作。qPCR使用2×Realab Green PCR Fast Mixture(Lambo Lide,南京,中国)进行。单拷贝基因ALG9作为内参,CEN.PK2-1D基因组DNA作为阴性对照[56]。进行熔解曲线分析以验证扩增特异性,所有反应设三个重复。每个目标基因的相对拷贝数计算如下:ΔCt = Ct(目标) − Ct(ALG9),相对拷贝数 = 2−ΔCt [57,58]。qPCR所用引物列于表S5。
【数据】方法:qPCR、2−ΔCt法;试剂盒:TIANGEN DP307;荧光染料:2×Realab Green PCR Fast Mixture;内参基因:ALG9;阴性对照:CEN.PK2-1D;重复数:3;计算公式:ΔCt = Ct(target) − Ct(ALG9),相对拷贝数 = 2−ΔCt
YqhD体外酶学 assay
纯化的YqhD用于体外酶活性测定。通过测量底物消耗速率评价纯化YqhD对I3A的催化活性。反应体系终体积1 mL,含0.5 mM NADPH、0.02–1.0 mM I3A、154 μg纯化YqhD和磷酸缓冲液(pH 6.0)。I3A溶于DMSO,不同底物浓度反应中DMSO终浓度保持一致。反应通过加入纯化YqhD启动,30°C孵育20 min。加入等体积甲醇终止反应。
【数据】NADPH浓度:0.5 mM;I3A浓度范围:0.02–1.0 mM;纯化YqhD用量:154 μg;缓冲液:磷酸缓冲液,pH 6.0;反应温度:30°C;反应时间:20 min;终止方法:等体积甲醇;溶剂:DMSO
摇瓶培养
菌株构建时,阳性克隆首先在含5 mL YPD或SD-Ura培养基的50 mL培养管中预培养,温度30°C,转速220 rpm,培养16 h。随后,种子培养物以2%(v/v)接种比例接种至含50 mL YPD或SD-Ura培养基的250 mL摇瓶中。培养物在30°C、220 rpm条件下孵育96 h。发酵结束后,测定所有样品的细胞密度和产物浓度。
【数据】预培养体积:5 mL;预培养时间:16 h;预培养温度:30°C;预培养转速:220 rpm;接种比例:2%(v/v);发酵体积:50 mL;发酵容器:250 mL摇瓶;发酵温度:30°C;发酵转速:220 rpm;发酵时间:96 h
DIM的无细胞稳定性测定
DIM的无细胞稳定性在柠檬酸–柠檬酸钠缓冲液中评价。(原文节选至此,后续内容未详述。)
【数据】缓冲液:柠檬酸–柠檬酸钠缓冲液;其余:原文未详述
研究结果
IAN生物合成途径的构建与优化
IAN的生物合成以L-色氨酸为前体,由色氨酸N-羟化酶催化转化为IAOx,随后经IAOx脱水酶催化形成IAN(图2A)。鉴定高效的色氨酸N-羟化酶和IAOx脱水酶对于构建IAN从头生物合成途径至关重要。通过文献综述和数据库检索,我们鉴定了若干报道具有色氨酸N-羟化酶活性的酶,包括来自Streptomyces coelicolor A3(2)的黄素依赖型单加氧酶SCO7468,以及来自多种植物来源的细胞色素P450酶,如来自拟南芥的CYP79B2和CYP79B3 [35–37]、来自毛果杨的CYP79D6V3 [38]、来自白芥的CYP79B1 [39]和来自Erythroxylum fischeri的CYP79D60 [40]。此外,来自拟南芥的细胞色素P450酶CYP71A12和CYP71A13已被报道具有IAOx脱水酶活性 [31,41]。然而,这些酶在酿酒酵母中的催化效率尚未被系统比较。为比较这些候选酶的催化能力,我们在酿酒酵母中构建了IAN生物合成途径并评价了各种候选酶的性能。我们首先通过过表达TRP1基因(编码磷酸核糖邻氨基苯甲酸异构酶)改善L-色氨酸生物合成。将PTDH3-TRP1表达盒整合至CEN.PK2-1D菌株的FAA1位点,获得菌株Y01。为筛选最优色氨酸N-羟化酶,将六种不同的候选酶分别与IAOx脱水酶CYP71A12及来自拟南芥的细胞色素P450还原酶(CPR)ATR1配对,然后整合至菌株Y01的ADE2位点,获得菌株Y11–16(补充信息在线表S1–S3)。结果显示色氨酸N-羟化酶的催化性能存在显著差异。其中,表达来自拟南芥CYP79B2的菌株Y15表现出最高的IAN滴度,达到27.38 mg/L(图2B)。发酵液中IAN的存在通过高效液相色谱(HPLC)(补充信息在线图S1和S2)和液相色谱-质谱联用(LC-MS)(补充信息在线图S3)进一步确认。为筛选IAOx脱水酶,我们将菌株Y15中的CYP71A12替换为CYP71A13,生成菌株Y17。结果表明,携带CYP71A13的菌株Y17产生34.30 mg/L IAN,较Y15提高25%(图2C)。接下来,为筛选最优P450还原酶(CPR),我们选择了ATR1和ATR2——拟南芥的天然CPR,已被广泛用作异源宿主中重建P450的氧化还原伴侣 [42,43]。我们将菌株Y17中的ATR1替换为ATR2,获得菌株Y18。结果显示Y18产生16.65 mg/L IAN,表明滴度下降(图2C)。这些结果表明CYP79B2、CYP71A13和ATR1是IAN生物合成的最优候选酶。为进一步提高IAN产量,我们优化了外源生物合成途径中关键基因的表达水平。将CYP79B2、CYP71A13和ATR1的表达盒整合至菌株Y17的多拷贝rDNA位点,获得菌株Y21。qPCR分析确认CYP79B2和CYP71A13在菌株Y21的rDNA位点以约3–4个拷贝整合(补充信息在线表S4和S5)。IAN产量增至62.29 mg/L(图2D),较亲本菌株Y17提高81.6%。在此平台基础上,我们通过将额外的CYP79B2、ATR1和CYP71A13拷贝分别整合至菌株Y21的X2和X3位点,进一步优化基因表达,获得菌株Y31、Y32和Y33。如图2D所示,额外整合CYP79B2和ATR1未显著影响IAN产量,而增强菌株Y33中CYP71A13的表达导致产量达85.41 mg/L,较菌株Y21提高37%。此外,我们观察到除前体L-色氨酸(10.31 mg/L)外,其他中间体无明显积累,表明CYP79B2和CYP71A13的催化效率仍是IAN生物合成途径的限制因素。
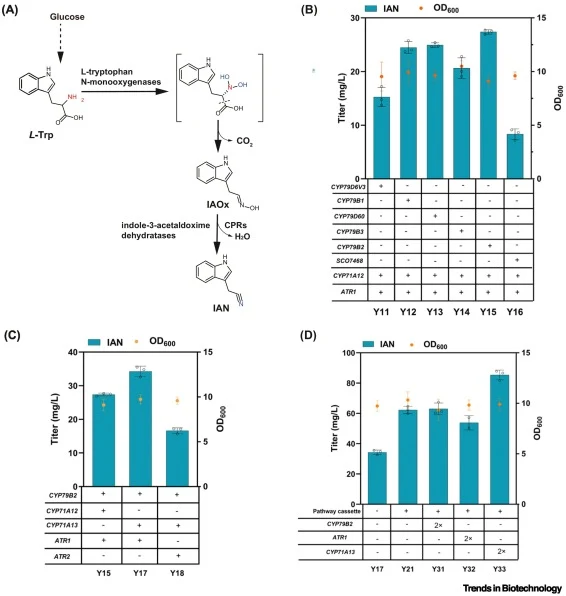
【数据】菌株Y15 IAN滴度:27.38 mg/L;菌株Y17 IAN滴度:34.30 mg/L(较Y15提高25%);菌株Y18 IAN滴度:16.65 mg/L;菌株Y21 IAN滴度:62.29 mg/L(较Y17提高81.6%);菌株Y33 IAN滴度:85.41 mg/L(较Y21提高37%);L-色氨酸积累:10.31 mg/L;CYP79B2/CYP71A13拷贝数:约3–4个;检测方法:HPLC、LC-MS
增强细胞色素P450酶催化活性以提高IAN滴度
为增强生物合成途径中细胞色素P450酶的催化效率,我们首先尝试改善胞内NADPH水平以确保辅因子充足供应。NADPH主要通过磷酸戊糖途径的氧化分支产生,其中ZWF1(葡萄糖-6-磷酸脱氢酶)和GND1(6-磷酸葡糖酸脱氢酶)催化两个关键的NADPH生成脱氢步骤(图3A)。POS5编码NADH激酶,促进NAD(H)向NADP(H)的转化,从而增强NADPH再生(图3A)。我们将ZWF1和GND1整合至菌株Y33,生成菌株Y41。发酵结果表明Y41中IAN产量略有增加,达到96.20 mg/L(图3B)。当POS5进一步整合至Y41时,所得菌株Y42产生92.96 mg/L IAN,与对照菌株相比无显著改善(图3B)。接下来,我们旨在通过改善电子传递效率进一步增强细胞色素P450催化效率。细胞色素b5(CYB5)是一种含血红素的电子传递蛋白,已被报道通过促进电子从NADPH-CPR向P450的传递及稳定生产性P450–CPR相互作用,增强多种微粒体细胞色素P450酶的催化效率 [44]。因此,我们共表达来自拟南芥的AtCYB5以改善CYP79B2和CYP71A13的活性。如预期,菌株Y43产生105.30 mg/L IAN,较对照菌株提高13.3%(图3B),表明增强电子传递有助于改善P450催化性能。由于细胞色素P450酶锚定于内质网(ER)膜,我们假设增加ER表面积可为P450酶提供更多锚定空间,从而改善其催化性能。为验证此假设,我们过表达脂质生物合成转录激活因子INO2并敲除脂质生物合成转录抑制因子OPI1,分别生成菌株Y51和Y52。如图3C所示,菌株Y51中INO2过表达导致IAN产量略有下降,为95.02 mg/L。然而,菌株Y52中OPI1敲除成功将IAN产量提高至125.19 mg/L(图3C),较菌株Y43提高19%。此外,有报道称来自拟南芥的支架蛋白AtMSBP1可调节细胞色素P450酶在ER的定位,从而缩短P450酶之间的空间距离并可能增强其催化效率 [45]。基于此,我们将AtMSBP1引入菌株Y52生成菌株Y53。然而,Y53中IAN滴度未显示显著改善,为112.63 mg/L(图3C),表明该策略对IAN生物合成无明显效果。此外,我们观察到途径中间体无积累,表明前体L-色氨酸供应不足是目前IAN生物合成途径的限速步骤。
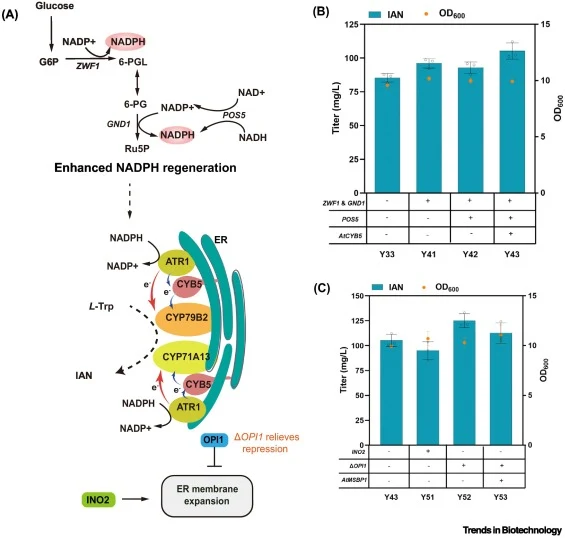
【数据】菌株Y41 IAN滴度:96.20 mg/L;菌株Y42 IAN滴度:92.96 mg/L;菌株Y43 IAN滴度:105.30 mg/L(较对照提高13.3%);菌株Y51 IAN滴度:95.02 mg/L;菌株Y52 IAN滴度:125.19 mg/L(较Y43提高19%);菌株Y53 IAN滴度:112.63 mg/L;NADPH相关基因:ZWF1、GND1、POS5;电子传递蛋白:AtCYB5;ER工程:INO2过表达、OPI1敲除、AtMSBP1
提升L-色氨酸可利用性以提高IAN产量
为进一步提高IAN产量,有必要加强前体L-色氨酸的供应。为克服酿酒酵母中L-色氨酸生物合成途径的反馈抑制,我们将编码抗反馈邻氨基苯甲酸合酶组分I的大肠杆菌基因trpE^fbr整合至菌株Y52基因组,获得菌株Y61。此外,我们尝试……(原文节选至此,后续内容未详述。)
【数据】菌株:Y61(由Y52构建);整合基因:trpE^fbr(大肠杆菌);其余:原文未详述
讨论与解读
尽管大肠杆菌已被广泛工程化用于高水平L-色氨酸生产,并作为吲哚衍生物生物合成的常用宿主,但酿酒酵母在重建含多个细胞色素P450酶的植物来源途径方面具有独特优势。作为真核宿主,酵母具备内质网膜系统、天然蛋白折叠机制和胞内氧化还原环境,与膜结合型植物P450酶及其相关还原酶天然兼容。这些特征极大促进了功能性表达和电子传递,而这在细菌宿主中仍是主要挑战。相比之下,酿酒酵母相对较低的L-色氨酸生产能力可通过代谢工程弥补。本研究中,莽草酸途径的增强、抗反馈邻氨基苯甲酸合酶的引入以及Ehrlich途径的减弱大幅提高了前体可利用性,实现了IAN及其下游衍生物的从头生产。这些结果凸显了前体供应与异源酶兼容性之间的权衡,并证明酿酒酵母是构建复杂P450依赖型吲哚生物合成途径的合适底盘。尽管本研究中实现的IAN滴度(189.02 mg/L)低于酿酒酵母中生产的相对简单芳香族化合物(如对香豆酸[47])的报道值,但直接比较……(原文节选至此,后续内容未详述。)
编译者解读:该研究以酿酒酵母为底盘,通过模块化策略逐步打通了从葡萄糖到IAN及下游I3A、I3CA、DIM的合成途径。最值得关注的是其绕开植物复杂硫代葡萄糖苷-黑芥子酶系统、以人工途径合成DIM的思路——这为高价值天然产物的"最小化重建"提供了范例。不过,P450氧化步骤仍是限速瓶颈,上游中间体积累和DIM发酵不稳定性提示催化效率与过程稳定性有待突破。当前TRL 3的概念验证距离工业化仍有距离,后续需在P450表达、电子传递和底物转化效率上持续发力。
参考来源
期刊:Trends in Biotechnology, 2026
DOI: 10.1016/j.tibtech.2026.09.006
DOI: 10.1016/j.tibtech.2026.09.006